
構造生物学者のための情報収集サポートサイト
Structure Update
131 Articles既に構造があるタンパク質の新しい構造(別の状態・リガンド・相手との複合体など)。
2026.11.053
Doc2B–Munc13-1 complex
Doc2Bは、Munc13-1がシンタキシンを開く部位をふさぐ
AI設計の結合タンパク質を使ってクライオ電顕で複合体を解析。膜に結合すると阻害が外れる可能性も示した
20S proteasome (P. falciparum, human)
シリンゴリン類縁体は、マラリア原虫のプロテアソームを選んで阻害する
原虫とヒトの20Sプロテアソームとの複合体をクライオ電顕で解き、選択性の手がかりを探った
Human CDK12/Cyclin K
ZLC853は、CDK12のCys1039に共有結合する経口薬候補だ
共結晶構造と質量分析で結合を確かめ、前立腺がんのモデルで腫瘍の増殖を抑えた
2026.11.042
MexB (P. aeruginosa)
PAβNは、MexBの空洞で3通りの姿をとる
クライオ電顕と結晶構造でMexB・PAβN複合体を解析し、阻害剤の通り道を探った
Chicken MHC class I BF2*21:01
ニワトリMHC BF2*21:01は、幅広いペプチドに規則を持つ
結晶構造とペプチド解析から、どのペプチドが安定に結合するかを整理した
2026.11.033
SARS-CoV-2 NSP3 Mac1 macrodomain
AIで絞った阻害剤候補が、Mac1にたしかに結合した
ドッキングで選んだ化合物とMac1の複合体を1.02 Åの結晶構造で確かめた
Human ALDH1B1
ALDH1B1阻害剤の弱点を、構造を手がかりに改良した
複数の複合体の結晶構造で結合の溝を調べ、安定性の高いIGUANA-5を得た
CryoAssign (E. coli DnaK and ArnA maps)
正体不明の電子密度から、AIがタンパク質を絞り込む
AlphaFold2の予測構造を機械学習で順位づけし、未同定のクライオ電顕マップを解析した
2026.11.013
M2 MspA nanopore (M. smegmatis)
MspAは、周りの脂質のアシル鎖を部分的に整列させる
脂質ナノディスク中の2.5 Åクライオ電顕構造に、32本のアシル鎖が決まった位置で見えた
Human EGFR kinase domain with ZNL-1
C797Sでも効く、EGFRのC775を狙う阻害剤
ZNL-1との共結晶構造でC775への共有結合を確認。C775とC797の両方に結合するYNW-1も設計した
KLVFFA peptide (Aβ segment) and hydrates
液体セルで、室温の水和結晶の構造を決める
炭素膜2枚の簡単な液体セルと低線量の多結晶データで、0.8〜1.0 Åの電子回折構造を得た
2026.10.312
Gdi-1 CP group II intron (G. diazotrophicus)
環状RNAを作るリボザイムは、一価イオンを足場に活性部位を組み直す
8つのクライオ電顕構造が、分岐からバックスプライシングへ移る金属イオンの入れ替わりを示した
T. denticola NanH sialidase (GH33)
細菌のシアリダーゼは、補体のシアル酸を外して免疫を逃れる
T. denticola の NanH を結晶構造と血清殺菌試験で調べ、触媒ドメインの共通性も示した
2026.10.3012
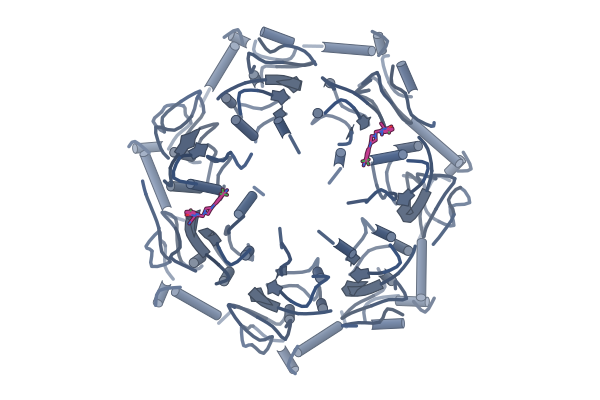
Human mitochondrial ClpP with OICR18704
ClpPを遠くから止める、新しい阻害剤
活性部位から約30 Å離れたポケットに結合し、触媒残基の並びをずらして不活性にする
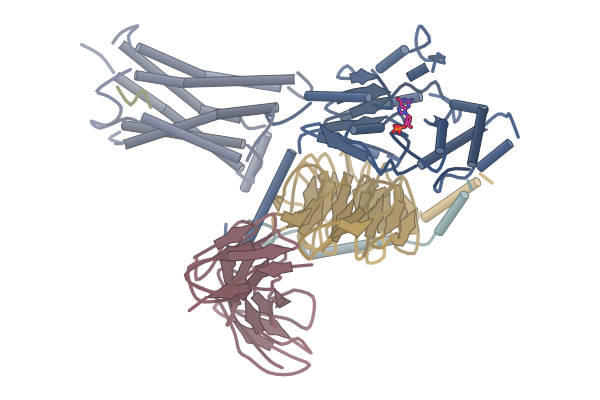
HCMV US28–Gq complex with CX3CL1.44
ウイルスGPCRで、Gq活性化の途中の状態を3つ捉えた
クライオ電顕でE・T2C・C状態を解析し、α5の形成が塩橋の切断を介してGDP放出を促すと提案
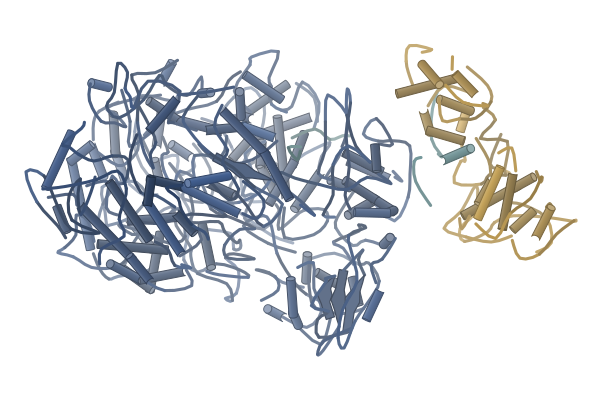
VSV L–P–N0 polymerase complex
VSVのポリメラーゼは、N0をRNAの出口そばに留める
L-P-N0のクライオ電顕で、N0がLCTD付近を動く様子と3.8 Åの安定な状態を得た
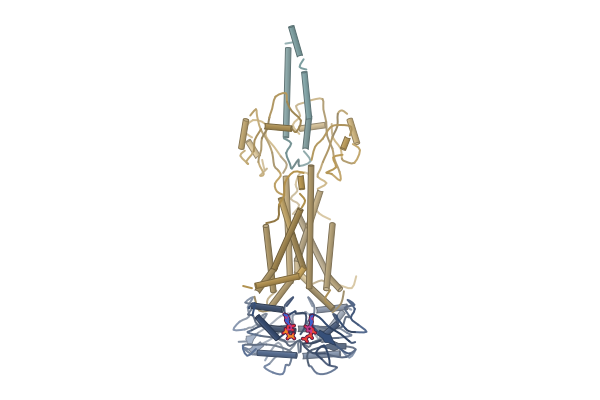
E. coli FtsEX (with EnvC)
対称な大腸菌FtsEXが、非対称なEnvCを受け止める
ATP結合状態の構造をクライオ電顕で解析。柔らかいループが相手の形に合わせて結合する
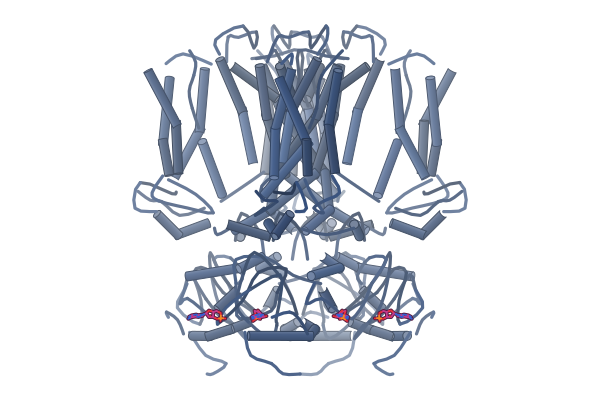
Human HCN1/HCN2 chimera (HCN112) and HCN1ΔC channels
HCN2の細胞質ドメインを移したチャネルは、縮んだ形をとる
キメラとCNBD欠失体の構造から、cAMP応答と自己抑制を調べた
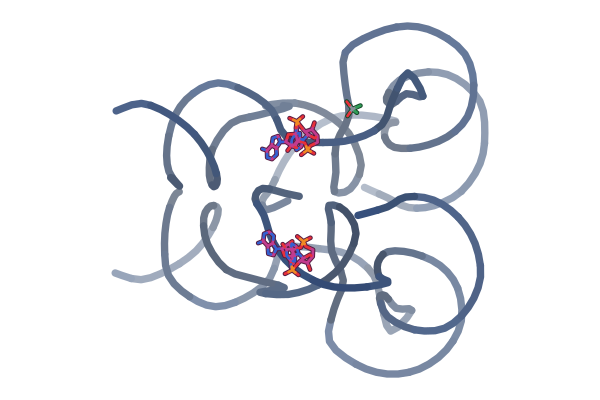
c-di-GMP-II riboswitch variant (B. halodurans)
RNAは、cGAMPの異性体を結合の向きで見分ける
リボスイッチ変異体の結晶構造では、2種のcGAMPで塩基が逆向きに入り、A64・G68との接し方が変わる
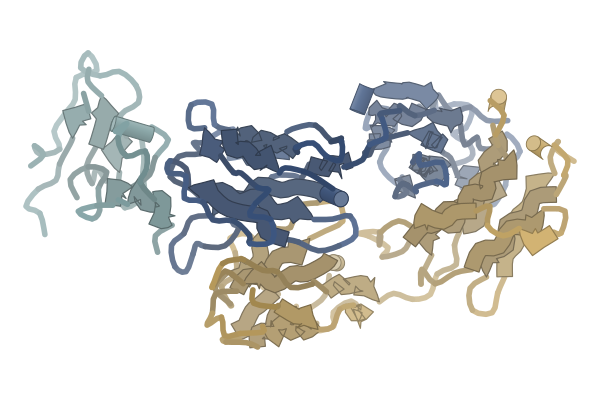
HCV E2 core with macaque antibody RM3-26
サルの抗体は、ヒトの抗体と似た向きでHCVのE2に結合した
BD抗体25種を調べ、RM3-26とE2コアの結晶構造を2.24 Åで決めた
Human GFRAL D3 with anti-GFRAL Fab (GB2Ab)
抗GFRAL抗体は、GFRALの表面を作り替えてRETをふさぐ
Fab–GFRAL D3の結晶構造(2.3 Å)が誘導適合を示し、悪液質のマウスで効果を確かめた
Heparin lyase I (B. eggerthii)
3-O-硫酸の隣も切れる、腸内細菌のヘパリン酵素
X線結晶構造で切断後の二糖が活性部位に収まる様子を捉え、LC-MSとNMRの結果を裏づけた
Human DTX4 RING-DTC domains
DTX4のRINGは、結晶中でドメインを入れ替えた二量体を作る
ADP-リボース結合型のRING-DTCを2.8 Åで解析し、ADP-リボースへの結合も測った
PKA catalytic subunit α (C. griseus)
合成した15化合物のうち5つが、PKAをナノモルで阻害した
断片をサブポケットごとに成長させる計算法で設計し、最も強い化合物の結晶構造が予測とよく重なった
Human PGK1 (phosphoglycerate kinase 1)
テラゾシンは、PGK1が閉じるのを妨げて開いた状態に保つ
NMR滴定と、NOEだけで決めたNMR²構造が、X線構造と同じ結合部位を溶液中で示した
2026.10.2916
Human telomerase (TERT–TER) with BIBR1532
テロメラーゼ阻害剤は、予想外の場所に結合していた
BIBR1532との複合体を9つ解き、活性部位から離れた袋で最初の伸長段階を遅らせると示した
Human ZNFX1 RNA helicase
ZNFX1は、RNAに出会うまで自分でRNAの溝をふさいでいる
RNAなしの四量体フィラメントとRNA結合型の二量体を比べ、ヘリカーゼの活性化の仕組みを描いた
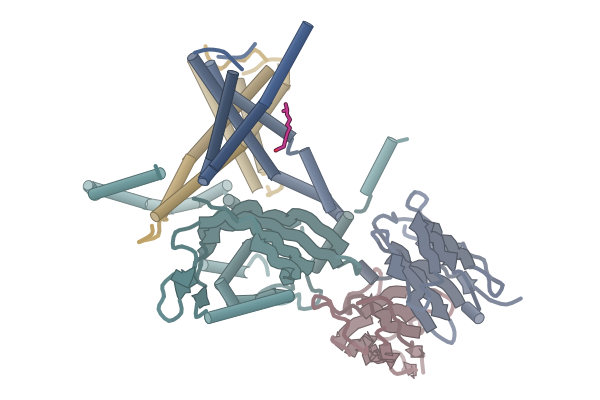
Yeast TIM23 complex with stendomycin
抗生物質が、ミトコンドリアの入口にらせんで栓をする
ステンドマイシンが結合したTIM23をクライオ電顕で解き、Tim17の空洞をふさぐ姿を示した
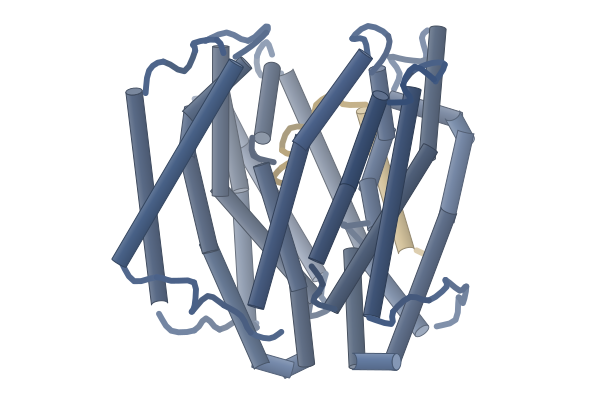
E. coli MurJ with phage lysis protein SglPP7
ファージの溶菌タンパク質は、MurJの空洞に尾を差し込む
MurJとSglPP7の複合体を3.2 Åで解析。外向き型に固定され、脂質IIの輸送が止まると考えられる
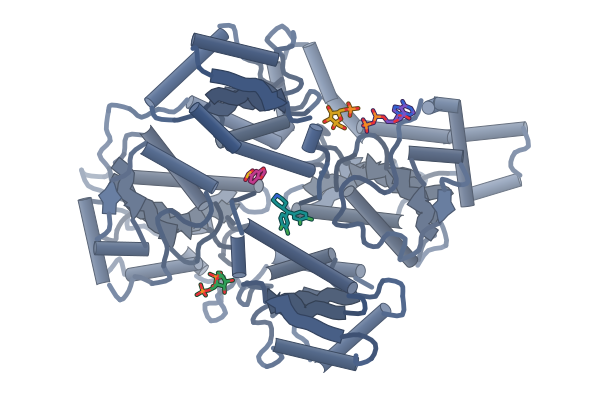
Human PFKL with covalent activator XJ-4-85
共有結合の活性化剤は、PFKLを活性型に固定する
K677に結合するXJ-4-85とPFKLの複合体をクライオ電顕で解き、R状態の維持を示した
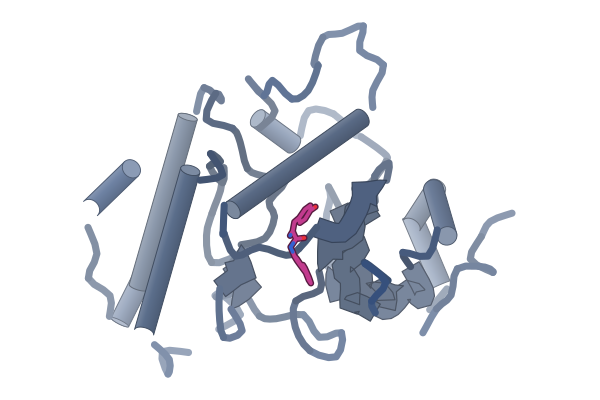
AfRIOK1 (A. fulgidus) with CINS-1
大腸がん向けRIOK1阻害剤CINS-1の結合を結晶で確認
好熱性古細菌のRIOK1との複合体を2.76 Åで解き、ATP結合ポケットへの入り方を示した
MPXV M1R with Fabs G4 and B9
別の場所に結合する2つの抗体が、ポックスウイルスを中和する
サル由来G4・B9のFabとM1Rの複合体を解析。G4は変異D35Nでも結合を保つ
Zika virus E protein with Fab 1C11
ジカウイルスだけを見分けて中和する、ワクチン由来のサル抗体
1C11 Fabとウイルス粒子を約3.2 Åで解析。D67を含む部位が見分けの鍵になる
Measles virus F (prefusion) with MeV-15/104 Fabs
2つのヒト抗体が、麻疹ウイルスFタンパク質の別の面に結合する
MeV-15・MeV-104のFabと融合前Fを約2.9 Åで解析。どちらも隣り合う2単位にまたがる
Influenza B virus HA with Fabs KL-BHA-3F4, 3D7, 4C2
B型インフルの広域抗体は、結合部位ごとに働きが違う
3種のFab–HA複合体を解き、受容体の模倣とHA基部への結合で作用が分かれると示した
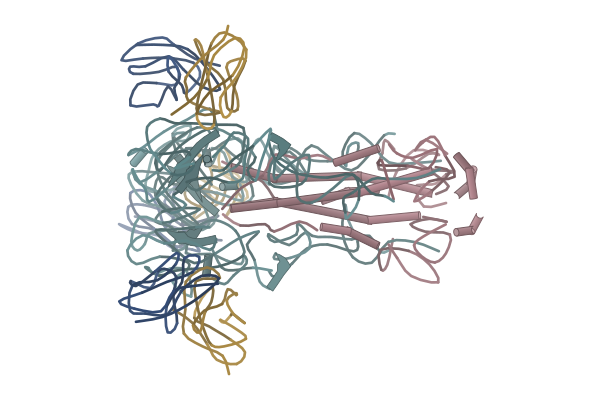
Influenza H1 HA (A/California/04/2009) with Fabs
インフルエンザHAの側面パッチは、変異で抗体を逃れてきた
抗体2種とHAの複合体をクライオ電顕で解き、A259Tなど離れた変異も抗体結合を弱めると示した
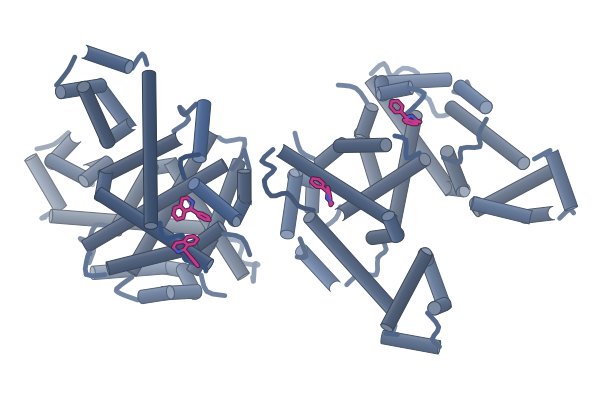
Evolved RamR enantioselective TFs (E. coli)
転写因子RamRは、2か所の変異で鏡像体を見分ける
30万種超の変異体を測り、結晶構造で立体障害と電荷の役割を示した。酵素の選択性の反転にも使えた
Designed coiled-coil peptide GRW-L16CL30H with heme
ヘムが、コイルドコイルの並びを一ヘプタッドずらす
設計ペプチドのヘム結合型を1.9 Åで解き、各ヘムが2つのHisで配位する四本鎖を示した
Human estrogen receptor α (ERα) LBD
甘草のスチルベンは、プレニル基の数と位置で効き方が変わる
合成した類縁体とERαの結晶構造6つから、5桁に及ぶ活性差が同じ受容体の形で説明された
FlhG (B. burgdorferi)
FlhGがないと、スピロヘータのべん毛の数と並びが乱れる
クライオ電子線トモグラフィーで、欠失株ではモーターの輪状の構造が見えなかった
PARP10 RRM1–3 oligomer
PARP10は、RRMが環状に連なって凝縮する
RRM1–3が頭尾でつながる開いた環を捉え、変異で静電的な接点を確かめた
2026.10.282
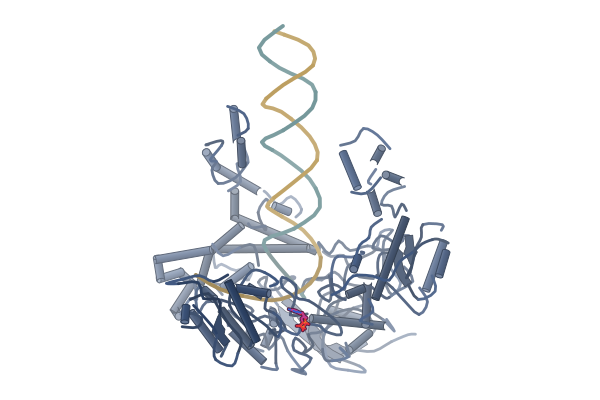
SP15-like DNA polymerases (YerA41, phiLo phages)
ファージのDNA合成酵素は、複製の手前でウラシルを外す
UDGドメインを融合した2種の酵素をクライオ電顕で解析。DNAを締める2つの挿入部も見えた
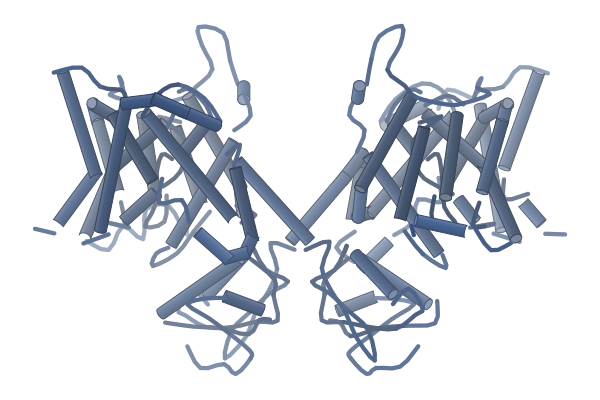
Human KBAT (SLC26A11)
KBATの塩化物イオン結合は、E320のプロトン化と関係する
ヒトSLC26A11の内向き型構造をクライオ電顕で解き、MDでE320の働きとエレベーター型の輸送を調べた
2026.10.272
GPR55 with inverse agonists (BI-6229, BI-8310)
糖鎖の部位を変えると、GPR55の阻害剤が作動薬になる
阻害剤との不活性型と活性型をクライオ電顕で解き、ヘリックスVIIの約90°の回転による活性化を示した
DnaB–DciA (V. cholerae)
DciAは、DnaBの輪を楔のように割って開く
DnaBとDciAの複合体を3.5 Åのクライオ電顕で解析。1本のN末端ドメインが輪の切れ目に入り込む
2026.10.251
CorA KS-AT didomain (Corallococcus exiguus)
ループ状のふたが、CorAに多様な基質を受け入れさせる
NRPS-PKS融合酵素CorAのKS-ATをクライオ電顕で解析。12種の産物ができる
2026.10.2410
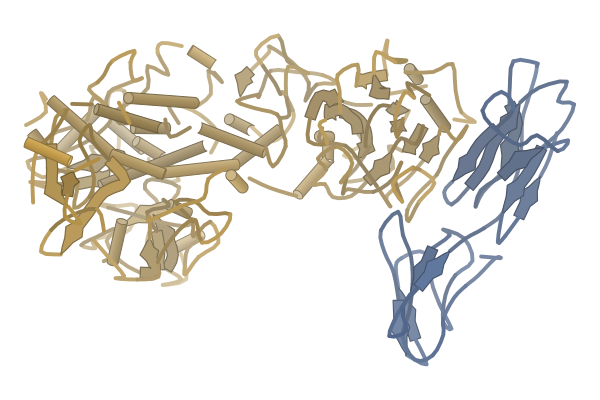
E. coli CNF1–BCAM (Lu) complex
大腸菌の毒素CNF1は、ラミニンに似た形で受容体BCAMに結合する
毒素の全長・受容体との複合体・ラミニン511との複合体を解き、毒素由来のT細胞エンゲージャーを作った
Human MBOAT1 (membrane-bound O-acyltransferase 1)
MBOAT1はリゾPSを側面の入口から受け入れ、PSを放出する
基質・供与体・産物が結合した状態をクライオ電顕で捉え、PS の脂質リモデリングを説明した
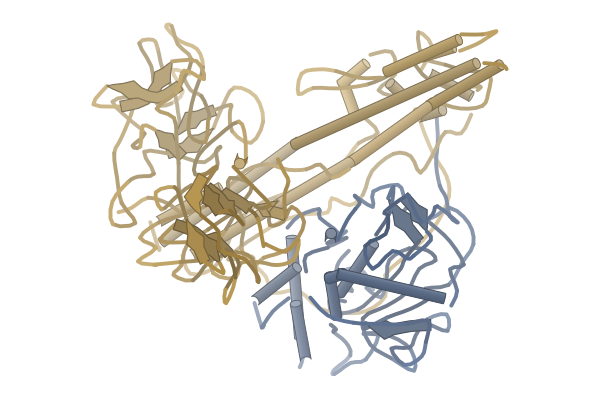
BoNT-like toxin PG1 (P. ghonii)
ボツリヌス毒素に似たPG1は、ジスルフィド結合なしで2本の鎖を抱え込む
PG1の軽鎖・重鎖複合体をクライオ電顕で2.73 Åで解き、昆虫SNAP-25を切る活性も調べた
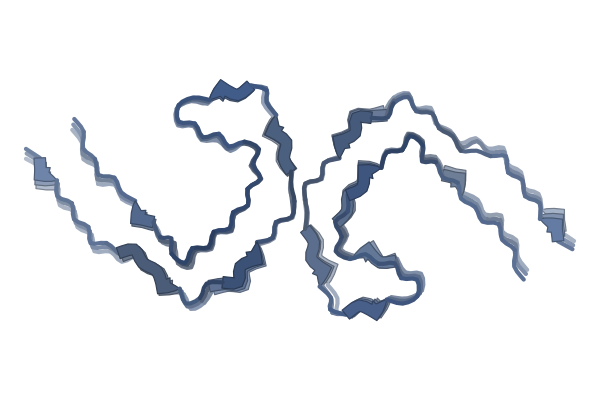
Tau filaments (mouse brain, AD- and CBD-seeded)
ヒト脳のtau線維の形は、マウス脳の中でそのまま受け継がれる
アルツハイマー病と大脳皮質基底核変性症の線維をクライオ電顕で比べた
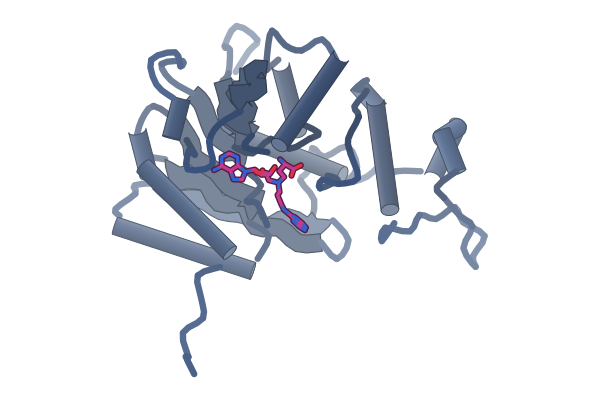
Human METTL16 (RNA m6A methyltransferase)
SAMを緩く握るMETTL16は、RNAが結合すると動きが収まる
遷移状態を模す二基質アナログとの結晶構造(約2.2 Å)に、MDとQM/MMを組み合わせた
HCV E2 core (genotype 6a) + germline Fabs
C型肝炎の抗体は、成熟前でも同じ形でE2に結合する
生殖系列に戻した抗体とE2の結晶構造。親和性を上げた改良E2でも、ナイーブB細胞は増えなかった
SARS-CoV-2 nsp3 macrodomain 1 (Mac1)
GS-441524を作り変え、コロナウイルスのMac1に効く阻害剤を得た
反応液をそのまま測る方法で最適化し、12pとの結晶構造から結合様式を示した。マウスでは効かなかった。
FtsZ (M. tuberculosis)
結核菌FtsZに、断片が結合する新しい部位が15か所見つかった
ONとOFFの2状態が同居する結晶で、断片の結合は状態によって大きく偏った
SRP54 NG mutants (P. furiosus)
SRP54の好中球減少症変異を、古細菌の高分解能構造で調べた
Thr114Ala・Thr116del・Gly225Gluの3変異体の結晶構造を、ヒトの報告と比べた
Carbon nanotube grids (20S proteasome, GroES/GroEL)
カーボンナノチューブの膜は、クライオ電顕の粒子を溶液から直接つかまえる
標識したナノチューブに細胞抽出液から目的の複合体だけを捕まえ、向きの偏りも減らした
2026.10.239
Human dopamine D1 receptor-Gs complex
3つの調節薬の併用で、ドーパミンの効きが1000倍以上に
TM1とTM7の間にある新しい2つの溝に結合する調節薬を、クライオ電顕で解いた
Human DNMT1 with unmethylated nucleosome
DNMT1のCXXCは、CpGを捉えて自らの働きを抑える
ヌクレオソームとの複合体のクライオ電顕構造で、CXXCがTRDへのDNAの接近を塞ぐ配置が見えた
Mouse Regnase-1 PIN domain with suramin
スラミンは、Regnase-1の活性部位に結合する
RNA分解酵素のPINドメインとの2.62 Å結晶構造で、Mg2+への配位とR283との相互作用を示した
Norovirus NS3 AAA+ ATPase hexamer
ノロウイルスのNS3は、割れた座金型の六量体をつくる
可溶型の六量体を2.9 Åで解き、膜を貫くRNA輸送体である可能性をモデルで示した
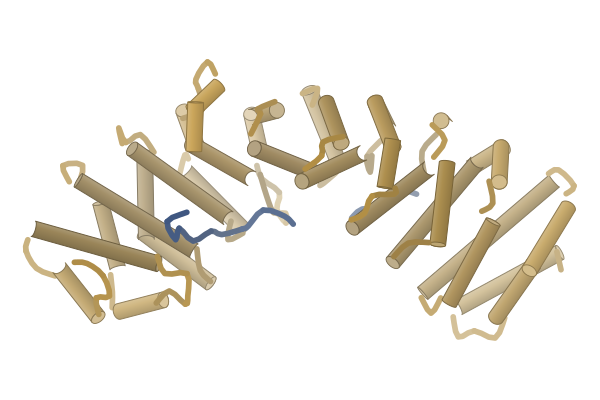
AAV2 VP1 basic regions with mouse importin-α2
AAV2のVP1は、別の組み合わせでもインポーチンαに結合する
BR2が主要・副次どちらの結合ポケットにも入ることを、結晶構造3つで示した
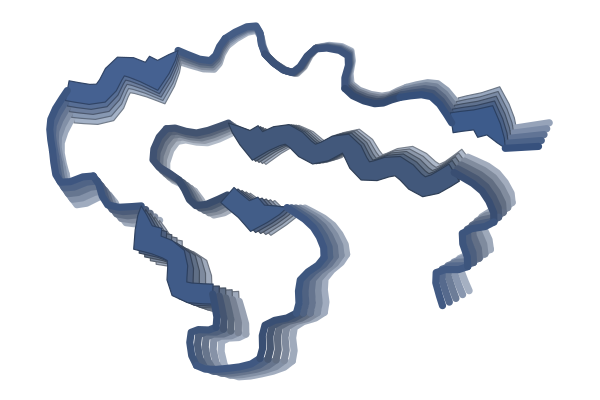
Sup35 prion fibril ([PSI+]-S7, S. cerevisiae)
酵母由来のSup35プリオンは、試験管内のSc4線維と構造が違う
強い型[PSI+]-S7の線維を2.7 Åで解き、線維の安定性が分裂のしやすさを左右するとみられる
CnMetXS (C. necator H16)
MetXSの二量体は、蓋の形が左右で違う
apo構造を1.86 Åで決定。Arg335がスクシニルCoAの選択に関わる可能性がある
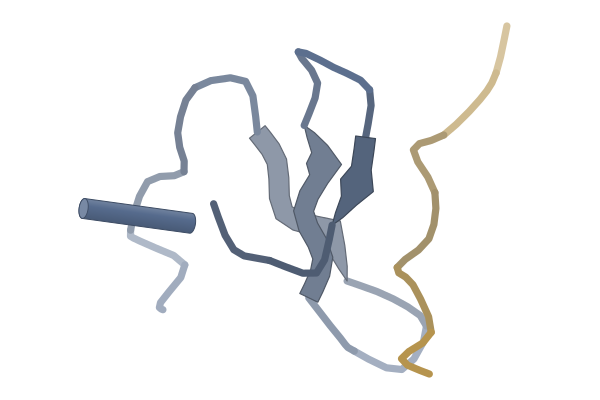
Human YAPWW1 with LATS2 peptide (vs TAZWW)
YAPWW1はTAZWWより熱安定性が低い
LATS2との1.03 Å結晶構造を解き、ペプチドの柔軟さと選択性の関係を探った
Chikungunya virus VLP (ChAdOx1 Chik-derived)
ChAdOx1 ChikのVLPは、天然のウイルスに似ている
VLPのクライオ電顕マップは4 Å、既報のウイルス粒子との相関は0.92
2026.10.228
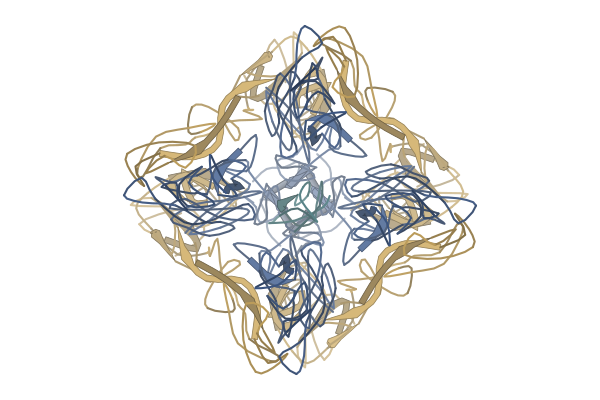
Andes virus (ANDV) Gn–Gc spike with human PCDH1
ハンタウイルスは棘の中央の穴で受容体を捉える
アンデスウイルスのスパイクとPCDH1の複合体を2.6 Åのクライオ電顕で解いた
Semliki Forest virus with human VLDLR
セムリキ森林熱ウイルスは受容体のLA3で捉えられる
VLDLRのLA3がE1のDIIIに結合する様子を3.5 Åのクライオ電顕で示した
Respiratory megacomplex I2III2IV2 (porcine heart)
ブタ心臓の呼吸鎖巨大複合体を5つの状態で捉えた
複合体Iの活性・不活性と複合体IVの位置の対応をクライオ電顕で調べた
Human leptin–LepR complex
レプチン受容体は、非対称な2:2と3:3の複合体をつくる
ヒトのレプチン–LepRをクライオ電顕で3状態解析し、いずれも開いた形だった
Etesevimab (CB6) mutant–SARS-CoV-2 RBD
効かなくなった抗体を、設計し直して復活させた
etesevimab(CB6)を設計し直し、変異株のRBDとの複合体をクライオ電顕で確かめた
RSV prefusion F glycoprotein–RV11 scFv
RV11抗体は、RSVのFタンパク質の2つの抗原部位にまたがる
融合前のFと抗体scFvの結晶構造から、S443P耐性変異のしくみも説明できた
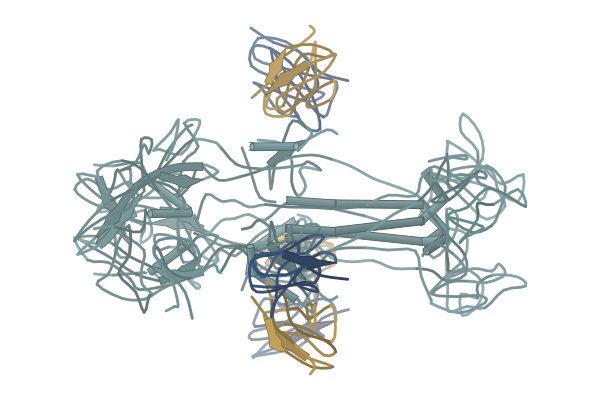
HSV-1 glycoprotein B–D48 Fab
HSV-1 gBに結合する抗体D48は、ドメインIIの軽鎖側に触れる
gBとD48 Fabの3.04 Åクライオ電顕構造。DIIは他のヘルペスウイルスでも抗体の標的になる
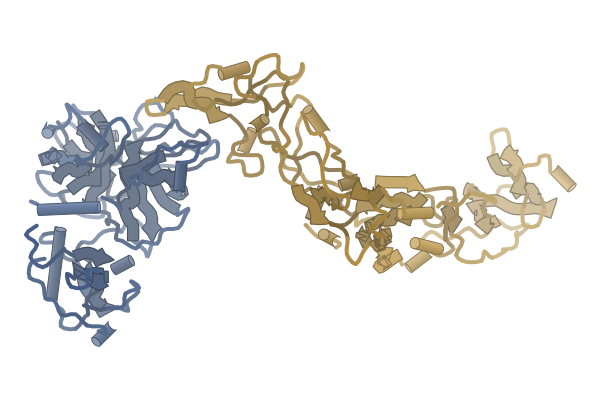
HCoV-HKU1A RBD–human TMPRSS2
HKU1のRBDは、未切断のTMPRSS2にも結合する
2.4 Åの結晶構造で、RBDの向きとβ鎖の形が他の報告と異なっていた
2026.10.216
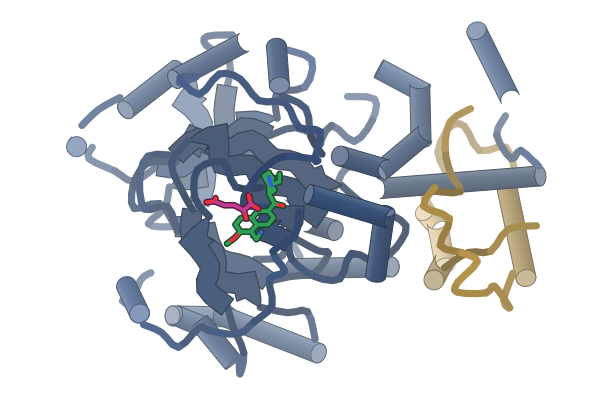
Human KDM2A (lysine demethylase 2A)
KDM2A阻害剤は、基質ペプチドの形をまねて結合する
2OGを必要とする阻害剤183cとの複合体を、2.2 Åの結晶構造で解いた
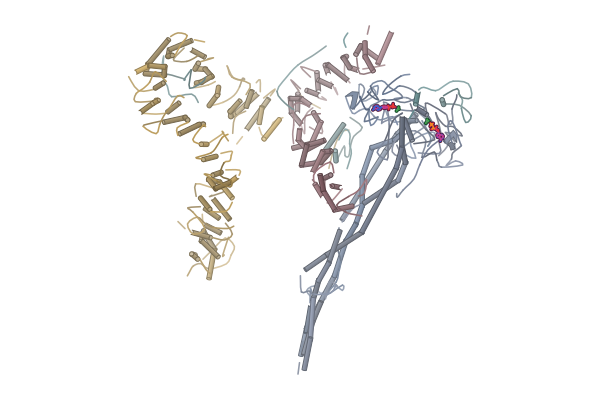
Human condensin II–M18BP1
M18BP1が、コンデンシンIIの自己抑制を外す
CAP-G2が約60 Å動くことで、DNAをはさむ構造に切り替わる
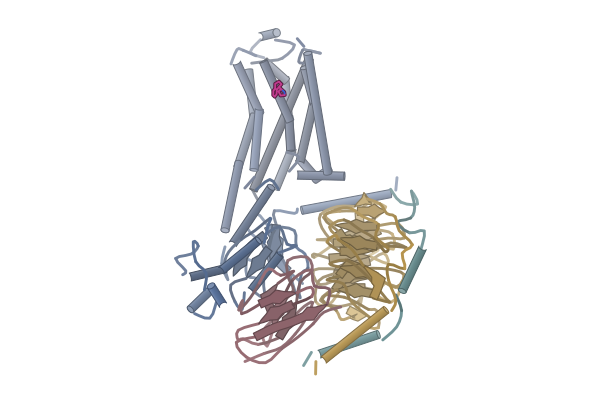
Human TAAR1–Gs complex
ドッキングで探したTAAR1作動薬を、構造で確かめた
6,500万分子をドッキングし、2種の最適化化合物の複合体をクライオ電顕で決めた
Methionine sulfoxide reductase A (mouse)
酸化したMsrAは、C末端で活性部位にふたをする
還元・中間体様・酸化の3状態を結晶構造で解き、Cys107とCys227のジスルフィド結合を見つけた
MmCadA (M. metallidurans)
亜鉛を運ぶATPaseは、N末端で輸送を抑えるらしい
内向き型の結晶構造(3.6 Å)と変異体の活性測定から、取り込み経路とN末端の働きを探った
R2ab of autolysin AtlE (S. epidermidis)
R2abは細胞壁とポリスチレンの両方に結合する
溶液NMRで構造と動きを決め、結合面をPREと変異体で調べた
2026.10.201
TSK/TONSL TPR domain (C. unshiu, X. laevis, human)
植物のTSKは、H3.1の修飾を3か所で読み分ける
K27acとK4me1を収めたTPRドメインの結晶構造と、TONSL変異のDNA修復への影響を調べた
2026.10.1911
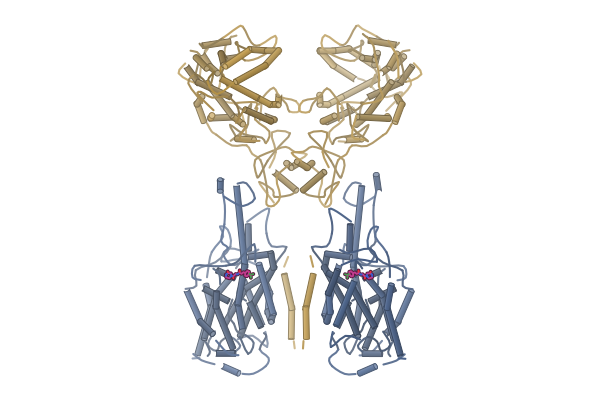
Human B0AT1 (SLC6A19)–ACE2
B0AT1阻害剤は、輸送体を外向きの閉じた状態に固定する
クライオ電顕で設計した阻害剤が、PKUモデルマウスの血中Pheを下げた
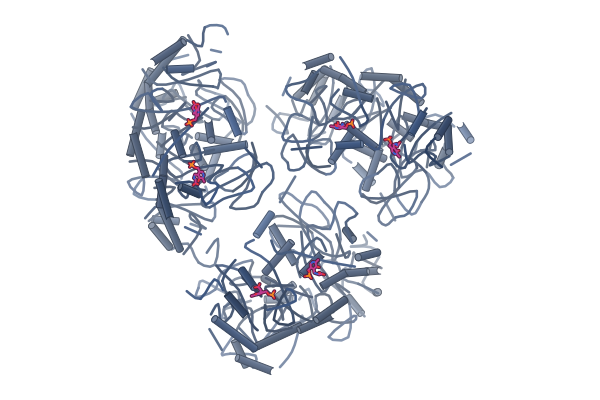
ALAS (S. cerevisiae)
酵母ALASは、基質を受けて下半分ごと動く
グリシン結合型とスクシニルCoA結合型のX線構造で、ヘム合成の最初の酵素の動きを捉えた
A. baumannii F1-ATPase
ε サブユニットが形を変えながら、ATP 合成酵素の中から抜け出す
アシネトバクターの F1-ATPase を6状態で捉え、ε の C 末端ドメインの動きを示した
EMC:Spf1 complex (S. cerevisiae)
膜に入れる装置と抜き出す装置が、小胞体で向かい合って複合体を作る
EMC と Spf1 のクライオ電顕構造で、基質の入口が膜の中で隣り合い、ATP の状態で動くことが分かった
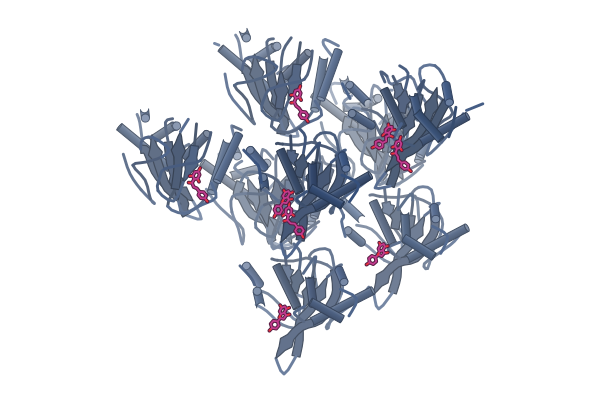
MtCHI-I (Medicago truncatula)
カルコンイソメラーゼは、基質アナログの向きを少しずつ変える
フロレチン結合型の2.0 Å結晶構造で、8分子が異なる姿勢を示した
ChdC H117A (L. monocytogenes)
活性部位のふたが緩むと、ChdCは酸化に弱くなる
H117A変異体のX線構造とMD・速度論から、ふたのループが入口を守る役割を調べた
Human coagulation factor VIII (FVIII)
第VIII因子は、膜に斜めに刺さって固定される
分岐脂質のナノディスクとリポソームでクライオ電顕構造を解き、C2 ドメインが主なアンカーだと示した
A8F5 glucosidase (A. humicola, GH176)
土壌細菌のGH176酵素は、コウジビオースのα-1,2結合を切る
ループを短くして結晶化し、基質との複合体を1.79 Åで解いた
WT1 RMF peptide/HLA-A*02:01 with Q2L Fab
Fab の VH だけで WT1 ペプチド提示を見分ける抗体を設計した
Fab–pMHC の結晶構造から VH 単独の抗体を設計し、T 細胞エンゲージャーとして働くことを確かめた
Polymorphic toxin PT9–PIM9 (bacterial)
毒素は、免疫タンパク質と融合すると作れる
毒性が強く作れなかった3種の毒素を作製し、PT9は1.5 Åの結晶構造で折りたたみを調べた
Fibroblast activation protein (FAP)
結合した場で薬を切り離す、取り込み不要の運搬法
リンカーをFAPのTyr745の近くに置いて放出させ、FAPI部分の結合をクライオ電顕で調べた
2026.10.1810
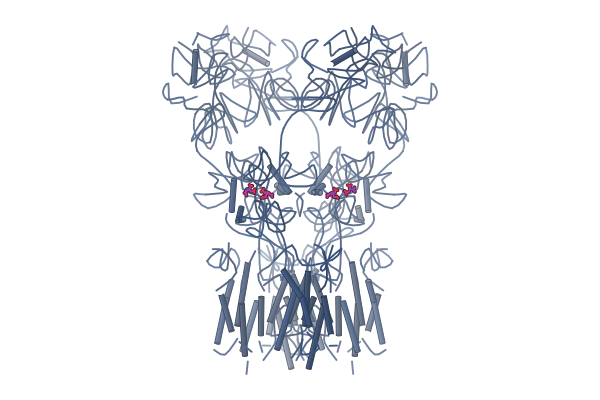
AMPA receptor GluA2–γ2
部分作動薬が、AMPA受容体の開く前の中間状態をとらえた
時間分解クライオ電顕でGluA2–γ2の4つの状態を解析し、ドメインの閉じ角約17°が分かれ道だと示した。
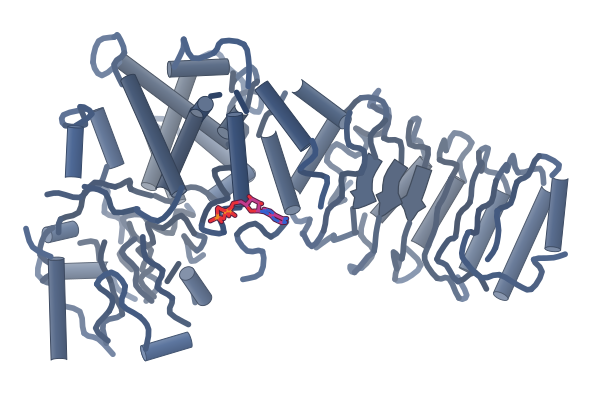
Human NLRP6 (inflammasome sensor)
ATPがNLRP6の各ドメインを束ねて、活性化を抑える
ヒトNLRP6単量体の2つの構造から、別のポケットに入るATPと酸性ループが阻害状態を支えると示した。
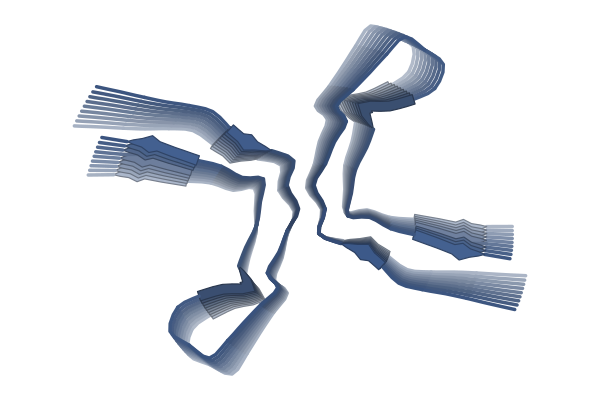
Tau filaments (AD and VT patient brains)
ポリユビキチンの位置が動くと、タウ線維の原線維間の接合面がずれる
ADとVTの患者脳のタウ線維をクライオ電顕で解析し、ユビスタチンBの処理でVT Ia型の接合面が変わった
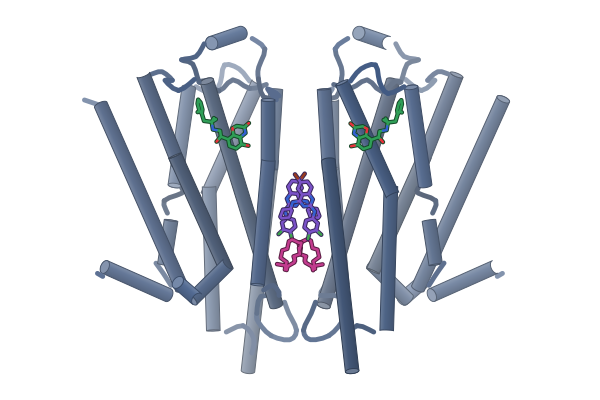
Human β2AR dimer
AP-7-168は分子糊としてβ2ARを二量体にし、アレスチンを遮る
2分子のAP-7-168がTM3・4・5の間に収まって2つの受容体を結びつける様子を、クライオ電顕で捉えた
Human norovirus GII.4 Sydney VP1
ノロウイルスの殻は、抗体が結合すると形を変えて受け止める
流行株GII.4 Sydneyの殻をクライオ電顕で解析。抗体結合で殻タンパク質は11の構造をとる
AsCas12a (ΨDNA guide)
DNAガイドのCas12aは、DNAのヘアピンでPAM認識を真似る
ΨDNAガイドとRNA標的に結合したAsCas12aを、クライオ電顕で解析した
SARS-CoV-2 NSP3 macrodomain (Mac1)
共折りたたみAIは、Mac1に結合する薬の形を半数以上当てる
未公開のMac1–リガンド結晶構造551個で、AF3・Boltz-2・Chai-1を評価した
Photosystem I monomer (T. vestitus)
光合成の光化学系Iの単量体を、温度と界面活性剤で作る
単量体の光化学系Iをクライオ電顕で高分解能に解析し、脂質や界面活性剤の配置を示した
E. coli β-galactosidase · GroEL
乾いたタンパク質は、レーザーで氷を溶かすと水を取り戻して元に近づく
ソフトランディングしたβ-ガラクトシダーゼを、30 µsのレーザー融解で再水和して解析した
Human Pin1 WW domain + AIE peptide F11
AIE蛍光色素は、タンパク質に結びつくと環の回転が止まって光る
ペプチドをつないだAIE分子とhPin1-WWドメインの複合体を、NMRの溶液構造で解析した
2026.10.163
Mouse TASK-2
TASK-2は細胞内が酸性になると、ジッパー状の門と脂質で閉じる
5つのクライオ電顕構造で解析。麻酔薬ブピバカインは脂質と同じ部位に入る
Human MRGPRX4 (itch receptor)
拮抗薬は別の場所に結合し、MRGPRX4の作動薬の結合を妨げる
クライオ電顕の3状態で、拮抗薬の結合に伴いE247が作動薬のリン酸の結合部位へ入り込んでいた
Human Keap1 Kelch domain
ランダムな環状ペプチドから、細胞内で働くKeap1阻害剤を得た
15,360種から選んで改良し、Keap1との結晶構造で結合の仕方を確かめた
2026.10.152
PfRIPR (P. falciparum)
増殖を抑える抗体は、マラリア原虫PfRIPRの尾部を折り曲げる
抗体4種との複合体を解析し、折れ曲がりを起こさない抗体は増殖を抑えなかった
Human IgLON5–Fab 2513
IgLON5抗体は二量体を壊さず、受容体の集合を促しうる
患者の抗体Fabとの複合体を3.7 Åで解析し、第2Igドメインへの結合を示した
2026.10.144
Human glutamine synthetase (GS)
ヒトのグルタミン合成酵素は、産物で繊維になり働きを弱める
時間分解クライオ電顕で、繊維の接合面にグルタミンが入ることを確認した
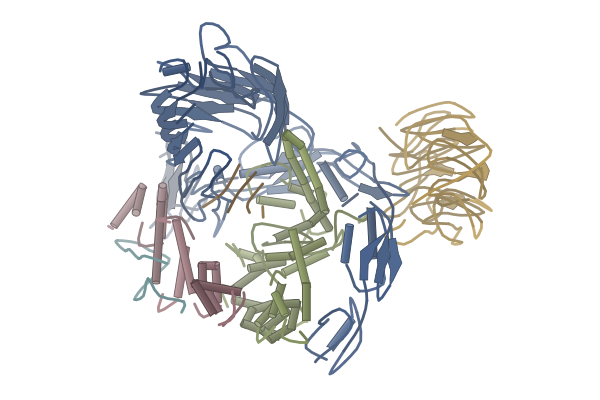
E. coli BepA–BAM complex
BepAはフタ状の部分を外膜に差し込み、BAMで活性化する
BAM複合体と結合したBepAのクライオ電顕構造で、α6-lidが外膜に入り、AI-plugが外れていた
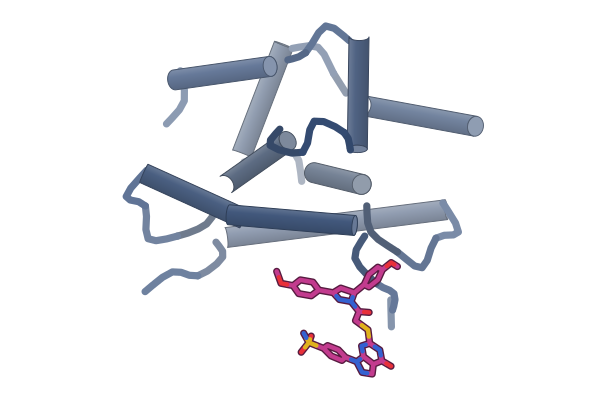
ClpC NTD (S. aureus)
黄色ブドウ球菌ClpCを活性化する低分子が8種類見つかった
結晶構造でCpd-8が疎水性の溝に入ることを確認し、他の化合物の結合部位は計算と変異で絞り込んだ
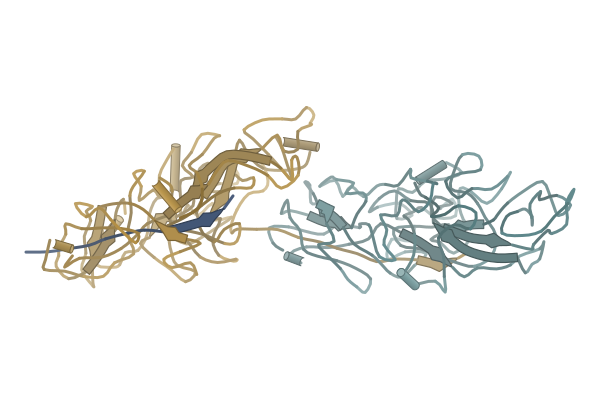
Mfa1 fimbriae (P. gingivalis)
歯周病菌のMfa線毛は、プロテアーゼによる鎖の交換でつながる
重合したMfa1の線維を3.0 Åのクライオ電顕で解析し、Ca2+の結合も確かめた
2026.10.121
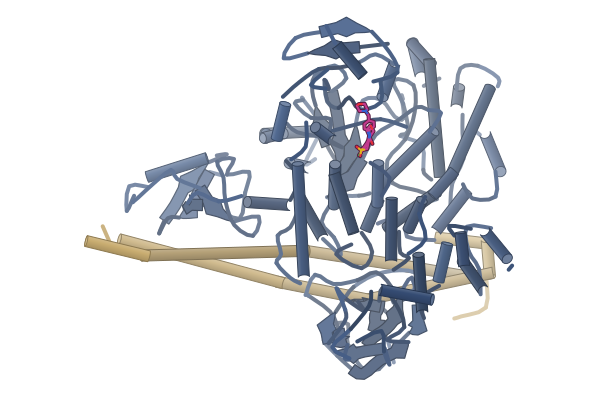
Human PI3Kδ (p110δ)
ロギノリシブは、PI3Kδ末端のヘリックスを安定化して阻害する
結晶構造ではkα12は見えず、MDとHDX-MSでイデラリシブとの違いが現れた
2026.10.113
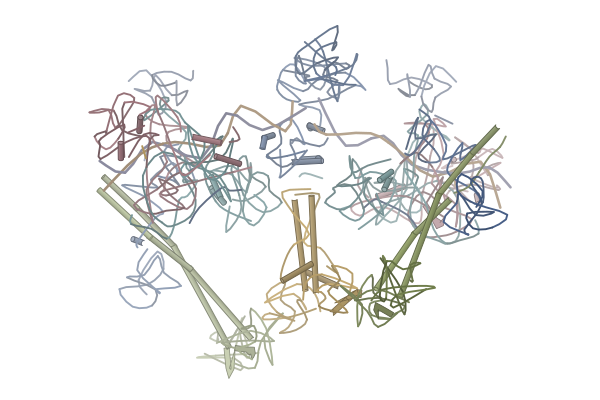
Human NHEJ short-range complex + Pol λ
DNA修復の複合体に、Pol λはBRCTとN末端で取り付く
Pol λとPNKPは同じ複合体の中で協力して、切れた末端を整える
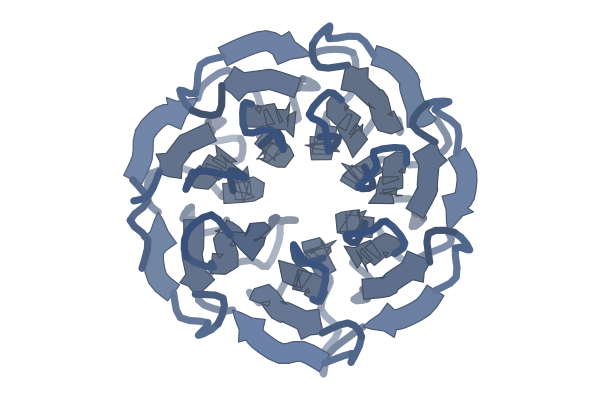
Mouse WDR5–PER2 WBM peptide
体内時計のPER1とPER2は、WDR5の別々の場所に結合する
PER2はCRYと取り合う場所に、PER1は別の場所に結合する。PER2側を結晶構造で確認した
PSII C2S2 (Arabidopsis)
強光と高温でPSIIはアンテナを失い、重炭酸イオンも抜ける
シロイヌナズナのPSIIを2.74 Åで解析。D1のHis252が内側を向き、自己切断を招く可能性がある
2026.10.106
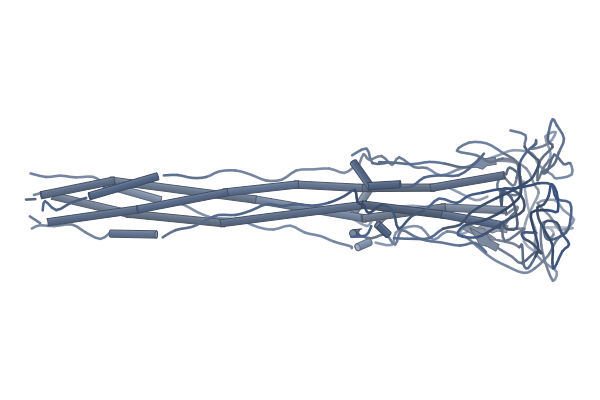
MERS-CoV spike–DPP4
MERS-CoVスパイクの活性化を、時間を追って捉えた
受容体DPP4と1〜120時間反応させ、融合後のS2を3.23 Åで解析した
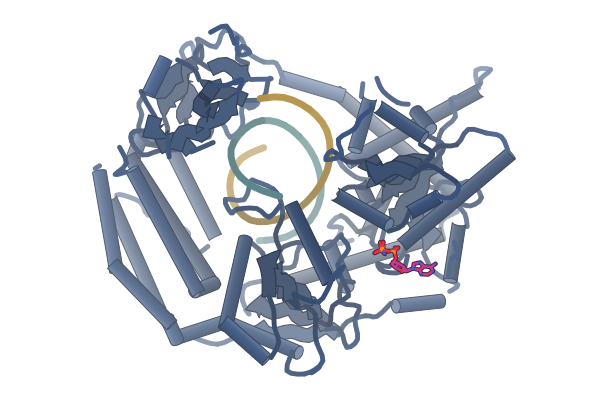
MDA5 (IFIH1)–dsRNA
T331Iは、短いdsRNAでも安定なフィラメントを作る
ATPの配置が乱れて加水分解が止まる様子を、クライオ電顕で見た
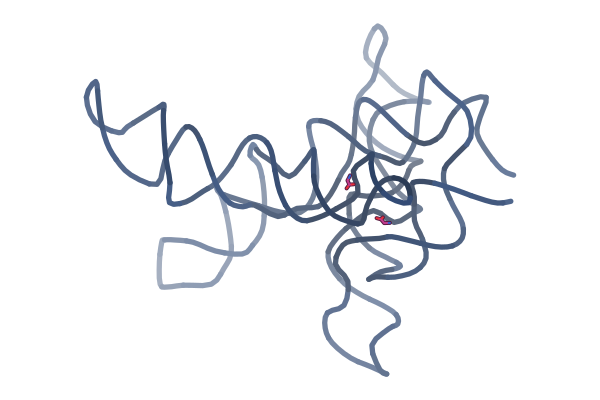
Glycine riboswitch (V. cholerae)
Mg²⁺とグリシンは、リボスイッチの折りたたみを協調して支える
RNAだけの2.9 Å構造。折りたたんだ分子の割合は、Mg²⁺のみで約1/3、グリシン追加で約2/3
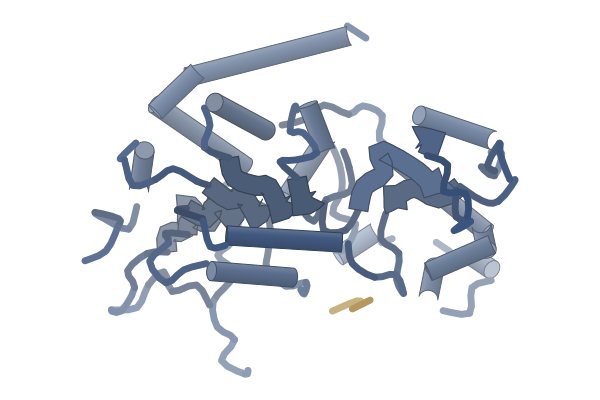
SIRT2 / SIRT5 (peptide complexes)
サーチュインは、N-メチル化されたアシルリジンを外せない
SIRT2とSIRT5の結晶構造では、基質の位置が乱れ、切断に向かない向きになっていた
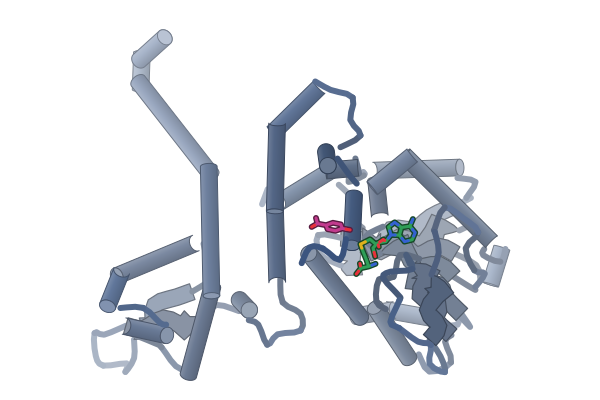
PoOMT1 (Paeonia ostii)
PoOMT1のT字型ポケットは、2種類の基質を受け入れる
ボタンの根の4′-O-メチル基転移酵素。触媒三残基はHis262・Asn263・Gln324だった
Pixantrone–AP-site DNA
ピキサントロンは脱塩基部位と結合し、2種類の異性体を生じる
NMR構造では、どちらの異性体もDNAに挿入され、向かいのシトシンを押し出す
2026.10.094
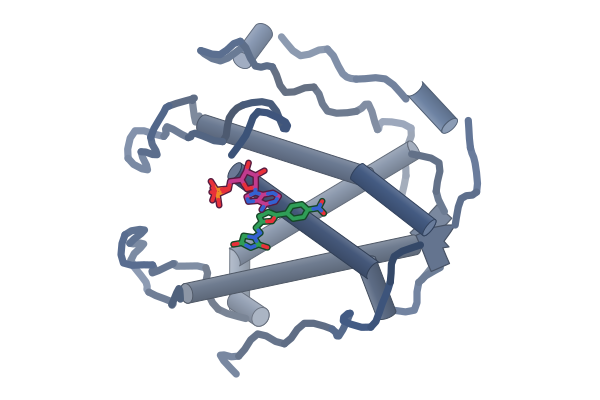
RyR1 (rabbit skeletal muscle)
ダントロレンは、ATPやADPと積み重なってRyR1に結合する
RY12ドメインがATP:ADP比のセンサーとして働く可能性がある(実証は今後)
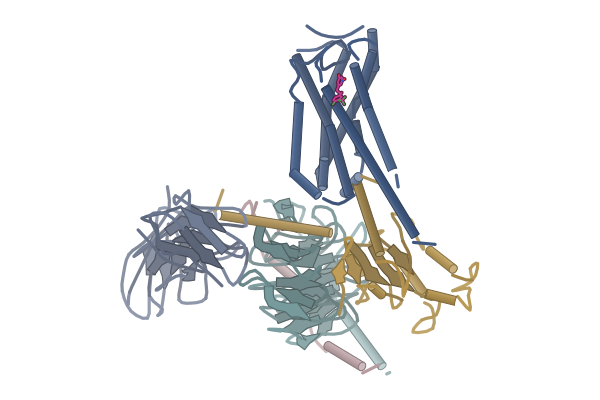
Human GPR84–Gi
CF3基が2つの残基を押しのけ、β-アレスチンの動員を抑える
GPR84–Gi複合体の構造。Leu336AlaとPhe187Alaの変異で動員が回復した
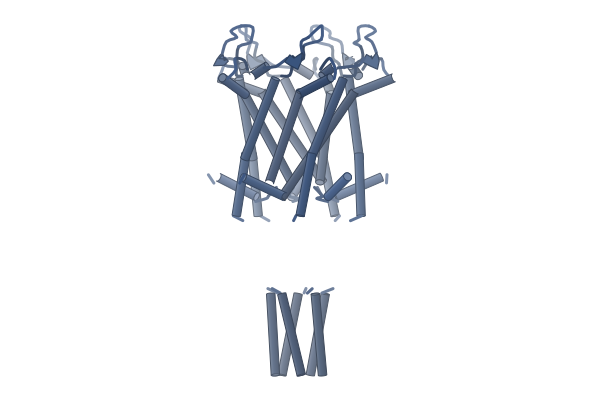
E. coli MscL (WT, G22S)
G22S変異体でもMscLは閉じたままで、違いは動態に現れた
ナノディスク中の大腸菌MscLを、クライオ電顕(3.5〜3.7 Å)とNMRで解析した
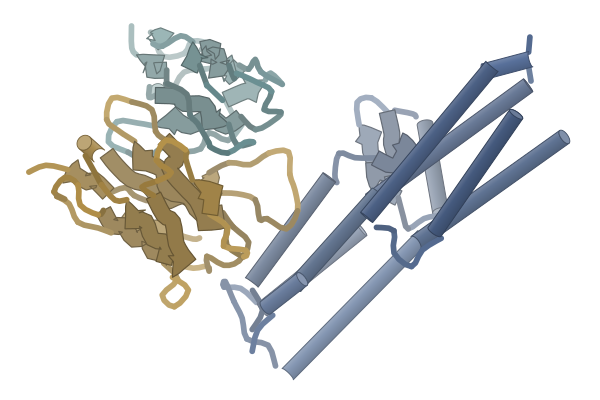
Shigella IpaD–antibody Fab
IpaDへの結合部位で、抗体の溶血への効果が分かれる
赤痢菌IpaDと抗体Fabの複合体。遠位ドメインに結合すると溶血を抑え、N末端ドメインでは高めた
2026.10.084
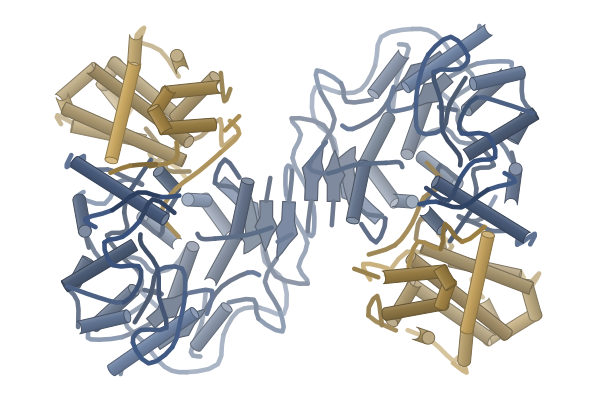
QatBC (E. coli QatABCD)
QatBのN末端が、QatCの活性部位に入り込んでいた
抗ファージ防御系QatBCの結晶構造。挿入部に変異を入れると防御が弱まった
FlhAC A489E (Salmonella)
A489Eは塩橋網を組み換え、基質切り替えを助ける可能性がある
サルモネラのFlhAC A489E抑制変異体の結晶構造。Arg-386周辺の塩橋網が変わっていた
HIV-1 protease PRp51
HIVプロテアーゼでは、離れた置換が活性部位を広げる可能性がある
14置換のPRp51とダルナビルの結晶構造では差が小さく、違いはMDで現れた
Firefly luciferase (during translation)
ホタルルシフェラーゼは、翻訳されながら少しずつ折りたたまれる
力プロファイル解析とクライオ電顕(平均2.3 Å)で、リボソーム上の新生鎖を追った
2026.10.073
Human PARP2–HPF1 / nucleosome
PARP2は、ヌクレオソームの2周にまたがって切断を認識する
阻害剤はDNA結合面を固めており、PARP2がクロマチンに捕捉される理由の説明になりうる
LbCas12a Lid2 mutant
Lidをループに置き換えると、Cas12aは非標的鎖だけを切る
Lid2変異体のクライオ電顕構造(2.5 Å)では、標的鎖を活性部位に装填する動きが妨げられていた
E. coli NNT (PntA/PntB)
NNTは基質の結合でdIIIを外し、プロトン通路を切り替える
全長の大腸菌NNTを複数の状態で解析。阻害剤パルミトイルCoAはapoに近い状態で固定する