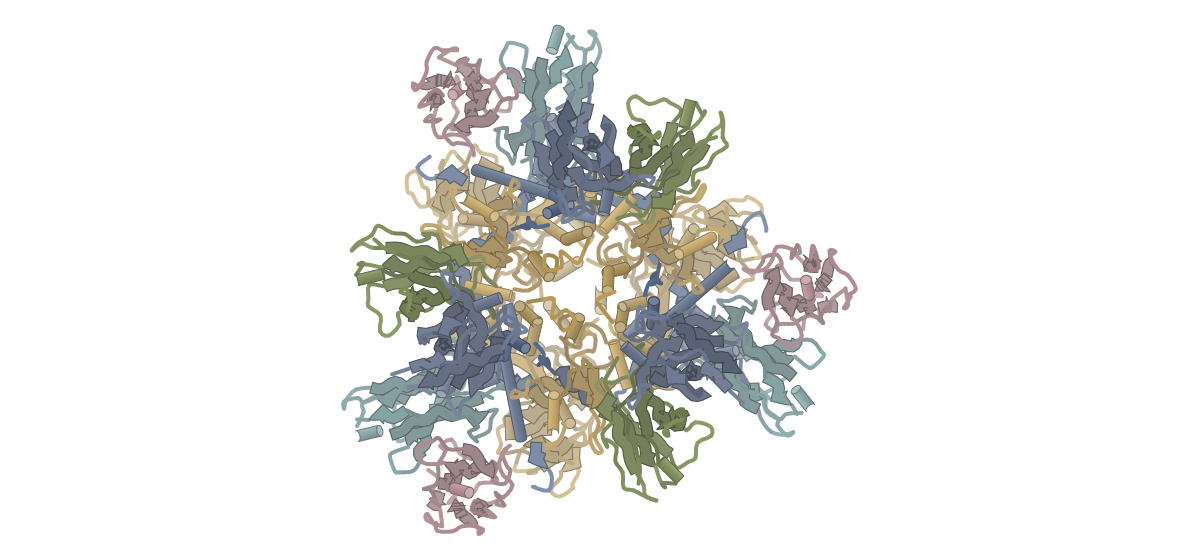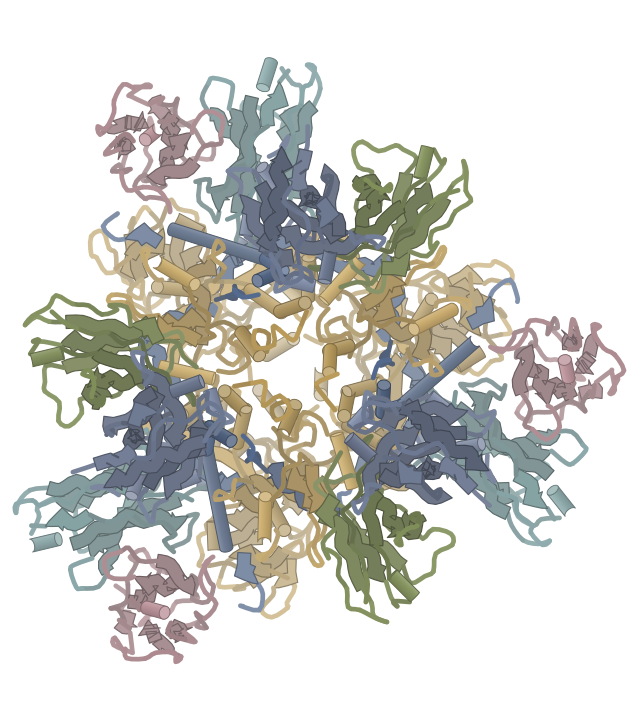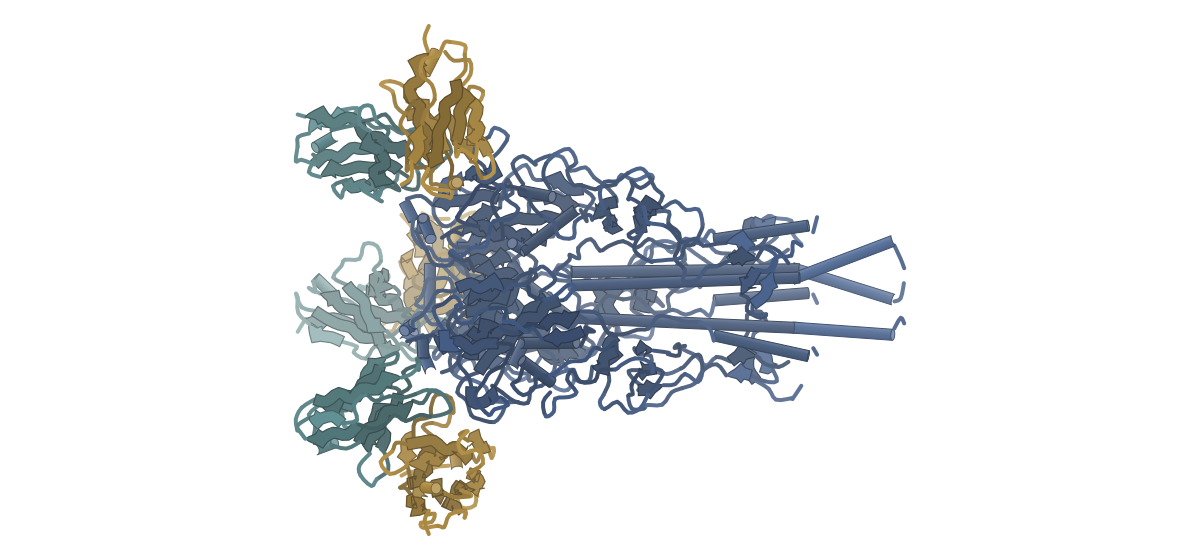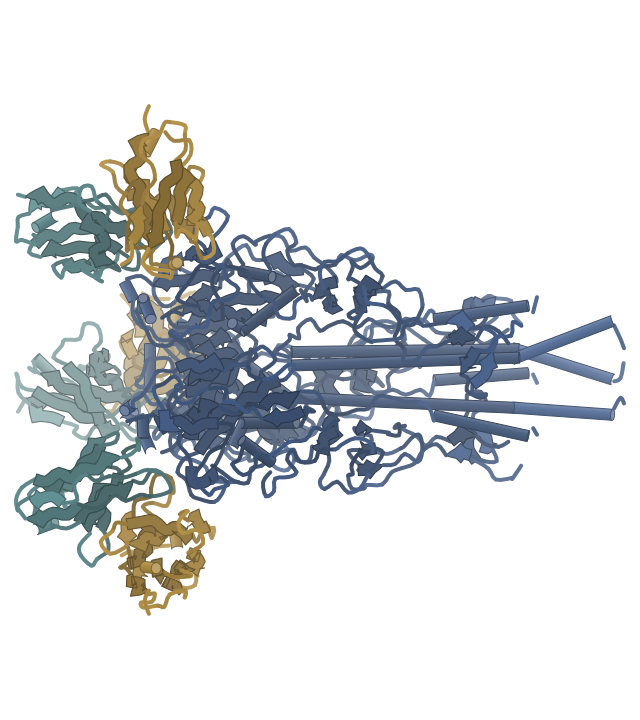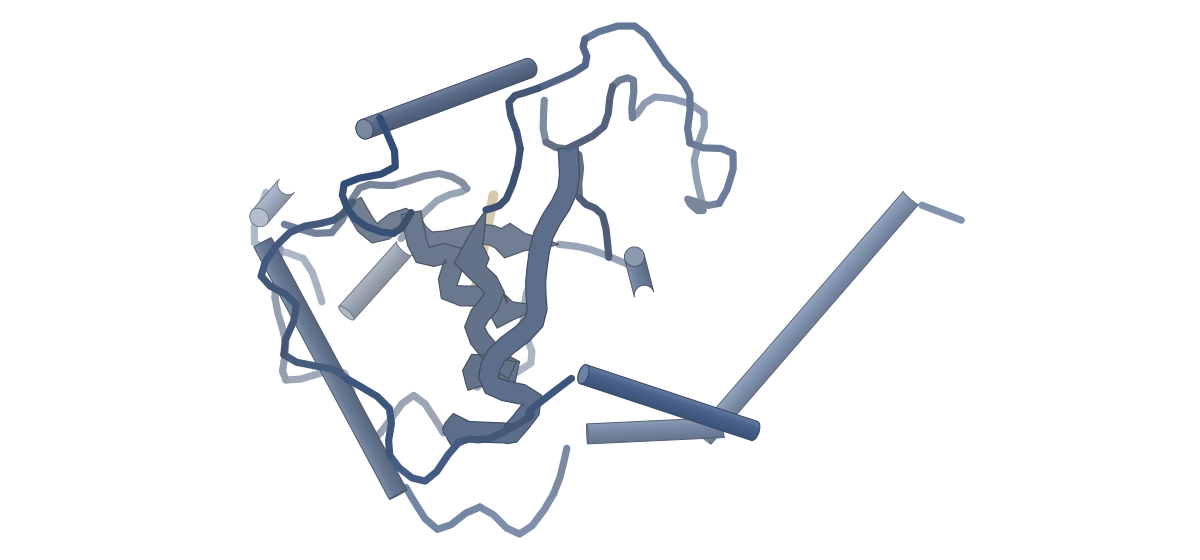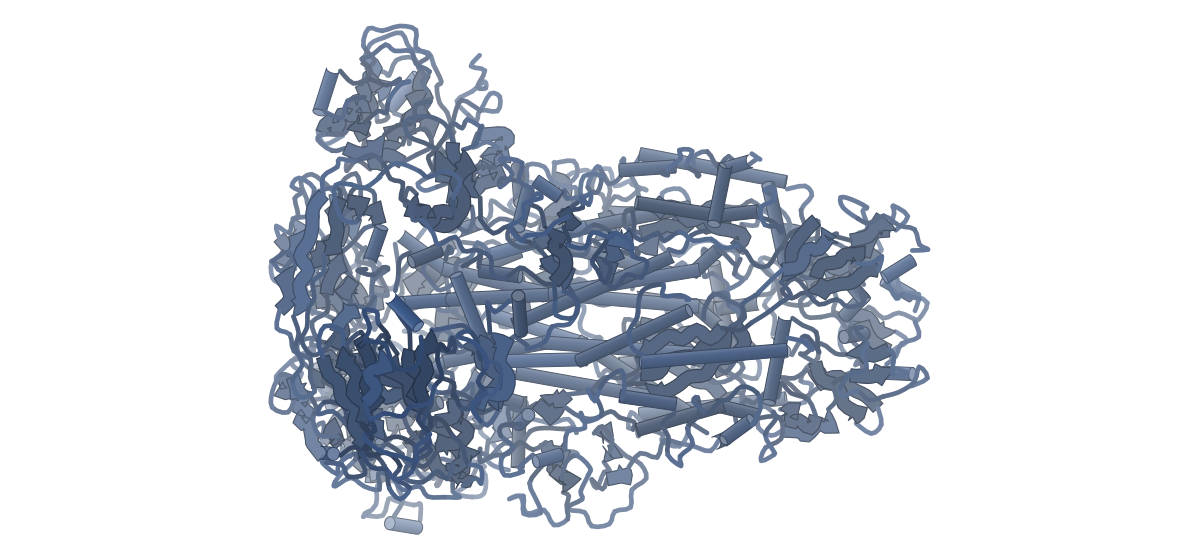
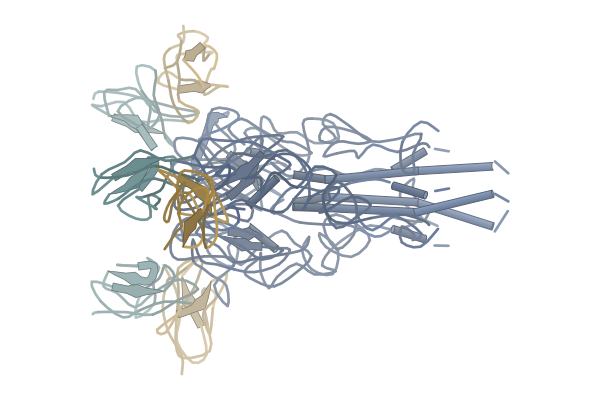
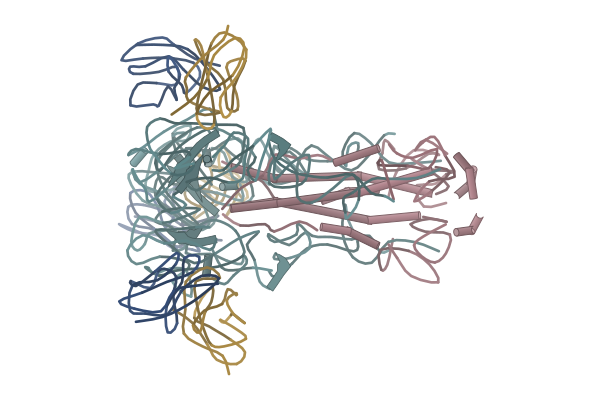
テロメラーゼ阻害剤は、予想外の場所に結合していた
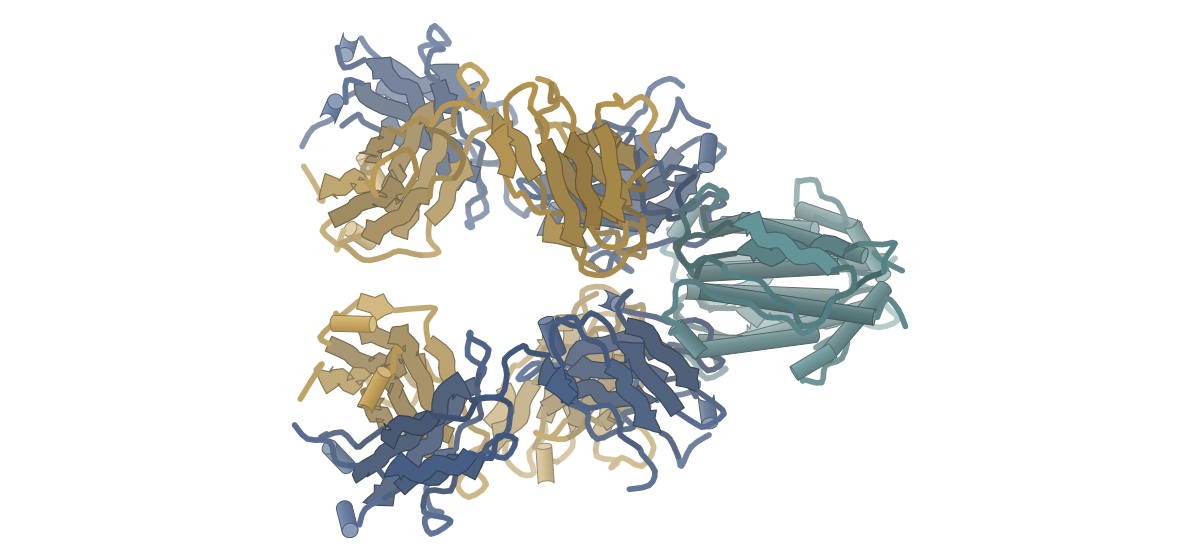
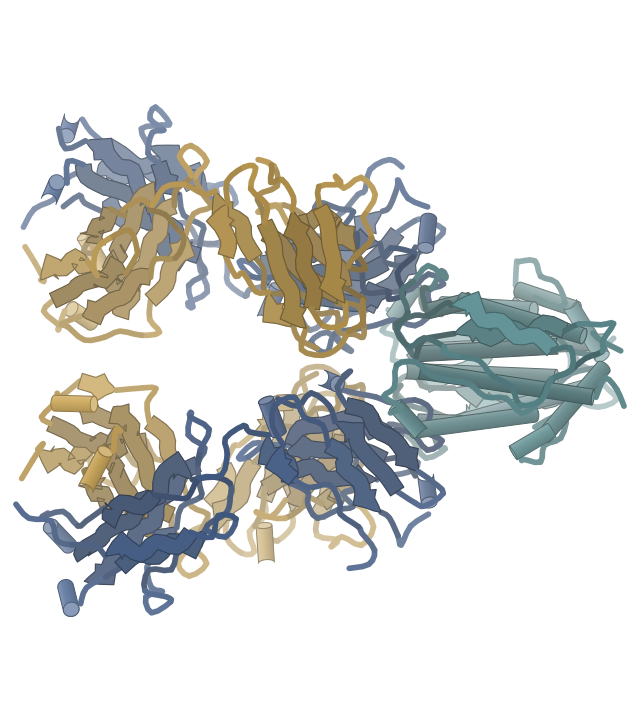
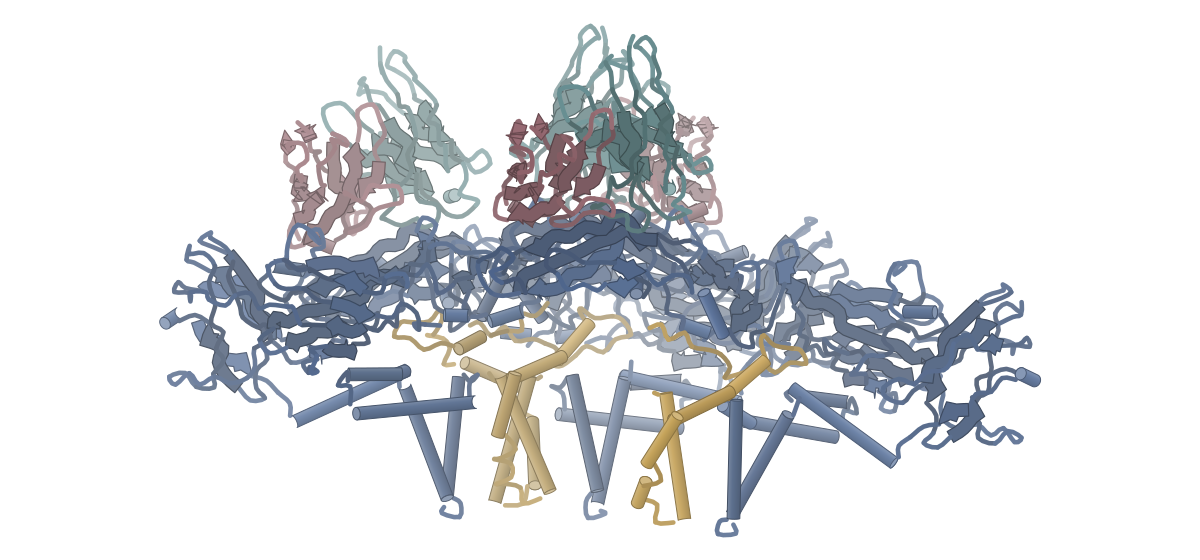
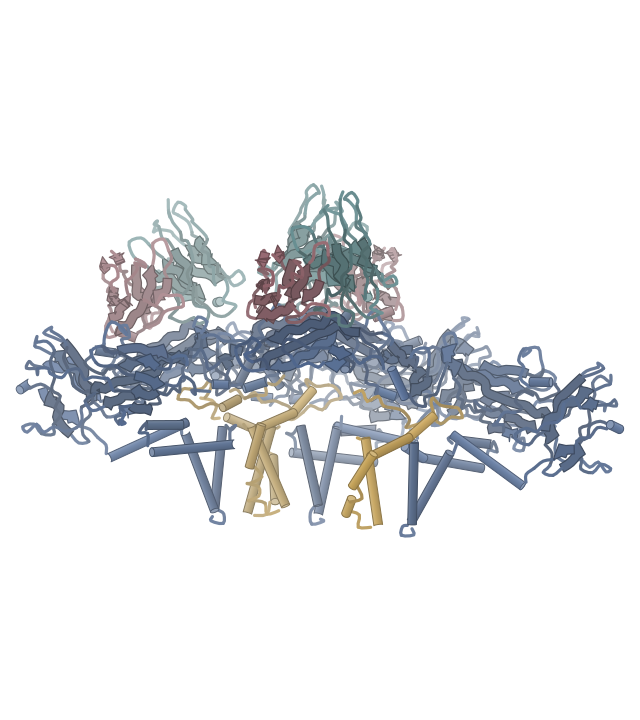
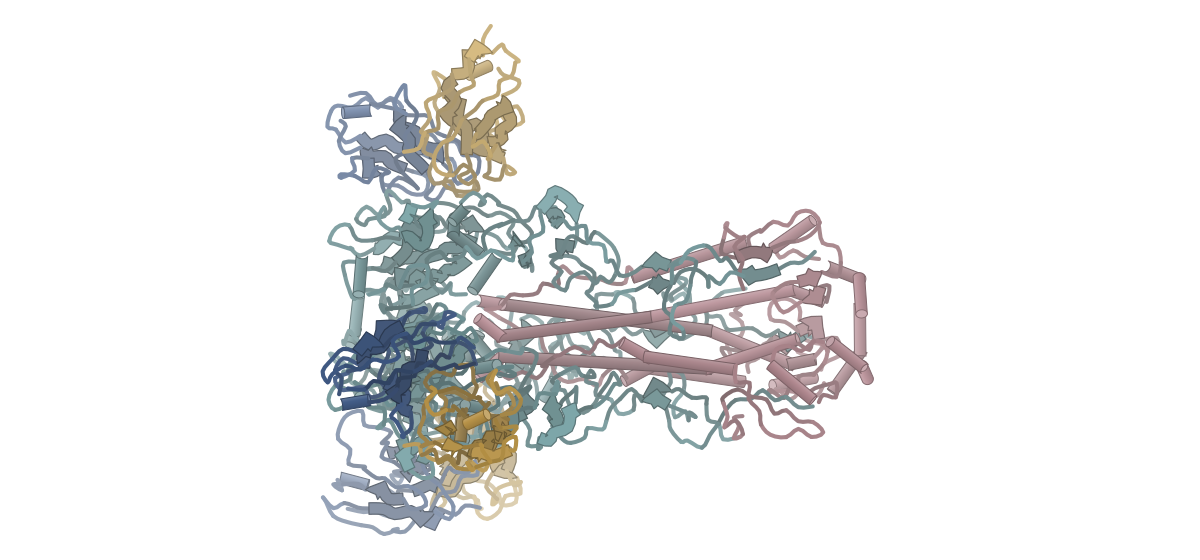
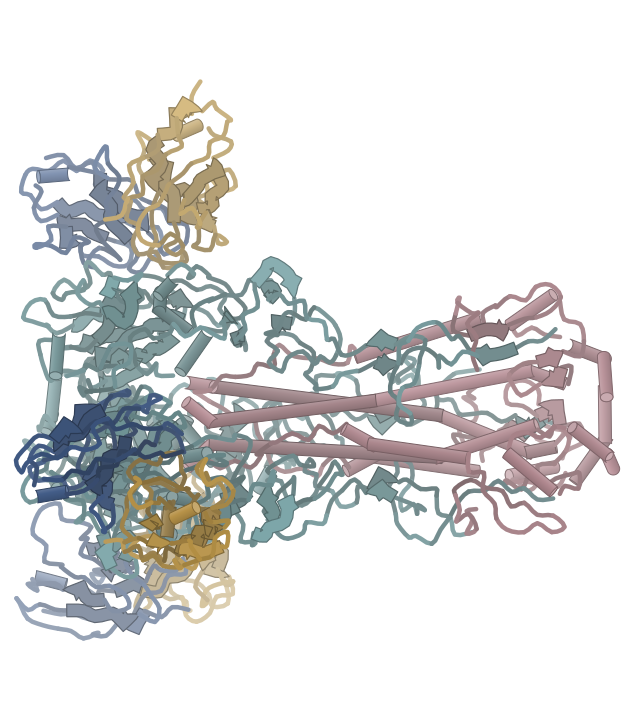
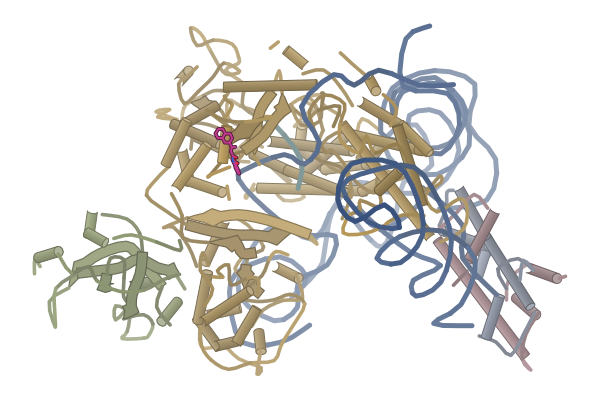
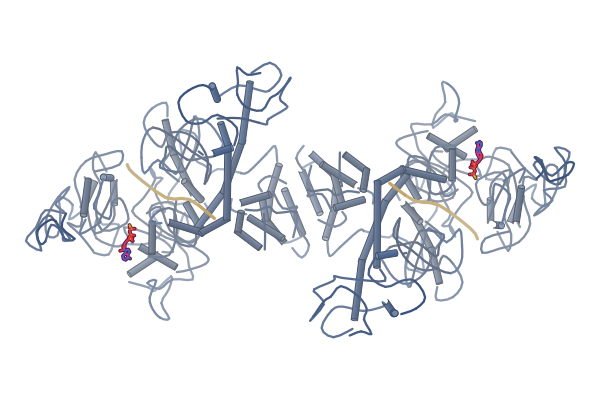
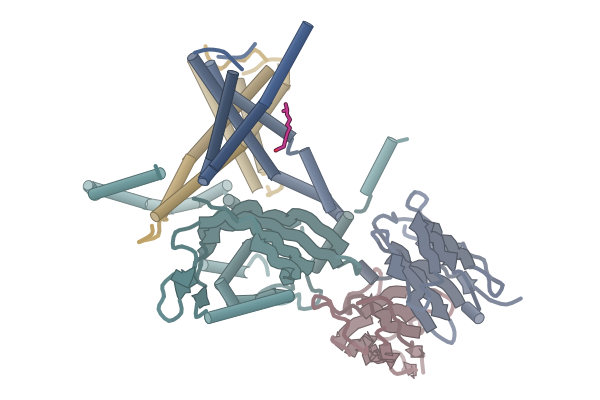
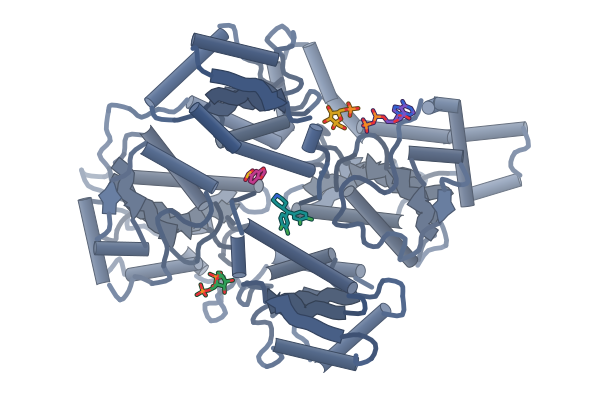
BIBR1532との複合体を9つ解き、活性部位から離れた袋で最初の伸長段階を遅らせると示した
3D を読み込んでいます
Proteins & Nucleic Acids
- TERT(逆転写酵素)Telomerase RNA
- テロメラーゼRNATelomerase reverse transcriptase
- テロメア配列の鋳型Telomeric repeat substrate
- ヒストンH2BHistone H2B type 1-C/E/F/G/I
- ヒストンH2AHistone H2A.J
- ACD(TPP1)Adrenocortical dysplasia protein homolog
Ligands
- BIBR1532
55C2-{[(2E)-3-(naphthalen-2-yl)but-2-enoyl]amino}benzoic acid
- 疑問・課題
- テロメラーゼと阻害剤の複合体の構造がなく、阻害剤を構造から設計し改良することが難しかった。
- アプローチ
- 阻害剤BIBR1532の有無とヌクレオチド類似体の有無で、ヒトテロメラーゼの9つの構造をクライオ電顕で調べた。
- 結果
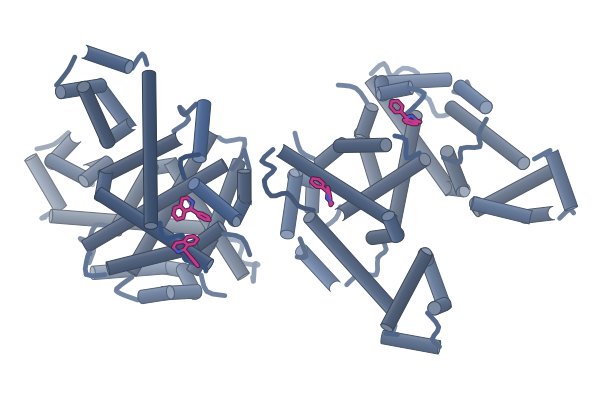
- BIBR1532はTERTのフィンガーとパームの間の袋に入っていた。阻害は最初の伸長段階で約60%と大きかった。
- わかったこと
- BIBR1532は活性部位を直接ふさがず、鋳型とDNAの二本鎖が位置を移す動きを妨げて阻害すると考えられる。
Highlights
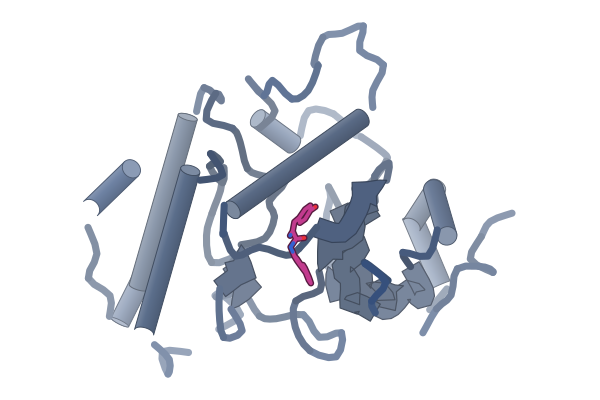
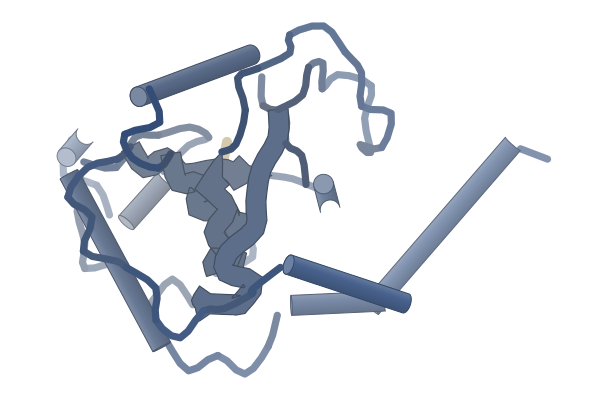
BIBR1532はTERT C末端側の領域に結合するという従来の予想とは違い、逆転写ドメインのフィンガーとパームの間の深い袋に入っていた。活性部位から約12 Å離れている。
原文
“Instead, we observed a distinct density within a deep pocket on the RT domain”Results
多くのDNAポリメラーゼはdNTPが入るとフィンガーが閉じるが、TERTではTRBDがフィンガーを固定し、動きは1 Å未満だった。この硬さが、テロメラーゼの遅い反応と低い正確さを説明すると論文は述べている。
原文
“Notably, the finger loop in the nucleotide-binding pocket shifts <1 Å when dTpNHpp is added, with or without BIBR1532”Results
従来の誘導体設計は別の昆虫由来TERTの結合部位を手がかりにしていた。ヒトTERTの結合袋の構造は、それらが効果を高められなかった理由を説明し、改良の道すじを示す。
原文
“These findings also explain why previous SAR studies to optimize the original BIBR1532 on the basis of the TcTERT model have not produced more effective inhibitors.”Discussion
Lab Notes
- 発現系
- ヒト培養細胞(HEK)でTERTとTERを共発現してテロメラーゼを再構成した。
- コンストラクト
- TERTにZZタグとStrepタグを付け、TPP1のOBドメイン(88–249)を後から加えた。
- 精製
- IgGアガロース、ストレプトアビジンアガロース、MagStrep XTの順に精製した。
- 結晶化/グリッド作製
- 1 µMのBIBR1532と1 mMのdNTP類似体を加え、グラフェン酸化物の膜つきグリッドをVitrobot Mark IVで凍結した。
- データ収集・解析
- Titan Krios(300 kV)で撮影し、cryoSPARCで処理した。
Related Articles
- 10.23 · 06DNMT1のCXXCは、CpGを捉えて自らの働きを抑える同じファミリー(Pfam):Histone、Histone_H2A_C
- 10.18 · 05PRC1は4つのサブユニットを密に組み、E2酵素をヌクレオソーム上に置く同じファミリー(Pfam):Histone、Histone_H2A_C
- 10.09 · 02Kuはヌクレオソームの末端で、約2巻き分のDNAをほどく同じファミリー(Pfam):Histone、Histone_H2A_C