Contents

5 Articles
  1. 構造図:ポドファージA1002(緑膿菌)

    Picked up·New Structure

    Podophage A1002 (P. aeruginosa)

    緑膿菌ファージA1002は、尾の繊維を2種類のタンパク質で組む

    完全な粒子をクライオ電顕で解析。ノズルが2つのタンパク質に分かれ、尾に6本の鎖状繊維が巻きつく
  2. Structure Update

    Doc2B–Munc13-1 complex

    Doc2Bは、Munc13-1がシンタキシンを開く部位をふさぐ

    AI設計の結合タンパク質を使ってクライオ電顕で複合体を解析。膜に結合すると阻害が外れる可能性も示した

  3. 構造図:20Sプロテアソーム(熱帯熱マラリア原虫)

    Structure Update

    20S proteasome (P. falciparum, human)

    シリンゴリン類縁体は、マラリア原虫のプロテアソームを選んで阻害する

    原虫とヒトの20Sプロテアソームとの複合体をクライオ電顕で解き、選択性の手がかりを探った

  4. 構造図:CDK12/サイクリンK(ヒト)

    Structure Update

    Human CDK12/Cyclin K

    ZLC853は、CDK12のCys1039に共有結合する経口薬候補だ

    共結晶構造と質量分析で結合を確かめ、前立腺がんのモデルで腫瘍の増殖を抑えた

  5. 構造図:WRAP設計タンパク質+MspA

    Structure-Based Study

    WRAP-MspA (M. smegmatis porin A)

    設計タンパク質WRAPで包むと、膜タンパク質が水に溶ける

    既存構造をもとに設計し、抗酸菌のポリンMspAを包んだ複合体をクライオ電顕で2.95 Å解析した

Picked up Today’s Structure2026.11.051 Article

緑膿菌ファージA1002は、尾の繊維を2種類のタンパク質で組む

完全な粒子をクライオ電顕で解析。ノズルが2つのタンパク質に分かれ、尾に6本の鎖状繊維が巻きつく
PaperA split nozzle and two-protein chain-like fibers define the tail architecture of Pseudomonas aeruginosa podophage A1002

First authorHao Pang (Hunan Normal University, China)

CorrespondingJing Zheng, Hongrong Liu (Hunan Normal University, China)

JournalPLOS Biology

Published2026.11.01

LicenseCC BY 4.0

構造図:ポドファージA1002(緑膿菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

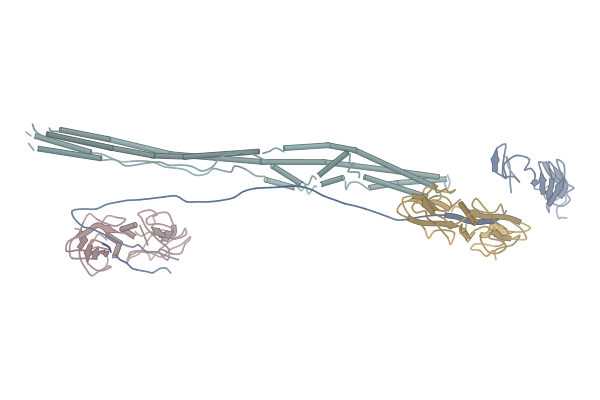
  • ノズルロープ gp39(ノズル)Structural protein
  • 繊維 gp41(根元側)Structural protein
  • 尾管 gp37(尾)Structural protein
  • 繊維 gp40(先端側)Structural protein
疑問・課題
緑膿菌に感染するファージの高分解能構造は少なく、耐性株に感染するポドファージではDEVしか調べられていなかった。
アプローチ
カルバペネム耐性緑膿菌に感染するポドファージA1002の成熟粒子をクライオ電顕で解析し、AlphaFold3の予測も使って構成タンパク質を同定した。
結果
頭部から尾まで11種類の構造タンパク質を同定した。ノズルは2つのタンパク質に分かれ、尾に6本の鎖状繊維が巻きついていた。
わかったこと
ノズルの働きは2つのタンパク質に分担されていた。繊維は2種のタンパク質の二量体でできており、有尾ファージでは初めての報告という。

Highlights

一般的なポドファージのノズルは1本のタンパク質でできているが、A1002ではgp39とgp42が欠けた部分を補い合い、1つのノズルとして働く。祖先型の1本が2つに分かれたものと論文は提案する。

原文

“Through this structural complementation, the nozzle-rope protein and the nozzle-base protein together reconstitute the architecture and function of a canonical nozzle protein.”Results

11組の繊維二量体がノズルのgp39に沿って並ぶ。先端側の7組はgp40でできた短く幅広い形、根元側の4組はgp41でできた細長い形をとる。根元側は標的探索の柔軟性、先端側は感染の合図を伝えるスイッチとして働く可能性がある。

原文

“Dimers 1–7, located proximally at the distal tip and exhibiting a “stacked” arrangement, are shorter and wider”Results

尾全体のマップと尾の先端の局所マップを統合し、gp39と鎖状繊維の全体の密度を得た。ポータルとコラーの間の「結合タンパク質」は柔らかく、構造を決められなかった。

原文

“However, this protein could not be resolved structurally, most likely due to its inherent flexibility”Results

Lab Notes

発現系
緑膿菌BP38-1にファージを感染させて増殖
精製
PEG沈殿ののち、CsClの段階勾配で超遠心して精製
結晶化/グリッド作製
Quantifoil R2/2グリッドに3 µLを載せ、Vitrobotで凍結
データ収集・解析
Titan Krios G4とFalcon 4iで撮影。頭部3.4 Å、ポータルとノズル3.1 Å、尾全体3.3 Åで再構成

Related Articles

Structure Update2026.11.053 Articles

Doc2Bは、Munc13-1がシンタキシンを開く部位をふさぐ

AI設計の結合タンパク質を使ってクライオ電顕で複合体を解析。膜に結合すると阻害が外れる可能性も示した

PaperCryo‐EM and NMR Reveal a Membrane‐Gated Doc2B–Munc13‐1 Complex and a Helical Doc2B‐SNARE‐Binding Interface

First authorCyrus T Rastegar (University of Texas Southwestern Medical Center, USA)

CorrespondingJosep Rizo (University of Texas Southwestern Medical Center, USA)

JournalAdvanced Science

Published2026.11.03

LicenseCC BY 4.0

構造図:Doc2B・Munc13-1複合体
疑問・課題
Doc2BがMunc13-1やSNAREとどう結合し、その相互作用がどうつながるのかが分かっていなかった。
アプローチ
AIで設計したMunc13-1結合タンパク質を補助に使ってDoc2B・Munc13-1複合体をクライオ電顕で解析し、脂質やSNAREとの結合をNMRで調べた。
結果
Doc2BのMID(13〜39番)が、Munc13-1のMUNドメインの溝とポケットに、らせん2巻きを含む伸びた形で結合していた。
わかったこと
この結合はシンタキシン-1の開口に必要なNFモチーフをふさぐので、MIDがSNARE複合体の形成を阻害する理由を説明する。
残された課題
SNARE複合体に結合したDoc2Bの結合様式など、モデルの検証には多くの研究が必要だと論文は書く。

Highlights

MIDはMunc13-1の疎水性の溝に入り、シンタキシン-1を開くNFモチーフをふさぐ。シンタキシン-1のリンカーとDoc2Bは同じ場所を取り合う可能性がある。

原文

“suggesting that the syntaxin‐1 linker and Doc2B compete for binding to Munc13‐1”Results

MIDは脂質にも結合し、MIDと脂質の結合はMIDとMUNドメインの結合と競合する。膜に結合するとMunc13-1への阻害が外れる仕組みになりうる。

原文

“Our discovery that the MID binds to lipids and that this interaction competes with MID‐MUN binding (Figure 3) provides a natural mechanism to disinhibit the MUN domain”Discussion

最初の試料は配向の偏りとDoc2Bの解離のために分解能が不均一だった。AI設計の結合タンパク質にDoc2BのIDRをつないだ二価の結合体と、LEAタンパク質で配向の偏りを抑え、2.94 Åのマップを得た。

原文

“to prevent preferred orientations, we incorporated Late Embryogenesis Abundant (LEA) proteins”Results

Lab Notes

コンストラクト
Doc2B IDRをつないだ二価の結合体を設計
結晶化/グリッド作製
結合体とLEAタンパク質を加えて配向の偏りを抑えた
データ収集・解析
2つのデータセットから全体2.94 Åのマップを得た(EMD-78200)

Related Articles

シリンゴリン類縁体は、マラリア原虫のプロテアソームを選んで阻害する

原虫とヒトの20Sプロテアソームとの複合体をクライオ電顕で解き、選択性の手がかりを探った

PaperAn Optimized Route to the Syringolin Natural Products Enables Combinatorial Synthesis of Selective, Bioactive Inhibitors of the Plasmodium falciparum 20S Proteasome

First authorXilin Gu (University of California, San Francisco, USA)

CorrespondingJason K. Sello (University of California, San Francisco, USA)

JournalJournal of Medicinal Chemistry

Published2026.04.01

LicenseCC BY 4.0

構造図:20Sプロテアソーム(熱帯熱マラリア原虫)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • αサブユニットProteasome subunit alpha type
  • αサブユニットProteasome subunit alpha type
  • αサブユニットProteasome subunit alpha type
  • サブユニットProteasome endopeptidase complex
  • αサブユニットProteasome subunit alpha type-3, putative
  • βサブユニットProteasome subunit beta
  • βサブユニットProteasome subunit beta
  • βサブユニットProteasome subunit beta
  • サブユニットProteasome endopeptidase complex
  • サブユニットProteasome endopeptidase complex
  • βサブユニットProteasome subunit beta type-6, putative
  • βサブユニットProteasome subunit beta
  • βサブユニットProteasome subunit beta
  • βサブユニットProteasome subunit beta

Ligands

  • C-5A1CY6methyl N-{[(2R)-1-({(5R,8R)-5-[(3-fluorophenyl)methyl]-2,7-dioxo-1,6-diazacyclododecan-8-yl}amino)-1-oxo-3-phenylpropan-2-yl]carbamoyl}-L-valinate
疑問・課題
シリンゴリン類は有望な薬の種だが、合成の効率が低いことが開発の障壁だった。
アプローチ
新しい経路で18種の類縁体を合成し、最も強いC-5と原虫・ヒトの20Sプロテアソームとの複合体をクライオ電顕で解いた。
結果
C-5はβ5サブユニットだけに結合した。ヒトβ5への阻害速度は原虫の1/11〜1/45で、ヒト細胞への毒性は低かった。
わかったこと
原虫の20Sでは、C-5がヒトの20Sより水素結合を多く作る。これが種選択性の理由とみられる。
残された課題
構造の違いが選択性の原因か結果かは分からないと論文は書く。

Highlights

C-5のm-フルオロベンジル基は、β5だけが作るS1ポケットに入る。D-フェニルアラニンの側鎖はS3ポケットではなく内側の空間を向き、S3はウレアとバリンが占める。天然物のシリンゴリンBとは基質の真似かたが違う。

原文

“the m-fluorobenzyl moiety of C-5 occupies the S1 pocket formed exclusively by the β5 subunit”Results

ヒト20Sとの複合体では、マクロラクタムの向きが原虫と大きく違い、ウレアのN-Hの1つが水素結合の距離の外に出る。原虫のSer27に当たる残基がヒトではAla27で、この水素結合はできない。

原文

“completely different spatial orientations of the warhead carbonyls”Results

D-アミノ酸を側鎖に持つ18種の類縁体から、100 nMで抗原虫活性を示すものが見つかった。ヒト線維芽細胞に対する殺傷の選択性は25,000倍を超えた。

原文

“The species-selectivity for killing (Pf versus HFF is >25,000)”Results

Lab Notes

発現系
Pf20Sをバキュロウイルス・昆虫細胞系で発現
精製
Strep-Tactin XTアフィニティーとSuperose 6 Increaseのゲルろ過

Related Articles

ZLC853は、CDK12のCys1039に共有結合する経口薬候補だ

共結晶構造と質量分析で結合を確かめ、前立腺がんのモデルで腫瘍の増殖を抑えた

PaperDiscovery and preclinical evaluation of ZLC853 as a potential clinical candidate covalently targeting CDK12/13 kinases

First authorKaijie Zhou (Chinese Academy of Sciences, China)

CorrespondingJean C Tien, George Xiaoju Wang (University of Michigan, USA), Zhen Wang (Chinese Academy of Sciences, China) ほか 2 名

JournalActa Pharmaceutica Sinica. B

Published2026.07.29

LicenseCC BY 4.0

構造図:CDK12/サイクリンK(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • CDK12(キナーゼ)Cyclin-dependent kinase 12
  • サイクリンK(相手)Cyclin-K

Ligands

  • ZLC853A1EYW(2S)-N-[2-[4-(dimethylamino)piperidin-1-yl]-5-[[(1S)-1-(4-fluorophenyl)ethyl]carbamoyl-[4-(quinazolin-2-ylamino)cyclohexyl]amino]pyridin-3-yl]-2-fluoranyl-propanamide
疑問・課題
CDK12/13は前立腺がんなどの標的だが、強さ・選択性・体内動態を兼ねた低分子はまだ得にくかった。
アプローチ
阻害剤YJZ5118を体内動態の面から最適化してZLC853を作り、質量分析と共結晶構造で共有結合を確かめた。
結果
IC50はCDK12で40.0 nmol/L、CDK13で18.2 nmol/L。共結晶構造(3.28 Å)で2-フルオロアクリルアミドがCys1039と共有結合していた。
わかったこと
ZLC853は経口投与で前立腺がんモデルの腫瘍を抑え、CDK12/13を標的とする治療の候補になると論文は結論する。

Highlights

キナゾリン-2-アミンがヒンジ残基Met816と2本の水素結合を作り、ウレア基がAsp819と水素結合する。アクリルアミド部はCDK12のCys1039に共有結合し、CDK13ではCys1017が修飾された。

原文

“the irreversible modification sites were Cys 1039 in CDK12 and Cys 1017 in CDK13”Results

前の化合物YJZ5118とCDK12の共結晶構造(9JK1)で、ヒンジ領域の奥に空きがあると分かり、3-シアノピリジンを大きなキナゾリンに替える設計につなげた。

原文

“based on the cocrystal structure of YJZ5118–CDK12 complex (PDB: 9JK1), which indicated additional space in the back pocket of the hinge region that could accommodate a larger group”Results

ラットでの経口バイオアベイラビリティは66.2%だった。CDK12変異を持つ前立腺がんPDXモデルでは、変異のないモデルより強い腫瘍抑制を示した。

原文

“The compound achieved significantly improved pharmacokinetic properties with an oral bioavailability of 66.2% in rats.”Discussion and conclusion

Lab Notes

発現系
CDK12(715-1052)とサイクリンK(1-267)をCAK1と共発現(Sf9細胞)
精製
Ni-セファロース、TEV切断、Superdex 75
結晶化/グリッド作製
化合物を1:5で加えて氷上30分、Morpheusキットでハンギングドロップ結晶化
データ収集・解析
SSRFビームライン18Uで回折データを収集し、XDSで処理

Related Articles

Structure-Based Study2026.11.051 Article

設計タンパク質WRAPで包むと、膜タンパク質が水に溶ける

既存構造をもとに設計し、抗酸菌のポリンMspAを包んだ複合体をクライオ電顕で2.95 Å解析した

PaperMembrane protein solubilization and structure determination using de novo–designed proteins

First authorLjubica Mihaljević (University of Washington, USA)

CorrespondingDavid Baker (University of Washington, USA)

JournalScience (New York, N.Y.)

Published2026.07.02

LicenseCC BY 4.0

構造図:WRAP設計タンパク質+MspA
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 1UUN(論文が使った既存の構造)

Proteins & Nucleic Acids

  • MspA(ポリン)MSPA
疑問・課題
膜タンパク質は疎水性の表面が大きく、作製や構造解析が難しいため、薬やワクチンの開発の壁になっている。
アプローチ
膜タンパク質の疎水面を覆う設計タンパク質WRAPを深層学習で作り、大腸菌で発現させて性質とクライオ電顕構造を調べた。
結果
β バレル型とヘリックス型の膜タンパク質を可溶化できた。MspAでは2.95 Åの構造が得られ、設計モデルとのRMSDは0.7 Åだった。
わかったこと
WRAPは配列や活性部位を保ったまま膜タンパク質を水溶性にし、溶液中の高分解能構造解析に使えると論文は結論する。
残された課題
小さなWRAP付き膜タンパク質の構造決定には、試料調製やデータ処理の最適化が必要だと論文は書く。

Highlights

WRAPは対象の疎水面に合わせて作るため、膜タンパク質の配列を変えずに可溶化できる。洗剤もリフォールディングも要らず、大腸菌の細胞質から直接精製できる。

原文

“Typical yields of WRAP-purified proteins range from 0.5 to 15 mg per liter”Conclusions

WRAPを付けたMspAの8量体は、既存の結晶構造(1UUN)とRMSD 0.4 Åで重なり、孔の狭窄を決めるAsp91の側鎖の向きも保たれた。八量体どうしの二量体化は、WRAPのせいではなく天然タンパク質の性質らしい。

原文

“This comparison confirmed that the WRAPed MspA_SBDs retained both their fold and quaternary configuration”Results

OmpA、GlpG、TPの小さなWRAP付き試料は、モデルを組める分解能に届かなかった。小さな試料では配向の偏りと低いシグナルが障害になり、MspAでは傾斜データ収集で配向の偏りを抑えた。

原文

“To improve angular sampling, MspA data were collected across multiple tilt angles”Methods

Lab Notes

発現系
WRAPと膜タンパク質を1本の遺伝子で融合し、大腸菌で発現
結晶化/グリッド作製
C-flat R2/2グリッドにタンパク質を載せ、Vitrobot Mark IVで凍結
データ収集・解析
Titan Krios・K3で撮影。MspAは12,234枚を0〜30°の傾斜で収集し、cryoSPARCで処理

Related Articles

Not Covered