Issue No. 17 · Friday

2026.10.23

10月22日に論文データベースへ登録された論文から

16Articles
約37分Reading time

New Structure4Structure Update9Structure-Based Study3

Today’s Structures

1 / 3
Contents
  1. Human dopamine D1 receptor-Gs complex3つの調節薬の併用で、ドーパミンの効きが1000倍以上に
  2. ScMK (S. cerevisiae mevalonate kinase)大小5種の阻害剤を、酵母のMKは同じ部位で受け止める
  3. DAB1 complex (T. albus)DAB1複合体のクライオ電顕で、活性部位の2状態が見えた
  4. CAPADH (B. fragilis, C. leptum)アグマチンは、細菌の脱水素酵素のNADPH結合を34倍強める
  5. Blm10:13S proteasome intermediate (S. cerevisiae)Blm10とPba1は、並行する別の経路で働くらしい
  6. Human DNMT1 with unmethylated nucleosomeDNMT1のCXXCは、CpGを捉えて自らの働きを抑える
  7. PDB 公開待ちMouse Regnase-1 PIN domain with suraminスラミンは、Regnase-1の活性部位に結合する
  8. Norovirus NS3 AAA+ ATPase hexamerノロウイルスのNS3は、割れた座金型の六量体をつくる
  9. AAV2 VP1 basic regions with mouse importin-α2AAV2のVP1は、別の組み合わせでもインポーチンαに結合する
  10. Sup35 prion fibril ([PSI+]-S7, S. cerevisiae)酵母由来のSup35プリオンは、試験管内のSc4線維と構造が違う
  11. PDB 公開待ちCnMetXS (C. necator H16)MetXSの二量体は、蓋の形が左右で違う
  12. Human YAPWW1 with LATS2 peptide (vs TAZWW)YAPWW1はTAZWWより熱安定性が低い
  13. EMDB マップのみChikungunya virus VLP (ChAdOx1 Chik-derived)ChAdOx1 ChikのVLPは、天然のウイルスに似ている
  14. Ubiquitin, CspA, SN and 7 other proteins高いpHのNMRで、タンパク質の水素結合を見分ける
  15. Tau jR2R3-P301L peptide fibrilタウの線維化は、V300付近の1か所から始まる
  16. SfbI thioester domain (group A Streptococcus)細菌の接着ドメインは、pHで共有結合を外す

Contents

16 Articles
  1. 構造図:ドーパミンD1受容体(ヒト)

    Picked up·Structure Update

    Human dopamine D1 receptor-Gs complex

    3つの調節薬の併用で、ドーパミンの効きが1000倍以上に

    TM1とTM7の間にある新しい2つの溝に結合する調節薬を、クライオ電顕で解いた
  2. 構造図:ScMK(出芽酵母)

    New Structure

    ScMK (S. cerevisiae mevalonate kinase)

    大小5種の阻害剤を、酵母のMKは同じ部位で受け止める

    5つの阻害剤複合体の結晶構造で、小さなループと側鎖の動きが鎖長の差を吸収していた

  3. 構造図:DAB1(Thermocrinis albus)

    New Structure

    DAB1 complex (T. albus)

    DAB1複合体のクライオ電顕で、活性部位の2状態が見えた

    状態Aは反応物の入口、状態BはHCO3−の出口とみられる通路が開いていた

  4. 構造図:CAPADH(B. fragilis・C. leptum)

    New Structure

    CAPADH (B. fragilis, C. leptum)

    アグマチンは、細菌の脱水素酵素のNADPH結合を34倍強める

    apo結晶構造とSAXSで、NADP+が加わると酵素が閉じた配置になることを示した

  5. 構造図:Blm10:13S(酵母)

    New Structure

    Blm10:13S proteasome intermediate (S. cerevisiae)

    Blm10とPba1は、並行する別の経路で働くらしい

    組み立て中間体5種をクライオ電顕で解き、両者の結合は排他的と分かった

  6. 構造図:DNMT1・ヌクレオソーム

    Structure Update

    Human DNMT1 with unmethylated nucleosome

    DNMT1のCXXCは、CpGを捉えて自らの働きを抑える

    ヌクレオソームとの複合体のクライオ電顕構造で、CXXCがTRDへのDNAの接近を塞ぐ配置が見えた

  7. Structure Update

    Mouse Regnase-1 PIN domain with suramin

    スラミンは、Regnase-1の活性部位に結合する

    RNA分解酵素のPINドメインとの2.62 Å結晶構造で、Mg2+への配位とR283との相互作用を示した

  8. 構造図:NS3(ノロウイルス)

    Structure Update

    Norovirus NS3 AAA+ ATPase hexamer

    ノロウイルスのNS3は、割れた座金型の六量体をつくる

    可溶型の六量体を2.9 Åで解き、膜を貫くRNA輸送体である可能性をモデルで示した

  9. 構造図:AAV2 VP1・IMPα2

    Structure Update

    AAV2 VP1 basic regions with mouse importin-α2

    AAV2のVP1は、別の組み合わせでもインポーチンαに結合する

    BR2が主要・副次どちらの結合ポケットにも入ることを、結晶構造3つで示した

  10. 構造図:Sup35プリオン(酵母)

    Structure Update

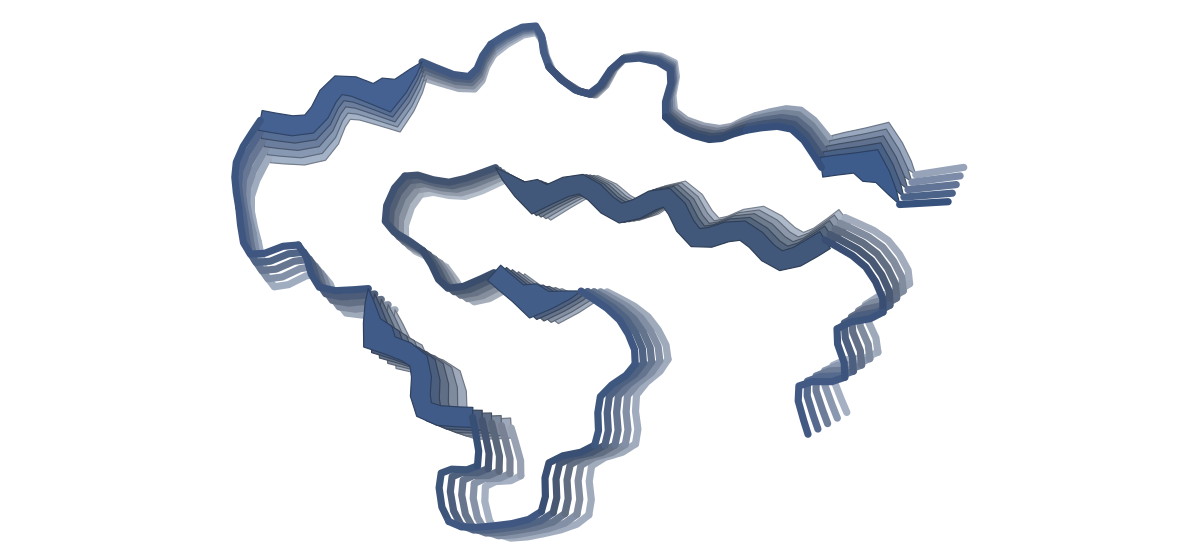
    Sup35 prion fibril ([PSI+]-S7, S. cerevisiae)

    酵母由来のSup35プリオンは、試験管内のSc4線維と構造が違う

    強い型[PSI+]-S7の線維を2.7 Åで解き、線維の安定性が分裂のしやすさを左右するとみられる

  11. Structure Update

    CnMetXS (C. necator H16)

    MetXSの二量体は、蓋の形が左右で違う

    apo構造を1.86 Åで決定。Arg335がスクシニルCoAの選択に関わる可能性がある

  12. 構造図:YAPWW1・TAZWW(ヒト)

    Structure Update

    Human YAPWW1 with LATS2 peptide (vs TAZWW)

    YAPWW1はTAZWWより熱安定性が低い

    LATS2との1.03 Å結晶構造を解き、ペプチドの柔軟さと選択性の関係を探った

  13. Structure Update

    Chikungunya virus VLP (ChAdOx1 Chik-derived)

    ChAdOx1 ChikのVLPは、天然のウイルスに似ている

    VLPのクライオ電顕マップは4 Å、既報のウイルス粒子との相関は0.92

  14. 構造図:ユビキチンなど10種のタンパク質

    Structure-Based Study

    Ubiquitin, CspA, SN and 7 other proteins

    高いpHのNMRで、タンパク質の水素結合を見分ける

    既存の構造をもつ10種で、残る信号が水素結合と約91%一致した

  15. 構造図:タウ(jR2R3-P301Lペプチド線維)

    Structure-Based Study

    Tau jR2R3-P301L peptide fibril

    タウの線維化は、V300付近の1か所から始まる

    既存のクライオ電顕構造を使い、NMRとEPRで結合の順を追った

  16. 構造図:SfbI-TED(化膿レンサ球菌)

    Structure-Based Study

    SfbI thioester domain (group A Streptococcus)

    細菌の接着ドメインは、pHで共有結合を外す

    SfbI-TEDとフィブリノーゲンの結合は、pH6.0で速くほどける

Picked up Today’s Structure2026.10.231 Article

3つの調節薬の併用で、ドーパミンの効きが1000倍以上に

TM1とTM7の間にある新しい2つの溝に結合する調節薬を、クライオ電顕で解いた
PaperMultiple allosteric sites allow for synergistic enhancement of GPCR signaling

First authorKai Wang (Chinese Academy of Sciences, China)

CorrespondingKevin J. Frankowski (UNC Eshelman School of Pharmacy, USA), Yue Wang (Chinese Academy of Sciences, China), Lei Shi (National Institutes of Health, USA) ほか 2 名

JournalScience Advances

Published2026.10.23

LicenseCC BY 4.0

構造図:ドーパミンD1受容体(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • Gαs(G タンパク質)Guanine nucleotide-binding protein G(s) subunit alpha isoforms short
  • Gβ1Guanine nucleotide-binding protein G(I)/G(S)/G(T) subunit beta-1
  • Gγ2Guanine nucleotide-binding protein G(I)/G(S)/G(O) subunit gamma-2
  • ナノボディ35Nanobody35
  • D1 受容体Beta-2 adrenergic receptor,D(1A) dopamine receptor,Engineered oplophorus-luciferin 2-monooxygenase catalytic subunit

Ligands

  • ドーパミンLDPL-Dopamine
  • UNC9815A1EWF~{N}-(3-aminocarbonyl-6-~{tert}-butyl-1-benzothiophen-2-yl)pyridine-4-carboxamide
  • BMS-A1A1EV31-[(1~{S},3~{R},6~{R})-6-(1,3-benzodioxol-5-yl)-3-bicyclo[4.1.0]heptanyl]-4-[(2-bromanyl-5-chloranyl-phenyl)methyl]piperazine
  • LY3154207G4C2-[2,6-bis(chloranyl)phenyl]-1-[(1S,3R)-3-(hydroxymethyl)-1-methyl-5-(3-methyl-3-oxidanyl-butyl)-3,4-dihydro-1H-isoquinolin-2-yl]ethanone
疑問・課題
アロステリック部位(作動薬と別の結合場所)が協調する仕組みは分かっていなかった。結合部位が確かめられた調節薬は LY3154207 だけだった。
アプローチ
新しい調節薬 UNC9815・UNC10062 を作り、BMS-A1 などと組み合わせた D1R-Gs 複合体をクライオ電顕で解き、変異体と MD でも調べた。
結果
2.44〜2.65 Å の構造で、BMS-A1 は TM1・TM7 間の下の溝、UNC 化合物は真上の溝に入った。3種の併用でドーパミンの EC50 は1000倍以上下がった。
わかったこと
3つの調節薬は重ならない3か所に同時に結合して協調する。MD は、複数部位への結合が受容体の活性型を安定化することを示した。
残された課題
治療効果の向上や副作用の軽減につながるかは、今後の薬理学や in vivo の研究で確かめる必要がある。

Highlights

下の溝に BMS-A1、その真上の溝に UNC9815/UNC10062 が入る。2つの調節薬が縦に積み重なる配置は、論文の知る限り他の GPCR で報告がない。上の溝にはコレステロールが入った構造もあった。

原文

“In the map of D1R-SKF81297/LY3154207/BMS-A1, we observed a clear density of cholesterol at a site similar to that occupied by the UNC compounds”Results

UNC 化合物は MLS6585 を最適化したもの。上の溝の3残基(V315A・F319L・A322S)を置換すると、UNC9815 は効きを弱める調節薬(NAM)に変わった。下の溝の変異では BMS-A1 が働かなくなった。

原文

“BMS-A1 was rendered functionally inactive for altering DA potency either alone or in combination with UNC9815 or LY3154207”Results

G タンパク質のない MD では、ICL3 の動きと NPxxY モチーフのゆらぎが、3種そろうと LY3154207 だけのときより小さくなった。細胞外ループ ECL2 のゆらぎも 2.46 ± 0.77 Å から 0.87 ± 0.11 Å に減った。

原文

“Multisite PAM engagement produced stabilizing effects not achieved by LY3154207 alone.”Results

Lab Notes

発現系
Sf9 昆虫細胞に D1R・miniGαs_DN・Gβ1・Gγ2 のバキュロウイルスを 1:1:1:1 で共感染。
コンストラクト
ヒト D1R の N 末に FLAG と β2AR N 末断片、C 末に 8×His。miniGαs は G226A・A366S 変異体。
精製
LMNG と CHS で可溶化し、FLAG 樹脂とゲルろ過で精製。全試料に LY3154207 を加えた。
結晶化/グリッド作製
Quantifoil R1.2/1.3 に 3 μL(10.9〜16.0 mg/ml)をのせ、Vitrobot Mark IV で凍結。
データ収集・解析
Titan Krios で 6,244〜8,517 本の動画を収集。RELION 4.0 と cryoSPARC v4 で処理し、7LJC を初期モデルに精密化。

Related Articles

New Structure2026.10.234 Articles

大小5種の阻害剤を、酵母のMKは同じ部位で受け止める

5つの阻害剤複合体の結晶構造で、小さなループと側鎖の動きが鎖長の差を吸収していた

PaperStructural basis of mevalonate pathway regulation by feedback inhibition of mevalonate kinase

First authorRachel L.S. D’Emilia (Bryn Mawr College, USA)

CorrespondingYan Kung (Bryn Mawr College, USA)

JournalThe Journal of Biological Chemistry

Published2026.09.17

LicenseCC BY 4.0

構造図:ScMK(出芽酵母)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • ScMK(メバロン酸キナーゼ)Mevalonate kinase

Ligands

  • GGPPGRGGeranylgeranyl Diphosphate
  • グルコースBGCbeta-D-glucopyranose
疑問・課題
メバロン酸キナーゼ(MK)は下流の産物で阻害される。ATP と同じ一か所に大きさの違う阻害剤がどう収まるかは不明だった。
アプローチ
出芽酵母の MK(ScMK)で 5 種の阻害剤の Ki を測り、apo 型と 5 種の阻害剤結合型の結晶構造を解いた。
結果
Ki は FPP の 0.29 μM から IPP の 46 μM まで約 2 桁に及んだ。ピロリン酸部は共通で、長い鎖は疎水ポケットの壁に沿って曲がっていた。
わかったこと
阻害剤は ATP 結合部位の同じ疎水領域に入り、長い鎖は曲がって収まる。必要な動きは小さなループと側鎖の変化だけだった。
残された課題
ATP が結合した ScMK の構造はまだなく、Phe110 を含むループが ATP と阻害剤を切り替える可能性は未検証だ。

Highlights

鎖が GPP まで伸びると Phe54 が一つの向きに固定され、ポケットの奥が開く。FPP は壁で約90°曲がり、GGPP は Phe59 に阻まれてさらに曲がり、J 字形に折り返して収まる。

原文

“Finally, when the alkyl chain lengthens even further to GGPP, Phe59 sterically blocks a linear continuation of the chain”Results

最も強い阻害剤は中くらいの GPP と FPP(0.33・0.29 μM)で、IPP と DMAPP は弱い。GGPP は 3.3 μM で、曲がって収まる負担が弱さの一因かもしれないと論文は考えている。

原文

“The strongest inhibition potency is afforded by intermediate-sized GPP and FPP, with Ki values one order of magnitude lower still, at 0.33 ± 0.02 μM and 0.29 ± 0.02 μM, respectively.”Results

ScMK の構造はこれが初めてで、真菌の MK としても最初の報告だ。代謝工学で広く使われる酵素なので、フィードバック阻害を弱める酵素改変の足がかりになると論文は述べている。

原文

“yet no structure of this MK has been determined until now.”Discussion

Lab Notes

発現系
大腸菌 BL21(DE3) で発現し、0.5 mM IPTG で誘導して 20 °C で一晩培養。
コンストラクト
コドン最適化した ScMK を、TEV で切れる N 末端 His タグ付きの pSKB3 に組み込んだ。
精製
Ni-NTA アフィニティークロマトグラフィーで精製し、透析して約 20 mg/ml に濃縮。
結晶化/グリッド作製
ハンギングドロップ蒸気拡散で結晶化(MES pH 6.0・酒石酸 Na/K)。阻害剤は apo 結晶に 5 mM で 30〜45 分ソーキング。
データ収集・解析
APS 24-ID-C/E で 100 K に収集。1KVK の RnMK を鋳型に分子置換し、Phenix と Coot で精密化。

Related Articles

DAB1複合体のクライオ電顕で、活性部位の2状態が見えた

状態Aは反応物の入口、状態BはHCO3−の出口とみられる通路が開いていた

PaperStructural insights into the coupling mechanism of vectorial CO2 uptake by DAB1

First authorNaiya R. Phillips (University of California)

CorrespondingDavid F. Savage (University of California)

JournalProceedings of the National Academy of Sciences of the United States of America

Published2026.10.12

LicenseCC BY 4.0

構造図:DAB1(Thermocrinis albus)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • DabA(炭酸脱水酵素)Probable inorganic carbon transporter subunit DabA
  • 複合体Ⅰ様サブユニットNADH/Ubiquinone/plastoquinone (Complex I)
疑問・課題
DAB1 は膜のプロトン勾配と結びつき、CO2 を一方向に水和する炭酸脱水酵素(CA)だが、その仕組みは不明だった。
アプローチ
好熱菌 Thermocrinis albus の DAB1 複合体をクライオ電顕(2.29 Å)で解き、変異体のスクリーニングも行った。
結果
活性部位は DabA の内部で溶媒から 10 Å 以上奥にあった。3D 分類で、周囲の残基の動きが異なる状態 A と状態 B が得られた。
わかったこと
状態 A で CO2 と水の入口が開き、状態 B でそれが閉じて HCO3− の出口が開く、という機構が提案された。
残された課題
活性部位のプロトンを除く最終段階は、構造からは分からない。

Highlights

状態 B では F476 が大きく動いて疎水性の通路 A1 を閉じ、C494 が約 5 Å 動いて水の通路 A2 をふさぐ。同時に G474 と S716 が約 3 Å ずれ、反対側に親水性の通路 B が開く。

原文

“Relative to State A, the GI(A/G)GFFG motif adopts a more helical conformation, forcing F476 to undergo a dramatic movement”Results and Discussion

DabA の活性部位は典型的な β 型 CA で、Zn2+ に C449・C709・H694 と水が配位する。HCO3− と水素結合する位置が Leu825 で、HCO3− を放しやすくしている可能性がある。

原文

“It is possible that this lack of an H-bond donor in DabA raises the barrier to HCO3− binding and encourages product release after hydration.”Results and Discussion

プロトン伝達を壊した DabB の H229A でも空気中で増える DabA 変異体を選ぶと、C494 や N901 の置換が見つかった。通路の閉鎖と DabA–DabB の連結が、共役の維持に必要と解釈されている。

原文

“Only one tested variant, epS1, which contains a mutation to C494 that likely perturbs the State A - State B transition, demonstrated in vitro CA activity.”Results and Discussion

Lab Notes

発現系
T. albus の DAB1 を、DabC の C 末端に His タグを付けて大腸菌 BL21-AI で発現。
精製
LMNG で膜から可溶化し、Ni-IMAC、70 °C 加熱、ゲルろ過で精製。
結晶化/グリッド作製
グラフェンオキサイドを付けた C-Flat 2/2 グリッドに 3 μL(0.06〜0.2 mg/mL)をのせ、Vitrobot Mark IV で凍結。
データ収集・解析
Krios G3i と K3 で 6,032 本のムービーを収集。cryoSPARC で、活性部位にマスクをかけた 3D 分類により 2 状態を分離。

Related Articles

アグマチンは、細菌の脱水素酵素のNADPH結合を34倍強める

apo結晶構造とSAXSで、NADP+が加わると酵素が閉じた配置になることを示した

PaperAgmatine as the initiating substrate for aspartate semialdehyde-dependent bacterial spermidine biosynthesis

First authorJohnette C. Ostlund (Fort Lewis College, USA)

CorrespondingJeffrey S. McFarlane (Fort Lewis College, USA)

JournalThe Journal of Biological Chemistry

Published2026.09.17

LicenseCC BY 4.0

構造図:CAPADH(B. fragilis・C. leptum)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • CAPADH(脱水素酵素)Saccharopine dehydrogenase
疑問・課題
細菌のスペルミジン合成は、プトレッシンから始まると考えられてきた。アグマチンを好む酵素がある理由は分かっていなかった。
アプローチ
アグマチンを使う脱水素酵素(CAPADH)を B. fragilis と C. leptum で、速度論・熱シフト・SAXS・apo 結晶構造で調べた。
結果
アグマチンでは kcat/Km がプトレッシンの 115 倍(B. fragilis)と 811 倍(C. leptum)になり、NADPH の結合は 34 倍強まった。
わかったこと
両酵素はアグマチンを初発基質とする CAPADH だった。アグマチンが構造変化を促して NADPH の結合を高める誘導適合が示唆された。
残された課題
アグマチン結合型の構造はなく、認識ループの役割は変異体解析で確かめる必要がある。

Highlights

アグマチンがあると、NADPH の解離定数は 61 μM から 1.8 μM へ 34 倍下がった。プトレッシンは 2 mM でも NADPH の解離速度を 29 s−1 までしか下げなかった。

原文

“but the off rate only decreases to 29 s−1 indicating 6-fold weaker NADPH binding”Results

apo 型では NADPH の結合部位がふさがれていた。B. fragilis では β7-α8 ループの残基 174〜178 が結合溝に入り込み、C. leptum では L84・P85・N107 の位置が NADPH と衝突する。

原文

“The NADPH binding site is still occluded, but by more subtle repositioning of L84, P85, and N107 that would cause steric clash with NADPH”Results

SAXS の回転半径は B. fragilis の NADP+ 型 35.4 Å、apo 型 36.7 Å、C. leptum の apo 型 40.3 Å で、結晶構造の傾向と合った。NADP+ や NADPH があると両酵素は、より閉じた配置をとる。

原文

“BfCAPADH-NADP+ forms a compact crystal structure with a SAXS Rg = 35.4 ± 0.2 Å, while BfCAPADH-Apo is more extended with a SAXS Rg = 36.7 ± 0.1 Å.”Results

Lab Notes

精製
CAPADH の発現・精製は既報の方法。SAXS 用にはニッケルアフィニティーの後にゲルろ過を追加した。
結晶化/グリッド作製
シッティングドロップ、4 °C。B. fragilis は 4 mg/ml・クエン酸アンモニウム・PEG 3350、C. leptum は 5 mg/ml・LiCl・Tris・PEG 8000。
データ収集・解析
SSRL 12-1/12-2 で 100 K、XDS で処理。8DEB のチェーン A で分子置換。B. fragilis は B 因子が高く、平均 100 超の残基は除いた。

Blm10とPba1は、並行する別の経路で働くらしい

組み立て中間体5種をクライオ電顕で解き、両者の結合は排他的と分かった

PaperStructure of Blm10:13S proteasome intermediate reveals parallel assembly pathways for the proteasome core particle

First authorMandeep Kaur (University of Kansas Medical Center, USA)

CorrespondingKylie J. Walters (National Institutes of Health, USA), Jeroen Roelofs (University of Kansas Medical Center, USA)

JournalNature Communications

Published2026.09.21

LicenseCC BY 4.0

構造図:Blm10:13S(酵母)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • α1(外輪)Proteasome subunit alpha type-1
  • α2(外輪)Proteasome subunit alpha type-2
  • α3(外輪)Proteasome subunit alpha type-3
  • α4(外輪)Proteasome subunit alpha type-4
  • α5(外輪)Proteasome subunit alpha type-5
  • α6(外輪)Proteasome subunit alpha type-6
  • α7(外輪)Probable proteasome subunit alpha type-7
  • β2(内輪)Proteasome subunit beta type-2
  • β3(内輪)Proteasome subunit beta type-3
  • β4(内輪)Proteasome subunit beta type-4
  • Blm10(キャップ)Proteasome activator BLM10
  • Ump1(成熟因子)Proteasome maturation factor UMP1,Myosin light chain kinase 2, skeletal/cardiac muscle
疑問・課題
Blm10 は組み立て中のプロテアソームにも結合するが、Pba1/Pba2 との順序は不明確で、中間体との複合体の構造もなかった。
アプローチ
酵母(pba1 欠失株)から中間体を精製し、5種の構造をクライオ電顕で解いた。プルダウンで Blm10 と Pba1/Pba2 が現れる時期も調べた。
結果
Blm10:13S は 2.84 Å で解け、Blm10 の C 末端が α5/α6 の溝に入っていた。両者とも早期と後期の中間体で検出された。
わかったこと
両者は同じ α5/α6 の溝を使い同時には結合できない。順番に交代するのではなく、並行する別の経路で働くと考えられる。
残された課題
Blm10 結合 CP の量が、成熟 CP をめぐる競合で決まるのか、この組み立て経路で決まるのかは、まだ分かっていない。

Highlights

Blm10 のドーム側面の開口は、Blm10:13S では 6.3 × 11 Å と、成熟 CP との複合体(約 14 × 23.2 Å)より狭い。Ump1 のない Blm10:α-ring では中間の大きさで、ドームは開閉すると考えられている。

原文

“The corresponding opening in Blm10:13S is substantially narrower, at 6.3 × 11 Å”Results

Blm10 と Pba1 の HbYX モチーフは同じ溝に入る。Pba1 は Ump1 とも接するが、Blm10 は Ump1 から 34.9 Å 離れていて接しない。このため成熟後にも Blm10 が外れにくい構造上の理由になると論文は考えている。

原文

“The HbYX motifs of Blm10 and Pba1 occupy the same α5/α6 inter-subunit pocket in CP”Results

α1・α2・α3・α4・α7 と Ump1 に β サブユニットが結合し、α5 と α6 を欠く中間体も見つかった。α リングが先にできるという通説に対し、少なくともこの欠失株では常にそうとは限らない。

原文

“Thus, at least in this pba1Δ background, we find evidence that assembly does not always proceed by formation of the α-ring first.”Results

Lab Notes

発現系
酵母の内在複合体を使用。Ump1 に TAP タグを付けた PBA1 欠失株から中間体を精製。
精製
IgG ビーズ、TEV 切断、カルモジュリン樹脂の 2 段階の TAP 精製。
結晶化/グリッド作製
Quantifoil R 1.2/1.3 Cu 400 メッシュに 3 μL をのせ、Leica EM GP 2 で凍結。
データ収集・解析
Titan Krios G3i と K3 で 5,235 本の動画を収集。cryoSPARC 4.4.1 で処理し、5 種を再構成。

Related Articles

Structure Update2026.10.238 Articles

DNMT1のCXXCは、CpGを捉えて自らの働きを抑える

ヌクレオソームとの複合体のクライオ電顕構造で、CXXCがTRDへのDNAの接近を塞ぐ配置が見えた

PaperThe DNMT1 CXXC domain senses CpG islands for DNA methylation inhibition

First authorJian Fang (University of California, USA)

CorrespondingGang Greg Wang (Duke University School of Medicine, USA), Jikui Song (University of California, USA)

JournalNature Communications

Published2026.09.18

LicenseCC BY 4.0

構造図:DNMT1・ヌクレオソーム
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • DNMT1(メチル化酵素)DNA (cytosine-5)-methyltransferase 1
  • ヒストン H2AHistone H2A
  • ヒストン H2BHistone H2B 1.1
  • ヒストン H3Histone H3
  • ヒストン H4Histone H4
  • DNA(149 bp)Chain x DNA (149-MER)
  • DNA(149 bp)Chain Y DNA (149-MER)
疑問・課題
DNMT1が、CpGアイランド(CpGが多く低メチル化の領域)でメチル化を抑える仕組みは、不明だった。
アプローチ
CpGが未修飾のヌクレオソームとDNMT1断片の複合体をクライオ電顕で解いた。変異体の活性と、マウスES細胞のゲノムも調べた。
結果
CXXCは未修飾のCpGに結合し、標的認識ドメイン(TRD)へのDNAの接近を塞いでいた。結合を壊す変異体では、CpGアイランドのメチル化が増えた。
わかったこと
CXXCは未修飾のCpGを感知してDNMT1の活性を抑え、CpGアイランドの低メチル化を守る役割をもつ。分化の異常にも関わる。
残された課題
CpGアイランドにDNMT1が集まる仕組みの詳細は、まだ分かっていない。

Highlights

CXXCドメインは折れ曲がったヘアピン状で、ヌクレオソームの中心(ダイアド)のDNAを囲む。K683とQ684などの側鎖が水素結合をつくり、CpGの塩基を特異的に認識する。

原文

“Notably, the CXXC domain adopts a bent-hairpin conformation to encircle nucleosomal DNA at the dyad”Results

RFTSドメイン(触媒ドメインへのDNA結合を妨げる領域)がH3の近くに移って抑制が解けても、CXXCがCpGに結合しているためDNMT1は自己阻害の形のままだった。RFTSとCXXCがTRDを別々に塞ぐ多層の制御が示唆される。

原文

“Despite the RFTS repositioning, DNMT1 in the DNMT1-umNCP complex remains in an autoinhibitory conformation owing to the CXXC-CpG interaction”Results

K683A/Q684A変異体(MutKQ)は、ヌクレオソーム上の未メチルCpGがあるとき活性が上がった。マウスES細胞では、CpGアイランドのメチル化が増え、発生に関わる遺伝子の発現と分化が乱れた。

原文

“Relative to WT DNMT1, the MutKQ mutant shows increased DNA methylation efficiency on nucleosomes with unmethylated linker CpG sites”Results

Lab Notes

発現系
DNMT1 は大腸菌 BL21 DE3 (RIL) で発現。ヒストンも大腸菌で作り、H3 に K18/K23 のユビキチン、H4 に H4K20me3 の模倣を付けた。
コンストラクト
ヒト DNMT1 の残基 351–1600。変異体は MutKQ(K683A/Q684A)と MutMHKKKQ。
精製
Ni-NTA、陰イオン交換、TEV プロテアーゼでタグ除去、再度 Ni 親和、Superdex 200 のゲルろ過。
結晶化/グリッド作製
DNMT1 とヌクレオソームを 3:1 で混合し、GraFix で架橋・精製。Quantifoil に塗布し Vitrobot Mark IV で凍結。
データ収集・解析
Titan Krios(K3)で 16,915 本の動画を取得し、cryoSPARC で処理した。

Related Articles

スラミンは、Regnase-1の活性部位に結合する

RNA分解酵素のPINドメインとの2.62 Å結晶構造で、Mg2+への配位とR283との相互作用を示した

PaperIdentification of small-molecule inhibitors of the immune system repressor Regnase-1

First authorArthur Millius (The University of Osaka, Japan)

CorrespondingSoyoung Park, Daron M Standley (The University of Osaka, Japan)

JournalNAR Molecular Medicine

Published2026.10.01

LicenseCC BY 4.0

構造図:Regnase-1 PIN・スラミン(マウス)
疑問・課題
Regnase-1 を直接阻害する低分子は報告がなく、炎症応答を一時的に高める化学ツールがなかった。
アプローチ
404 化合物で RNA の置換を調べ、候補の suramin と PIN ドメインの複合体を X 線(2.62 Å)で解いた。
結果
suramin は RNA 結合を IC50 48 nM で阻害した。構造では各 PIN 分子の活性部位で Mg2+ に配位していた。
わかったこと
suramin は競合阻害剤とみられ、向かい合う分子の R283 が結合に重要だった。細胞では IL-6 を増やした。
残された課題
野生型 PIN での結合様式は、高分解能の構造解析が必要である。

Highlights

suramin の末端のスルホン酸基は活性部位の Mg2+ に配位し、反対側の端は向かい合う PIN 分子の R283 と H284 に、水素結合や π–π スタッキングで結びつく。

原文

“Interestingly, residues R283 and H284 from the opposing protomer interacted with the opposite end of suramin via hydrogen bonding and π–π stacking”Results and discussion

R283A 変異体は RNA 結合も細胞での切断も野生型並みだったが、suramin による阻害には耐性を示した。量子化学(FMO)計算は結合の種類と場所を知る定性的な指標であり、結合エネルギーの定量値ではないと著者は断っている。

原文

“However, only wild-type PIN was susceptible to suramin inhibition, whereas R283A PIN was resistant”Results and discussion

結晶構造を手がかりに、suramin の類縁体と新たに合成した骨格 SO802(IC50 4.3 µM)を調べた。阻害にはスルホン酸基の数と配置が効き、大阪大学の化合物ライブラリーのヒットにもスルホン酸基を持つものが多かった。

原文

“Our scaffold SO802 inhibited Regnase-1 NPZC D141N with an IC50 of 4.3 µM”Results and discussion

Lab Notes

発現系
マウス Regnase-1 を大腸菌 Lemo21(DE3) で発現。
コンストラクト
結晶化には PIN ドメイン(残基 134–305、D226N・D244N)を使用。
精製
結晶化用の PIN はグリセロールを含まない緩衝液でゲル濾過した。
結晶化/グリッド作製
シッティングドロップ蒸気拡散(20°C)。結晶を suramin 溶液に浸漬した(最終 1 mM)。
データ収集・解析
SPring-8 BL44XU で測定し、xds で処理。PDB 5h9v を初期モデルに Phenix で精密化した。

ノロウイルスのNS3は、割れた座金型の六量体をつくる

可溶型の六量体を2.9 Åで解き、膜を貫くRNA輸送体である可能性をモデルで示した

PaperIntegrative structure of norovirus NS3 suggests a role in RNA transport

First authorMeryl Haas (Utrecht University, The Netherlands)

CorrespondingDaniel L. Hurdiss (Utrecht University, The Netherlands)

JournalNature Communications

Published2026.09.21

LicenseCC BY 4.0

構造図:NS3(ノロウイルス)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • NS3(ATPase)NTPase

Ligands

  • ATPγSAGSPhosphothiophosphoric Acid-Adenylate Ester
疑問・課題
ノロウイルスのNS3(AAA+ ATPase)は、構造も、複製や膜の再編での働きも分かっていなかった。
アプローチ
膜結合部を六量体化ドメインに置き換えた可溶型を作り、ATPγS結合状態を2.9 Åで解析した。さらにAlphaFold3で全長モデルを作った。
結果
六量体は割れた座金のような形で、6か所にATPγSが結合した。pore loopの変異の大半は、マウスノロウイルスの感染性を失わせた。
わかったこと
NS3は、膜をまたぐRNA輸送体として働く候補と考えられる。ただし可溶型はRNAをほどかず、RNA結合もATP分解と連動しなかった。
残された課題
NS3の輸送体としての働きは、全長で膜に埋め込まれた状態で調べる必要がある。

Highlights

6つのサブユニットは右巻きのらせん状に並び、両端の間に約6.5 Åの隙間がある。AからEはATPγSをアルギニンフィンガーで捉えるが、継ぎ目にあるFはそれが外れ、ヌクレオチドのない状態に近い。

原文

“The six subunits form a right-handed spiral with a rise of ~1.5 Å per protomer and a gap of ~6.5 Å between the topmost and bottommost subunits.”Results

pore loop 2は、ssRNAが通れる直径約15 Åの中央の通路を作る。pore loopや触媒部位の残基は46本のNS3配列で保存され、変異は酵素活性とウイルスの感染性を損なった。論文は汎遺伝子型の抗ウイルス標的になりうるとしている。

原文

“Together with our mutational data, this supports their functional importance and highlights their potential as targets for pan-genotypic antiviral intervention”Results

六量体化させた型はssRNAに結合したが、巻き戻し活性は検出されなかった。全長の膜貫通モデルは、AlphaFold3の入力にオレイン酸を加えて作った予測で、2本の膜貫通ヘリックスがRNAの通る孔を作るとされる。

原文

“Indeed, supplementing the prediction with 50 oleic acid molecules resulted in markedly improved confidence for the NTD, with pLDDT values ranging from 70 to 100 for both HuNoV and MNV”Results

Lab Notes

発現系
大腸菌 Rosetta 2 (DE3) で発現。0.5 mM IPTG、18 °C で一晩。
コンストラクト
GI 型NS3の62-363に、六量体化ドメイン cc-hex と MBP タグを付けた。
精製
HisTrap、3C プロテアーゼでタグ除去、Superdex 200 のゲルろ過で精製。
結晶化/グリッド作製
0.35 mg/ml を 1 mM ATPγS と混ぜ、カーボン膜付き Quantifoil R1.2/1.3 に塗布。Vitrobot Mark IV で凍結。
データ収集・解析
Glacios+Falcon 4i で1010本の動画を取得。cryoSPARC で処理し、123,643粒子から C1 で再構成。

AAV2のVP1は、別の組み合わせでもインポーチンαに結合する

BR2が主要・副次どちらの結合ポケットにも入ることを、結晶構造3つで示した

PaperAlternative bipartite arrangements of VP1 BR1-3 drive efficient nuclear import of AAV2 capsids

First authorMikayla Hoad (Charles Sturt University, Australia)

Corresponding筆頭著者と同じ

JournalThe Journal of Biological Chemistry

Published2026.09.16

LicenseCC BY 4.0

構造図:AAV2 VP1・IMPα2
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • VP1(AAV2 カプシド)Capsid protein VP1
  • インポーチンα(核輸送)Importin subunit alpha-1
疑問・課題
AAV2 の核への移行にどの宿主インポーチンと VP1 のどの領域が関わるのかは、はっきりしていなかった。
アプローチ
VP1 の塩基性領域(BR1〜3)と IMPα2 の複合体の結晶構造を、野生型と BR1・BR3 変異体で解き、結合と核移行も測った。
結果
野生型では BR1 と BR3 が副次・主要ポケットに入った。BR1 変異体では BR2 が副次ポケットに、BR3 変異体では BR2 が主要ポケットに入った。
わかったこと
BR のうち2つが無傷なら IMPα に結合して核へ移行でき、1つだけでは足りない。VP1 の核移行シグナルは、組み合わせが1通りに決まっていない。
残された課題
ペプチドでの結果であり、これらの配置がウイルス粒子全体の核移行に効くかは、今後の課題とされている。

Highlights

野生型の結晶構造では見えなかった BR2 が、BR1 変異体では副次ポケットに、BR3 変異体では主要ポケットに収まった。BR2 はどちらのポケットにも入れる。

原文

“Notabley, BR2 is resolved in the minor binding site (Fig. 5A)”Results

BR1・BR2・BR3 のどれか1つを置換しても、IMPα7 への結合は 4〜14 倍弱まるだけで、核移行も残った。2つを同時に置換すると、核移行は完全になくなった。

原文

“In contrast, simultaneous substitutions of two BRs (mBR1+2, mBR1+3, or mBR2+3) completely abolished nuclear import”Results

BR2 と BR3 の組み合わせで足りることから、BR1 を持たない VP2 も核へ移行できる理由になると論文は考える。また BR を1つずつ調節してカプシドの核への移行を設計する道を示唆する。

原文

“offers new opportunities to engineer capsid nuclear targeting by modulating individual BRs rather than introducing entirely new localization signals”Discussion

Lab Notes

発現系
大腸菌 pLysS で自動誘導発現(23 °C、30〜38 時間)。VP1-BR と mIMPα2 を別々に発現。
コンストラクト
VP1 の残基 115〜175(BR1〜3 を含む)を GST-TEV 融合で発現。IMPα は IBB ドメインを除いた ΔIBB。
精製
溶解液を混ぜて HisTrap で精製し、TEV で GST を除いて Superdex 200 のゲルろ過にかけた。
結晶化/グリッド作製
ハンギングドロップ蒸気拡散法。野生型は 0.7 M クエン酸ナトリウム、pH 6.5 で 2 日で結晶化。変異ペプチドは 3:1 のモル比で混合。
データ収集・解析
オーストラリアン・シンクロトロンの MX2 で収集。4OIH を探索モデルに Phaser で分子置換。

Related Articles

酵母由来のSup35プリオンは、試験管内のSc4線維と構造が違う

強い型[PSI+]-S7の線維を2.7 Åで解き、線維の安定性が分裂のしやすさを左右するとみられる

PaperCryo-EM structure of ex vivo Sup35 yeast prion and the factors defining prion phenotype

First authorAlexander A. Dergalev (Federal Research Center of Biotechnology of the Russian Academy of Sciences)

CorrespondingAlexander A. Dergalev, Konstantin M. Boyko, Vitaly V. Kushnirov (Federal Research Center of Biotechnology of the Russian Academy of Sciences)

JournalNature Communications

Published2026.09.19

LicenseCC BY 4.0

構造図:Sup35プリオン(酵母)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • Amyloid of yeast prion Sup35
疑問・課題
酵母プリオンの強い型と弱い型で性質が違う分子の理由は、分かっていなかった。
アプローチ
強い型[PSI+]-S7の線維を酵母から精製してクライオ電顕で解いた。線維の熱や尿素への耐性、変異体の影響も調べた。
結果
残基2–64の核が、内側と外側の2つのステリックジッパー(側鎖がかみ合う接合面)で固められていた。Sc4線維とは2-26付近だけがよく似ていた。
わかったこと
強い型プリオンの線維は、in vitro で作ったSc4線維と構造が大きく異なる。分裂のしやすさは、シャペロンの結合でなく線維の安定性で決まると考えられる。
残された課題
弱い型[PSI+]のクライオ電顕構造は、まだ解かれていない。

Highlights

強い型[PSI+]-S7の線維は、弱い型[PSI+]-W2より熱や尿素に弱く壊れやすいが、Hsp104の結合量は同程度だった。分裂頻度の差は、シャペロンの認識でなく線維の安定性で説明されると考えられる。

原文

“The [PSI+]-S7 prion was less resistant to heating and high-molar urea”Results

外側のジッパー(N8–Q18とQ47–Y63の逆平行の詰め込み)が、Core1AとCore1Bを1つの折りたたみにまとめる。論文は、Core1Aが強い型・弱い型の両方の維持に必須で、Core1Bは強い型で安定化に重要と結論している。

原文

“An “outer” zipper is generated by the antiparallel packing of N8–Q18 against Q47–Y63, thereby linking Core1A to the peripheral subdomain (Core1B) and integrating both into a single ordered fold”Results

GFPとM領域を酵素で除くと線維が沈殿したため、負電荷の酸性クラスターを挿入して線維どうしを反発させ、解析を可能にした。構造は、この改変を加えた構築のものである。

原文

“The issue was solved by the introduction of a negatively charged D/E-rich cluster after residue G96”Results

Lab Notes

発現系
酵母 74-D694 株で Sup35DE-GFP を GAL1 プロモーターから過剰発現(15時間)。毒性を抑える SUP35C プラスミドを併用。
コンストラクト
Sup35NM-GFP(残基1-239)の G96 と A155 の間に酸性クラスターを挿入。トリプシンで GFP と M 領域を除去。
精製
ガラスビーズで破砕後、ショ糖密度勾配、SDS 処理、サルコシル入りの勾配遠心、トリプシン処理で精製(純度約95%)。
結晶化/グリッド作製
線維 0.38 mg/ml を 3 μl、Quantifoil R1.2/1.3 に塗布し、Vitrobot Mark IV で凍結。
データ収集・解析
Titan Krios(K3)で動画を取得。Warp・crYOLO・CryoSPARC でらせん再構成し、2.69 Å。

MetXSの二量体は、蓋の形が左右で違う

apo構造を1.86 Åで決定。Arg335がスクシニルCoAの選択に関わる可能性がある

PaperCharacterization and Crystal Structure Elucidation of the l‐Homoserine O‐Succinyltransferase MetXS From Cupriavidus necator H16

First authorHannah Pia Franziska Meier (University of Groningen, The Netherlands)

CorrespondingSandy Schmidt (University of Groningen, The Netherlands)

JournalChembiochem

Published2026.10.20

LicenseCC BY 4.0

構造図:CnMetXS(ネクトル菌)
疑問・課題
C. necator のメチオニン合成酵素 MetXS は、ゲノム注釈だけで、実験では確かめられていなかった。
アプローチ
CnMetXS を大腸菌で発現して活性を測り、X 線結晶構造(1.86 Å)を決めた。基質のドッキングも行った。
結果
スクシニル CoA を使い、アセチル CoA では不活性だった。二量体の2分子は、蓋の領域の形が互いに違っていた。
わかったこと
MetX-G2 型の酵素と分類できた。Arg335 がスクシニル中間体を安定化し、特異性を説明する可能性がある。
残された課題
鎖 B の形が溶液中でも現れるかは未解決である。

Highlights

二量体の2分子で、蓋の領域(Thr244–Ala291)の配置が異なる。鎖 B では Tyr245 を含むループが活性部位の入口を狭め、Arg335 も触媒部位から離れていた。ただし鎖 B の形は結晶中の接触で支えられた可能性があり、慎重に解釈すべきだと著者は述べている。

原文

“However, it cannot be ruled out that the chain B conformation is influenced by crystal packing”Results and Discussion

活性部位には Ser168・Asp333・His366 の触媒三つ組がある。アセチル基を使う近縁酵素(HAT)ではロイシンになる位置を、CnMetXS では Arg335 が占めており、スクシニル CoA への特異性に関わる残基に当たる。

原文

“The active site sits between the two domains and contains a classical α/β‐hydrolase catalytic triad formed by Ser168, Asp333, and His366”Results and Discussion

基質は浸漬でも共結晶化でも密度が見えなかったため、スクシニル化した Ser168 にホモセリンを計算でドッキングした。鎖 A でだけ妥当な配置が得られ、Arg335 がスクシニル基と相互作用した。これは計算モデルである。

原文

“no interpretable electron density was observed for either substrate or for a succinylated Ser168 intermediate”Results and Discussion

Lab Notes

発現系
pET-28a(+) の N 末端ヘキサヒスチジンタグ付きで大腸菌 BL21 (DE3) に発現。
結晶化/グリッド作製
結晶に 50 mM のホモセリンを浸漬したが、基質の密度は見えなかった。
データ収集・解析
空間群 P21 で 1.86 Å。異常分散シグナルが 5σ を超えるピークを臭化物としてモデル化した。

YAPWW1はTAZWWより熱安定性が低い

LATS2との1.03 Å結晶構造を解き、ペプチドの柔軟さと選択性の関係を探った

PaperComparing YAPWW1 and TAZWW: Similar Binding Sites but Different Stability and Conformational Dynamics

First authorClara Merlen (Switzerland)

CorrespondingPatrick Chène (Switzerland)

JournalBiomolecules

Published2026.09.17

LicenseCC BY 4.0

構造図:YAPWW1・TAZWW(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • YAP1(WW1 ドメイン)Transcriptional coactivator YAP1
  • LATS2(ペプチド)Serine/threonine-protein kinase LATS2
疑問・課題
配列が似た YAPWW1 と TAZWW は、安定性やペプチドとの結合について十分に比べられていなかった。
アプローチ
単離した両ドメインを NanoDSF・CD・NMR で比べ、PPxY ペプチドの結合を SPR で測り、LATS2 との複合体を X 線で解いた。
結果
TAZWW の Tm は YAPWW1 より 8.3 °C 高かった。親和性の差は 2〜3 倍だが、SMAD7 では 4.4 倍だった。
わかったこと
柔軟な SMAD7 ペプチドは YAPWW1 を好み、ペプチドの柔軟さが選択性に関わる可能性がある。著者はこれを定性的な傾向と述べている。
残された課題
TAZWW とペプチドの複合体の実験構造はまだなく、MD は Boltz-2 のモデルから始めた。

Highlights

LATS2 ペプチドは伸びた形で YAPWW1 に結合し、SMAD7 の Ω 型とは異なる。Arg512 と Trp199 は 3.5 Å 離れ、カチオン-π 相互作用の可能性がある。結晶に使ったのは Cys を Ser にした mLATS2 である。

原文

“The SMAD7-bound form assumes an Ω-like shape, whereas bound mLATS2 adopts an extended conformation (Figure 4A).”Results and Discussion

YAPWW1 は 23 °C で 7 残基の NMR シグナルが構造の交換で消え、5 °C やペプチド結合で現れた。TAZWW では見えており、折りたたまれた割合が高いと考えられる。

原文

“These data are consistent with a model in which TAZWW is more stable than YAPWW1 at room temperature”Results and Discussion

SMAD7 の Ser212 を Pro にして硬くすると、TAZ/YAP の Kd 比は 4.4 から 2.3 に下がった。TAZWW 側の MD は Boltz-2 モデルから始めており、解釈に注意が要ると著者は述べている。

原文

“Because the TAZWW-bound simulations were initiated from Boltz-2 predicted complexes rather than experimentally determined structures”Results and Discussion

Lab Notes

発現系
大腸菌 NiCo21 (DE3) で 18 °C 一晩、IPTG で誘導。
コンストラクト
YAPWW1(F165–Q209)。His-Lipoyl タグを TEV プロテアーゼで切る。
精製
HisTrap、TEV 切断後の再 HisTrap、Superdex 75 のゲルろ過。
結晶化/グリッド作製
3.6 mM YAPWW1 と 4 mM mLATS2 を、酢酸アンモニウムと PEG3350 を含む液で結晶化(20 °C)。
データ収集・解析
ESRF ID23-1 で測定。Phaser で分子置換し、phenix.refine で精密化。

Related Articles

ChAdOx1 ChikのVLPは、天然のウイルスに似ている

VLPのクライオ電顕マップは4 Å、既報のウイルス粒子との相関は0.92

PaperStructural and immunogenic characterisation of ChAdOx1 Chik-derived Chikungunya VLPs supports a mechanistic rationale for vaccine-induced protection

First authorYoung Chan Kim (University of Oxford, UK)

Corresponding筆頭著者と同じ

Journalnpj Viruses

Published2026.06.30

LicenseCC BY 4.0

構造図:CHIKV VLP(ChAdOx1 Chik)
疑問・課題
ChAdOx1 Chik ワクチンの抗原が、本物のウイルス粒子に似た VLP を作るという仮説は、確かめる必要があった。
アプローチ
HEK293T 細胞で作った VLP を精製し、クライオ電顕の単粒子解析と糖鎖の LC-MS で、天然のウイルス粒子と比べた。
結果
局所再構成で E1–E2 三量体は 5.7 Å から 4 Å に上がり、既報のウイルス粒子マップとの相関係数は 0.92 だった。
わかったこと
VLP は T = 4 に並んだ 80 個の糖タンパク質三量体とカプシド層をもち、E1・E2 の糖鎖の位置も天然のウイルスと似ていた。

Highlights

粒子全体の再構成は 5.7 Å だった。5 回軸と 3 回軸の周りの三量体を切り出す局所再構成で、どちらも約 4 Å にした。4 種のマップが EMDB に登録されている。

原文

“resulting in the structures of trimer1 and trimer2 at 4.02-Å and 3.96-Å resolution”Methods

LC-MS では、E1 の N141 はハイブリッド型のみ、E2 の N263 は高マンノース型が主だった。著者は、この糖鎖は典型的なアルファウイルスの糖タンパク質と同様だと述べている。

原文

“the glycosylation of our CHIKV VLP antigen derived from the ChAdOx1 Chik vaccine is representative of typical alphavirus glycoprotein glycosylation”Results

アジュバントなしの VLP 5 µg を 2 回接種すると、ウイルス血症のピークが約 2.0 log10 下がり、足の腫れも 5.75 から 5.18 mm2 に減った。1 回では約 0.4 log10 の低下だった。

原文

“This corresponds to approximately 0.4 log10 and 2.0 log10 reduction in peak viremia compared with PBS controls.”Results

Lab Notes

発現系
HEK293T 細胞に PEI でトランスフェクションし、ローラーボトルで 4〜5 日培養。
コンストラクト
構造ポリプロテイン sCHIKV(C-E3-E2-6K-E1)を、分泌シグナルなしで pHLsec に入れた。
精製
PEG で沈殿させ、20–60% ショ糖密度勾配で精製。
結晶化/グリッド作製
精製 VLP 3.5 µl をグロー放電したグリッドにのせ、Vitrobot Mark IV で 4 °C・湿度 100% で凍結。
データ収集・解析
Titan Krios と K2 Summit で撮影。RELION 3.1 で 20 面体対称の再構成をし、局所再構成で三量体を精密化。

Related Articles

Structure-Based Study2026.10.233 Articles

高いpHのNMRで、タンパク質の水素結合を見分ける

既存の構造をもつ10種で、残る信号が水素結合と約91%一致した

PaperHigh-pH NMR to Identify Macromolecular Hydrogen-Bonds and Foldons

First authorAndrei T. Alexandrescu (University of Connecticut, United States)

Corresponding筆頭著者と同じ

JournalJournal of the American Chemical Society

Published2026.04.27

LicenseTDM

構造図:ユビキチンなど10種のタンパク質
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 1UBQ(論文が使った既存の構造)

Proteins & Nucleic Acids

  • ユビキチン(検証用)UBIQUITIN
疑問・課題
NMRの構造決定に欠かせない水素結合を、不安定な構造で実験的に見分けるのは難しかった。
アプローチ
構造が既知の10種のタンパク質で、pH 10〜11のNMRにより約750か所のアミド水素(主鎖の水素)を調べた。
結果
高pHで残るアミド水素の信号は、既存の構造にある水素結合と約91%一致した。重水中の交換実験は約80%だった。
わかったこと
アミド水素の信号の消え方をpHごとに追うと、構造の中で最後まで水素結合が残る部分(フォルドン)も分かる。

Highlights

pH 10〜11ではアミド水素の交換が速く進み、水素結合で守られた水素の信号だけが残る。10種・約750か所で、残る信号と結晶・クライオ電顕の構造にある水素結合の一致率は約91%だった。

原文

“The presence or absence of amide proton NMR signals between pH 10 and 11 can be used to ascertain H-bonds (protected amides) or the absence of H-bonds (unprotected amides) with ~91% accuracy.”Results

同じデータで従来の重水(D2O)中の交換実験は約80%だった。不安定な構造の水素結合は守られず見逃されやすい(偽陰性)ためで、高pHではこの見逃しが減った。

原文

“The lower accuracy of the D2O isotope exchange method is due to a higher number of false negatives—amide protons that are H-bonded in marginally stable structure that offers insufficient protection to be detected in D2O.”Discussion

球状のP22iDとCUS3iDでは、配列上は離れた6本のβストランドが作る逆平行βバレルが最後まで残った。信号が残るpHは、残基間の接触の多さと相関した(R=0.68と0.66、ユビキチンは0.45)。

原文

“The R-values for correlations between the pH value at which amide protons are last observed and the number of Cα–Cα distance contacts in the structure <5 Å, were 0.68 for P22iD, 0.66 for CUS3iD, and somewhat lower at 0.45 for ubiquitin.”Results

Lab Notes

発現系
ユビキチンなどは大腸菌で発現し、ユビキチンは15N標識。Aβ(40)は15N標識品を購入。
結晶化/グリッド作製
濃度0.1〜1 mM、25 °C(キネシンneckは37 °C)。pHは1 N HClとNaOHの少量で調整。
データ収集・解析
1H–15N HSQC(標識なしはTOCSY)でpH滴定。水素結合は既存構造からHBPLUSで計算。

Related Articles

タウの線維化は、V300付近の1か所から始まる

既存のクライオ電顕構造を使い、NMRとEPRで結合の順を追った

PaperA water-pinning hot spot drives templated tau aggregation

First authorChung-Ta Han (Northwestern University)

CorrespondingSongi Han (Northwestern University)

JournalProceedings of the National Academy of Sciences of the United States of America

Published2026.10.12

LicenseCC BY-NC-ND 4.0

構造図:タウ(jR2R3-P301Lペプチド線維)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 8V1N(論文が使った既存の構造)

Proteins & Nucleic Acids

  • タウ(線維コア)Microtubule-associated protein tau
疑問・課題
タウが既存の線維の端にそろって積み重なる最初の接触点は、はっきりしていなかった。
アプローチ
既存のクライオ電顕構造(8V1N)をもつペプチド線維に、可溶性のペプチドを加え、NMRで残基ごとの結合の順を追った。
結果
V300の信号が最も速く消えた。V300にスピンラベルを付けると、線維の伸長が最も抑えられた。
わかったこと
結合は線維の表面の1つの支配的な接触点から始まる。水の放出しやすさがその特徴だと著者は考える。
残された課題
可溶性オリゴマーごとの水の性質の違いは、今後の課題だ。

Highlights

1H-15N SOFAST-HMQC で、可溶性ペプチドが線維に付いて固定される順を残基ごとに追った。V300が最初で、L301・V306・I297が続き、I308・V309・V313は最も遅かった。

原文

“2D contour spectra showed the peak volume of site V300 (red) decayed the fastest (Fig. 2B, contact region 1, CR1), followed progressively by contact region 2 (CR2) with L301 (light red), V306 (orange), and I297 (pink).”Results

線維表面の水を、既存構造(8V1N)に基づくMDと、スピンラベルを使うODNP測定で調べた。ODNPでは、V300のある領域で動きの遅い構造化した水が最も多かった。MDによる解析は計算である。

原文

“Among the three sites, klow is highest at site 300 in CR1 (1,477 ± 70 s–1M–1), above site 306 in CR2 (1,041 ± 189 s–1M–1) and site 314 in CR3 (957 ± 98 s–1M–1), indicating enhanced slow, structured water in CR1 on the fibril surface (Fig. 3D).”Results

V300をスピンラベルで塞いでも結合は起きたが、その後の固定(ロック)と伸長が遅くなった。他の部位のラベルでは伸長が続いた。伸長を止める標的になりうる。

原文

“Blocking site 300 thus leaves initial docking intact but kinetically impedes locking and elongation, consistent with the reduced fibril formation seen by ThT and TEM (Fig. 4 A and B).”Results

Lab Notes

コンストラクト
VLIを13C/15Nで標識した19残基の合成ペプチド。
結晶化/グリッド作製
ペプチド50 µMをヘパリンと4:1で混ぜ、37 °Cで24時間以上振とうして線維化。超音波処理で種にした。
データ収集・解析
Bruker 600 MHz のNMRで 1H-15N SOFAST-HMQC を約16分ごとに取得。

Related Articles

細菌の接着ドメインは、pHで共有結合を外す

SfbI-TEDとフィブリノーゲンの結合は、pH6.0で速くほどける

PaperChemically encoded pH-tunable covalent adhesion by a bacterial thioester domain

First authorYuki Tokunaga (The University of Tokyo, Japan)

CorrespondingRyo Matsunaga, Kouhei Tsumoto (The University of Tokyo, Japan)

JournalScience Advances

Published2026.10.23

LicenseCC BY-NC 4.0

構造図:SfbI-TED(化膿レンサ球菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 3GHG(論文が使った既存の構造)

Proteins & Nucleic Acids

  • フィブリノーゲンαFibrinogen alpha chain
  • フィブリノーゲンβFibrinogen beta chain
  • フィブリノーゲンγFibrinogen gamma chain
  • ノブ AA knob
  • ノブ BB knob
疑問・課題
細菌のチオエステルドメイン(TED)が作る共有結合は、元に戻らないと考えられてきた。
アプローチ
SfbI-TEDとフィブリノーゲンの結合を、干渉法・チオール定量・変異体の網羅解析で調べ、既存の結晶構造と照らした。
結果
pH 7.3で結合した複合体は、pH 6.0で速くほどけた。チオエステルが切れた割合は、pH 6.0で6.3%、pH 7.3で45.4%だった。
わかったこと
pHへの応答は、チオエステルの化学反応そのものの性質に由来し、別のTEDでも見られた。
残された課題
感染時の混み合いなどが、このpHスイッチにどう影響するかは今後の課題だ。

Highlights

結合は、非共有結合での認識のあとに共有結合ができる2段階だった。pHで変わるのは共有結合の切れ方で、非共有結合の部分はpHに左右されなかった。

原文

“These results indicate that noncovalent interactions are insensitive to pH, whereas the equilibrium governing the formation and cleavage of the intermolecular cross-link is strongly influenced by pH.”Results

37残基の変異解析で、認識の中心はHis93と分かった。Leu112・Tyr115・Arg118がその周りを支える。結合の姿はAlphaFold3の予測に基づくもので、実験構造ではない。

原文

“Thus, noncovalent target recognition by SfbI-TED was primarily mediated by the hotspot residue His93 (∆∆Gnoncovalent>2 kcal/mol) (31), together with auxiliary interactions contributed by Leu112, Tyr115, and Arg118, which cluster around His93.”Results

L112TはpH7.3でほぼ元に戻らない結合を作ったが、pH6.0では速くほどけた。遠縁のCpTIE-TEDでもチオエステルの切れ方がpHで変わった。

原文

“Consistent with SfbI-TED, CpTIE-TED displayed a clear pH dependence of thioester bond cleavage (Fig. 6A).”Results

Lab Notes

発現系
大腸菌BL21(DE3)で発現し、15 °Cで一晩誘導。
コンストラクト
SfbI-TEDはN末端に6×His-SpyTag003を付けた。
精製
Ni-NTAのあと、Superdex 75でゲルろ過。
データ収集・解析
結合はOctet RED384のバイオレイヤー干渉法で、30 °Cで測定。

Related Articles

Not Covered