Issue No. 15 · Wednesday

2026.10.21

10月20日に論文データベースへ登録された論文と、同じ日に Nature 系の雑誌で出版された論文から

12Articles
約23分Reading time

New Structure4Structure Update6Structure-Based Study2

Today’s Structures

1 / 2
Contents
  1. Enterovirus A71 RdRP (S417G) elongation complexレムデシビルは、RdRPの移動と次の反応を100倍以上遅らせる
  2. Human MGAT1MGAT1の阻害剤は、活性部位とは別のポケットに入る
  3. Stk1 kinase (S. aureus)MRSAのβ-ラクタム耐性は、キナーゼStk1の阻害で弱まる
  4. Mouse MPO–anti-MPO Fab complexes抗MPO抗体は、結合部位が違うほど好中球を強く動かす
  5. Human KDM2A (lysine demethylase 2A)KDM2A阻害剤は、基質ペプチドの形をまねて結合する
  6. Human condensin II–M18BP1M18BP1が、コンデンシンIIの自己抑制を外す
  7. Human TAAR1–Gs complexドッキングで探したTAAR1作動薬を、構造で確かめた
  8. PDB 公開待ちMethionine sulfoxide reductase A (mouse)酸化したMsrAは、C末端で活性部位にふたをする
  9. PDB 公開待ちMmCadA (M. metallidurans)亜鉛を運ぶATPaseは、N末端で輸送を抑えるらしい
  10. PDB ID が本文にないR2ab of autolysin AtlE (S. epidermidis)R2abは細胞壁とポリスチレンの両方に結合する
  11. Dopamine D3 receptor (human)D3受容体はGαiと共役せず、Gαoを選ぶ
  12. TRIM25 coiled-coil domainPELDORで、17.3 nmの距離を測れた

Contents

12 Articles
  1. 構造図:EV71 RdRP(エンテロウイルス71)

    Picked up·New Structure

    Enterovirus A71 RdRP (S417G) elongation complex

    レムデシビルは、RdRPの移動と次の反応を100倍以上遅らせる

    EV71 RdRPの結晶構造と速度論で、セリン417が通り道をふさぐ様子を示した
  2. 構造図:MGAT1(ヒト)

    New Structure

    Human MGAT1

    MGAT1の阻害剤は、活性部位とは別のポケットに入る

    ヒトMGAT1の結晶構造から、肺がんの免疫回避に関わる酵素の新しい結合部位が見えた

  3. 構造図:Stk1(黄色ブドウ球菌)

    New Structure

    Stk1 kinase (S. aureus)

    MRSAのβ-ラクタム耐性は、キナーゼStk1の阻害で弱まる

    Stk1と阻害剤GWXの結晶構造は、DFG-out型の不活性な状態を示した

  4. 構造図:MPO–Fab複合体(マウス)

    New Structure

    Mouse MPO–anti-MPO Fab complexes

    抗MPO抗体は、結合部位が違うほど好中球を強く動かす

    MPOとFabのクライオ電顕で、抗体の結合部位を特定した

  5. 構造図:KDM2A(ヒト)

    Structure Update

    Human KDM2A (lysine demethylase 2A)

    KDM2A阻害剤は、基質ペプチドの形をまねて結合する

    2OGを必要とする阻害剤183cとの複合体を、2.2 Åの結晶構造で解いた

  6. 構造図:コンデンシンII(ヒト)

    Structure Update

    Human condensin II–M18BP1

    M18BP1が、コンデンシンIIの自己抑制を外す

    CAP-G2が約60 Å動くことで、DNAをはさむ構造に切り替わる

  7. 構造図:TAAR1(ヒト)

    Structure Update

    Human TAAR1–Gs complex

    ドッキングで探したTAAR1作動薬を、構造で確かめた

    6,500万分子をドッキングし、2種の最適化化合物の複合体をクライオ電顕で決めた

  8. Structure Update

    Methionine sulfoxide reductase A (mouse)

    酸化したMsrAは、C末端で活性部位にふたをする

    還元・中間体様・酸化の3状態を結晶構造で解き、Cys107とCys227のジスルフィド結合を見つけた

  9. Structure Update

    MmCadA (M. metallidurans)

    亜鉛を運ぶATPaseは、N末端で輸送を抑えるらしい

    内向き型の結晶構造(3.6 Å)と変異体の活性測定から、取り込み経路とN末端の働きを探った

  10. Structure Update

    R2ab of autolysin AtlE (S. epidermidis)

    R2abは細胞壁とポリスチレンの両方に結合する

    溶液NMRで構造と動きを決め、結合面をPREと変異体で調べた

  11. 構造図:ドパミンD3受容体(ヒト)

    Structure-Based Study

    Dopamine D3 receptor (human)

    D3受容体はGαiと共役せず、Gαoを選ぶ

    キメラと変異体で、Gαのα5ヘリックスとICL2が選択性を決めると示した

  12. 構造図:TRIM25 コイルドコイル

    Structure-Based Study

    TRIM25 coiled-coil domain

    PELDORで、17.3 nmの距離を測れた

    重水素化と測定条件の最適化で、TRIM25 の曲がりを溶液で捉えた

Picked up Today’s Structure2026.10.211 Article

レムデシビルは、RdRPの移動と次の反応を100倍以上遅らせる

EV71 RdRPの結晶構造と速度論で、セリン417が通り道をふさぐ様子を示した
PaperHighly effective viral RdRP translocation hindrance by the remdesivir nucleotide

First authorRui Li (Chinese Academy of Sciences, China)

CorrespondingYechun Xu, Peng Gong (Chinese Academy of Sciences, China)

JournalNucleic Acids Research

Published2026.10.19

LicenseCC BY-NC 4.0

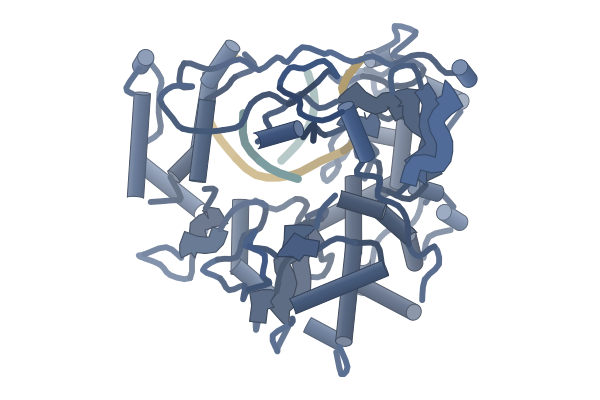
構造図:EV71 RdRP(エンテロウイルス71)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • Enterovirus 71 polymerase
  • RNA (34-MER)
  • RNA (5'-R(*UP*GP*UP*UP*CP*GP*AP*CP*GP*AP*G*(F86)P*G*(F86)P*GP*CP*CP*U)-3')
疑問・課題
レムデシビル(RDV)は数ヌクレオチド後に反応を妨げるが、その正確な仕組みや効き方は不明だった。
アプローチ
EV71 RdRP の S417G 変異体の結晶構造、急速停止法による速度論、分子動力学シミュレーションを組み合わせた。
結果
RDV の移動と次の反応の合わせた速度はアデノシンの 100 分の 1 以下で、S417G 変異体ではこの差がほぼ消えた。
わかったこと
RDV の 1′-シアノ基とセリン417 のぶつかりが移動を妨げる。移動の段階での阻害は、核酸類似体の設計に使える戦略と論文は提案する。

Highlights

S417G 変異体の複合体で、RDV 由来のヌクレオチドが産物鎖の −4 位に結晶中で捉えられた。−3 位の移動前の状態や、−4 と −5 の間にある行き過ぎた状態も見え、RDV が自由エネルギーの地形を変えると考えられる。

原文

“The capture of both the C2S4 and C3S1o complexes suggests that the free-energy landscape is altered by the RDV nucleotide even when the side chain of the roadblock serine is replaced by a hydrogen of the engineered glycine.”Results

活性部位での阻害や連鎖停止とは別に、ポリメラーゼ上を動く途中で妨げる戦略を示した。ポリメラーゼと立体的にぶつかる位置があれば、核酸類似体の設計に使える可能性がある。

原文

“Any steric hindrance of an NA in the product strand by polymerase residues provides an opportunity of translocation-related intervention.”Discussion

結晶にヌクレオチドを浸して反応を進め、同じ結晶型から複数の反応段階の構造を得た。急速停止法の速度論で、移動を含む段階の速度を取り出した。

原文

“Crystal soaking trials were performed using the precipitant solution supplemented with 5 mM of each nucleotide [NTP(s) or RDV-TP] and 10 mM divalent metal ions (MgCl2 or MnCl2).”Methods

Lab Notes

発現系
大腸菌 BL21(DE3)pCG1 で発現、0.5 mM IPTG で誘導
コンストラクト
EV71 RdRP の S417G 変異体と野生型
精製
ニッケル親和・陰イオン交換・ゲルろ過
結晶化/グリッド作製
シッティングドロップ蒸気拡散(12 または 16 °C)。結晶に各 5 mM のヌクレオチドと 10 mM の 2 価金属を浸した
データ収集・解析
上海放射光施設 BL17U1・BL02U1 で 100 K、180° 以上を 0.2° 刻みで収集
New Structure2026.10.213 Articles

MGAT1の阻害剤は、活性部位とは別のポケットに入る

ヒトMGAT1の結晶構造から、肺がんの免疫回避に関わる酵素の新しい結合部位が見えた

PaperGenetic and biochemical screens identify MGAT1 as a druggable glycosyltransferase target in STK11-mutant lung cancer

First authorKiera M. Vassallo (USA)

CorrespondingJannik N. Andersen (USA)

JournalThe Journal of Biological Chemistry

Published2026.09.12

LicenseCC BY-NC-ND 4.0

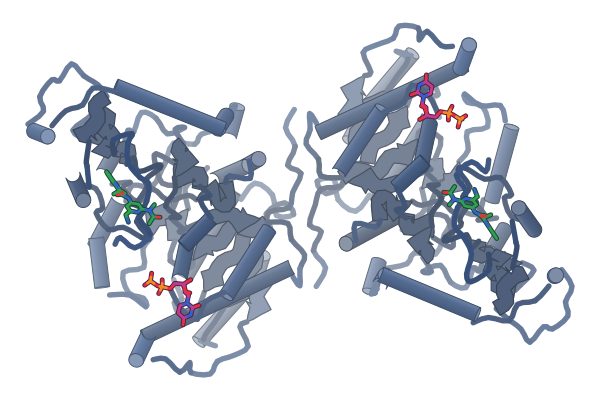
構造図:MGAT1(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • MGAT1Alpha-1,3-mannosyl-glycoprotein 2-beta-N-acetylglucosaminyltransferase

Ligands

  • UDPUridine-5'-Diphosphate
  • TNG-9333A1C1WN-[2-(aminomethyl)-6-(N-methylacetamido)pyridin-4-yl]-2-(cyclobutyloxy)quinoline-4-carboxamide
疑問・課題
STK11 変異の肺がんは抗 PD-1 療法が効きにくく、新しい治療標的が必要だった。
アプローチ
CRISPR スクリーンで MGAT1 を見つけ、50 万化合物を探索して阻害剤を最適化し、結晶構造を解いた。
結果
最初のヒット(IC50 197 μM)は TNG-2673(0.043 μM)まで 1000 倍以上強まり、阻害剤は活性部位と別の穴に結合した。
わかったこと
MGAT1 の触媒活性が免疫回避に必要で、構造から創薬できる標的だと示された。阻害機構は活性部位との競合がない点から推定した段階である。
残された課題
天然の基質を高濃度で使えず、阻害機構を完全には決められていない。

Highlights

阻害剤 TNG-9333 は、基質 UDP-GlcNAc が入る活性部位ではなく、β ターン・α ヘリックス・C 末端でできた別のポケットに入る。UDP と同時に結合した三者複合体の構造も解かれた。

原文

“This pocket is formed by β-turn L407–R413, α-helix R391–L401, and the C-terminus of the protein.”Results

ヒト MGAT1 の初の結晶構造(apo・UDP・UDP-GlcNAc 結合型)で、UDP が結合するとループ(R316–F331)が覆いかぶさるように一部秩序化した。触媒に重要な可能性があると著者は述べる。

原文

“This loop folds over the ligand and is stabilized by direct interactions with UDP, suggesting a ligand-induced conformational change that may be important for catalysis.”Results

触媒に必要な D211 と D289 の変異体は活性を失い、野生型だけが腫瘍の免疫回避を回復させた。酵素活性そのものが阻害の狙いになる。

原文

“MGAT1 catalytic activity is thus critical for its function in protecting cancer cells from immune attack in vitro and in vivo, making it a suitable target for small-molecule drug development.”Results

Lab Notes

発現系
Hi-5 昆虫細胞にバキュロウイルスで発現(27 °C・48 時間)
コンストラクト
結晶化用は A104–N445(膜貫通ヘリックスなし)、His タグ付き
結晶化/グリッド作製
UDP 複合体は MnCl2 と UDP-glucose を加え、シッティングドロップ蒸気拡散(20 °C)。電子密度は UDP のみ
データ収集・解析
UDP 複合体は上海放射光 BL17U で 1.6 Å。ウサギ MGAT1(2AM3)で分子置換

MRSAのβ-ラクタム耐性は、キナーゼStk1の阻害で弱まる

Stk1と阻害剤GWXの結晶構造は、DFG-out型の不活性な状態を示した

PaperStk1 is required for BlaR1-mediated broad-spectrum β-lactam resistance in epidemic-causing strains of Staphylococcus aureus

First authorRaymond Poon (University of Maryland, USA)

CorrespondingSom S. Chatterjee (University of Maryland, USA)

JournalNature Communications

Published2026.09.16

LicenseCC BY-NC-ND 4.0

構造図:Stk1(黄色ブドウ球菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • Serine/Threonine Kinase

Ligands

  • GWXA1CYJ(4M)-N-[4-(4-methylpiperazin-1-yl)-3-(trifluoromethyl)phenyl]-4-[(8R)-pyrazolo[1,5-b]pyridazin-3-yl]pyrimidin-2-amine
  • benzamidineBENBenzamidine
疑問・課題
MRSA の広域 β-ラクタム耐性は BlaR1 のリン酸化に左右されるが、その担い手とリン酸化の役割を確かめる必要があった。
アプローチ
stk1 欠損株と阻害剤 GWX での耐性・mecA 誘導を調べ、Stk1 キナーゼドメインと GWX の複合体を結晶化した。
結果
Δstk1 では mecA の誘導が弱まり、β-ラクタムの MIC は 4 倍以上低下した。GWX は DFG-out 型の不活性な構造で結合した。
わかったこと
Stk1 を標的にすると、多くの MRSA を β-ラクタムに再び感受性にできる可能性がある。構造は阻害剤設計の手がかりになる。

Highlights

既知のキナーゼ阻害剤 GWX は Stk1 に Kd 21.1 nM で結合し、ナフシリンと併用すると野生株の増殖が弱まった。Δstk1 では併用の上乗せがなく、効果は Stk1 の阻害によると読める。

原文

“Δstk1 had similar growth patterns when treated with only nafcillin or with a combination of nafcillin and GWX, suggesting that the phenotype displayed above was specifically due to GWX-mediated inhibition of Stk1 function.”Results

GWX は Stk1 の活性部位の裂け目を占め、DFG モチーフが外向き(DFG-out)になる。Phe150 がアデニン結合部位でピラゾロピリジンとπスタッキングする。結合様式は、これまでのコンピュータ予測とは異なっていた。

原文

“the GWX ligand binds in a fashion not predicted by prior in silico models35”Results

解析した S. aureus ゲノム約 12.8 万件のうち、mecA 陽性の MRSA の多くは mecI を欠いて blaZ・blaI を持ち、mecA が BlaR1-BlaI 経路の制御下にあるとみられる。stk1 と stp1 はほぼ全株に保存されていた。

原文

“Notably, we found stk1 and stp1, the two components of the eSTK1 pathway, to be conserved in 99.71% of our 127894 analyzed S. aureus entries (Fig. 1b).”Results

Lab Notes

発現系
大腸菌 BL21(DE3) で 1 mM IPTG・23 °C・16 時間誘導(N 末端 10×His タグ)
コンストラクト
Stk1 キナーゼドメイン(残基 1–291)
精製
Ni-NTA、トロンビンでタグ切断、Superdex 200 ゲルろ過
結晶化/グリッド作製
9 mg/mL のタンパク質と 2 mM GWX、シッティングドロップ(22 °C)。結晶は 4 °C で育成
データ収集・解析
カナダ光源 CMCF-BM で 100 K。XDS・Aimless で処理し、既存の Stk1 構造で分子置換

Related Articles

抗MPO抗体は、結合部位が違うほど好中球を強く動かす

MPOとFabのクライオ電顕で、抗体の結合部位を特定した

PaperEpitope-diverse autoantibodies induce neutrophil–epithelial niches driving kidney injury in ANCA-associated glomerulonephritis

First authorMasayuki Nishide (The University of Osaka, Japan)

CorrespondingMasayuki Nishide, Atsushi Kumanogoh (The University of Osaka, Japan)

JournalThe Journal of Experimental Medicine

Published2026.10.19

LicenseCC BY 4.0

構造図:MPO–Fab複合体(マウス)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • mAb-A46 Fab Heavy chain
  • mAb-A46 Fab Light chain
  • mAb-A24 Fab Heavy chain
  • mAb-A24 Fab Light chain
  • MpoMyeloperoxidase light chain
  • MpoMyeloperoxidase

Ligands

  • ヘムHEMProtoporphyrin Ix Containing Fe
疑問・課題
自己抗体が臓器の中で組織傷害を始める仕組みは、まだ十分に分かっていなかった。
アプローチ
マウスの抗MPO抗体 3 種とMPOの複合体をクライオ電顕で解き、組み合わせてマウスに投与した。
結果
抗体は MPO の別々の領域に結合した。2 種以上を組み合わせると ROS 産生が強まり、腎炎が起きた。
わかったこと
異なる部位に結合する抗MPO抗体の組み合わせが好中球の活性化を高め、ヒトに近い糸球体腎炎を起こした。
残された課題
どの抗体の結合配置が好中球の活性化を招くかは、さらに解析が必要だ。

Highlights

MPO に結合する 3 種の抗体を 2.95 Å のクライオ電顕構造で調べ、結合部位(エピトープ)を Hb ループや Hc 領域などに特定した。

原文

“mAb-A46 bound to the Hb loop (N487–R498), and mAb-B88 recognized two regions within Hc (R210–E221 and R533–M693)”Results

Fc の働きを抑えた片腕抗体は、抗原への結合を保ったまま好中球の ROS 産生を起こさず、マウスの腎傷害を軽くした。

原文

“These results indicate that one-armed antibodies targeting pathogenic MPO epitopes can selectively inhibit FcγR-dependent neutrophil activation while preserving antigen specificity.”Results

Lab Notes

発現系
組換えマウス MPO と、抗体を限定分解した Fab を使用
精製
Protein A で Fc を除き、サイズ排除クロマトグラフィーで Fab を精製
結晶化/グリッド作製
複合体を MS(PEG)8 で PEG 化して凝集を抑え、Vitrobot Mark IV で凍結
データ収集・解析
Glacios(200 kV)・Falcon 4i で収集し、cryoSPARC・RELION で解析

Related Articles

Structure Update2026.10.216 Articles

KDM2A阻害剤は、基質ペプチドの形をまねて結合する

2OGを必要とする阻害剤183cとの複合体を、2.2 Åの結晶構造で解いた

PaperStructure and mechanism of inhibition of lysine demethylase 2A (KDM2A) by compound 183c

First authorPavel Mader (Lunenfeld-Tanenbaum Research Institute, Canada)

CorrespondingJeff Wrana, Frank Sicheri (Lunenfeld-Tanenbaum Research Institute, Canada), Michal Zimmermann (QC Canada)

JournalCommunications Chemistry

Published2026.06.27

LicenseCC BY-NC-ND 4.0

構造図:KDM2A(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • KDM2ALysine-specific demethylase 2A
  • KDM2ALysine-specific demethylase 2A

Ligands

  • 2OGAKG2-Oxoglutaric Acid
  • 183cA1CIP{6-[(3R,4R)-1-cyclobutyl-4-ethylpiperidine-3-carbonyl]-2-methoxynaphthalen-1-yl}acetonitrile
疑問・課題
阻害剤 183c は特許に書かれていたが、KDM2A への結合のしかたは分かっていなかった。
アプローチ
示差走査蛍光法で結合を調べ、183c と 2OG を加えて KDM2A の結晶構造を決めた。
結果
183c は 2OG があるときだけ強く結合し、H3K36me2 基質が入るポケットを占めていた。
わかったこと
183c は 2OG に依存して基質をまねる阻害剤であり、KDM2A 阻害剤を改良する足場になる。
残された課題
細胞内の 2OG 濃度の変化が 183c への感受性に影響するかは、調べていない。

Highlights

183c のシクロブチルピペリジン部分は、基質ペプチドのジメチル化 Lys36 が入る小さなポケットに入っていた。

原文

“the 1-cyclobutylpiperidine moiety of 183c is positioned within the same sub-pocket that accommodates the dimethylated lysine 36 side chain of the H3K36me2 peptide”Results

183c は活性部位で 2OG の隣に位置し、2OG と弱い水素結合を作る。2OG が金属イオンとの不利な電荷の相互作用を和らげるらしい。

原文

“the negatively charged 2OG molecule appears to shield an unfavorable charge interaction between the positively charged Ni2+ and the amino group of 183c”Results

基質ペプチドが使う Ser145 などとの水素結合は 183c にはなく、論文は極性基を足して強める余地があると述べている。結晶は生理的な Fe2+ でなく Ni2+ を含む。

原文

“Although the crystal structure was determined with Ni²⁺ rather than the physiological Fe²⁺, the overall ternary binding mode is expected to be preserved.”Discussion

Lab Notes

発現系
大腸菌で NTD と CTD の 2 本のポリペプチドとして発現
コンストラクト
触媒ドメイン(NTD:残基 2–383、CTD:残基 450–517)
結晶化/グリッド作製
結晶に 183c と 2OG を浸す(ソーキング)
データ収集・解析
APS 23-ID-C で収集。KDM2A の既存構造(PDB 2YU2)を用いた分子置換で解いた

Related Articles

M18BP1が、コンデンシンIIの自己抑制を外す

CAP-G2が約60 Å動くことで、DNAをはさむ構造に切り替わる

PaperMechanism of M18BP1-mediated activation of condensin II for mitotic DNA compaction

First authorAlessandro Borsellini (Human Technopole, Italy)

CorrespondingAlessandro Borsellini, Alessandro Vannini (Human Technopole, Italy)

JournalNature Structural & Molecular Biology

Published2026.10.20

LicenseCC BY-NC-ND

構造図:コンデンシンII(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • SMC2Structural maintenance of chromosomes protein 2
  • NCAPD3Condensin-2 complex subunit D3
  • NCAPH2Condensin-2 complex subunit H2
  • NCAPG2Condensin-2 complex subunit G2
  • SMC4Structural maintenance of chromosomes protein 4

Ligands

  • ADPAdenosine-5'-Diphosphate
  • BeF3BEFBeryllium Trifluoride Ion
疑問・課題
コンデンシンIIがDNAを凝縮する活性を得る分子の仕組みは、まだ調べられていなかった。
アプローチ
クライオ電顕で複数の状態を解き、光ピンセットによる一分子観察と組み合わせた。
結果
M18BP1 がない状態では CAP-G2 が SMC を橋渡しして閉じていた。M18BP1 の結合で約 60 Å 動いた。
わかったこと
M18BP1 の結合が CAP-G2 の位置を変えて自己抑制を外し、DNA への安定な結合と凝縮を可能にする。
残された課題
多量体を作る分子的な要因は、さらに調べる必要がある。

Highlights

M18BP1 と DNA がない状態では、CAP-G2 が SMC2 と SMC4 の両方をつかみ、閉じた自己抑制の構造をとっていた(4.6 Å)。

原文

“The CAP-G2 subunit hooks both SMC subunits by binding simultaneously to the SMC2 head and the SMC4 coiled-coil region.”Results

DNA 結合型では CAP-D3 が DNA を上から押さえ、SMC の ATPase ヘッド上に DNA が載る。CAP-G2 はこの構造では密度が見えなかった(6.8 Å)。

原文

“Despite being present during sample preparation, no EM density was obtained for the CAP-G2 subunit.”Results

光ピンセットと蛍光顕微鏡で、M18BP1 があると結合の頻度と持続時間が増えることを一分子で示した。

原文

“binding of condensin II to DNA in the presence of ATP is increased in both frequency and duration when M18BP1P is present”Discussion

Lab Notes

発現系
ヒトコンデンシンIIを biGBac ベクターで組み立て、Sf9・High Five 昆虫細胞で発現
結晶化/グリッド作製
コンデンシンII、M18BP1、235 bp DNA、ADP-BeF3 を混ぜ、sulfo-SDA で架橋
データ収集・解析
Glacios(200 kV)・Falcon 4i・Selectris X で EER 動画を収集

Related Articles

ドッキングで探したTAAR1作動薬を、構造で確かめた

6,500万分子をドッキングし、2種の最適化化合物の複合体をクライオ電顕で決めた

PaperStructure based discovery of antipsychotic-like TAAR1 agonists

First authorSijie Huang (University of California, San Francisco, USA)

CorrespondingH. Eric Xu (Chinese Academy of Sciences, China), William C. Wetsel (Duke University Medical Center, USA), Brian K. Shoichet (University of California, San Francisco, USA)

JournalNature Communications

Published2026.09.17

LicenseCC BY 4.0

構造図:TAAR1(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • Engineered miniG(s) subunit alpha isoforms short
  • GNB1Guanine nucleotide-binding protein G(I)/G(S)/G(T) subunit beta-1
  • GNG2Guanine nucleotide-binding protein G(I)/G(S)/G(O) subunit gamma-2
  • Nanobody35
  • TAAR1Trace amine-associated receptor 1

Ligands

  • Z8987197482A1EUB(2~{R})-2-[(1~{S})-1,2,3,4-tetrahydronaphthalen-1-yl]pyrrolidine
疑問・課題
統合失調症の既存薬は副作用が出やすく、効き方にも個人差がある。新しい標的としてTAAR1が注目されている。
アプローチ
6,500万個の低分子をTAAR1の活性型構造にドッキングし、上位55個を実験で試して、有望な化合物を最適化した。
結果
55個中14個がアゴニストだった。最適化で1.5〜72 nMに達し、クライオ電顕の結合様式はドッキングの予測とほぼ一致した。
わかったこと
活性型構造へのドッキングはアゴニストの発見に偏った。3化合物はマウスの統合失調症モデルでPPIの障害を正常化した。
残された課題
他の行動表現型や、他の副作用は調べられておらず、今後の課題として残っている。

Highlights

活性型の実験構造(8W8A)にドッキングして見つけたアゴニストは、既知のTAAR1リガンドと骨格が異なる。最適化で、低ナノモルの化合物まで強めた。

原文

“Large library docking against TAAR1 followed by structure-based optimization revealed a series of low-nanomolar TAAR1 agonists with topologies unrelated to known ligands.”Discussion

2つのアゴニスト複合体(3.12 Å・3.14 Å)では、芳香環が疎水性のポケットに収まり、アミンが D103 とイオン対を作る。この2点がドッキングの予測どおりに確かめられた。

原文

“TAAR1 appears to recognize these agonists primarily through two ligand moieties: an aryl group that forms π-π and packing interactions with a sub-pocket formed by F2686.52, F186ECL2, I1043.33, and a cationic amine that ion-pairs with D1033.32.”Results

AlphaFold2 モデルは結合ポケットが狭く、初期ヒット率は高かったが、最適化の余地が小さかった可能性がある。実験構造の広いポケットは、1.5 nM までの最適化を許した。

原文

“the larger orthosteric site of the cryo-EM structure allowed us to optimize compounds into the 1.5 nM range”Results

Lab Notes

発現系
Hi5 昆虫細胞で TAAR1-miniGαs と Gβ1γ2 を発現
精製
LMNG・CHS で可溶化し、TALON、Nb35 の添加、Superose 6 のゲルろ過で精製
結晶化/グリッド作製
Quantifoil 300 mesh Au R1.2/1.3 のグリッドに塗布し、Vitrobot Mark IV で急速凍結
データ収集・解析
Titan Krios(300 kV)と Falcon 4 で撮影し、cryoSPARC で解析

Related Articles

酸化したMsrAは、C末端で活性部位にふたをする

還元・中間体様・酸化の3状態を結晶構造で解き、Cys107とCys227のジスルフィド結合を見つけた

PaperStructural basis for cysteine-linked redox-state plasticity in mammalian methionine sulfoxide reductase A

First authorByeongmin Shin (Korea University, Republic of Korea)

CorrespondingKathryn F. Tonissen (Griffith University, Australia), Kwang Yeon Hwang (Korea University, Republic of Korea)

JournalRedox Biology

Published2026.10.10

LicenseCC BY-NC 4.0

構造図:MsrA(マウス)
疑問・課題
哺乳類のMsrAが酸化と還元のなかで構造をどう調節されているかは、はっきりしていなかった。
アプローチ
マウスMsrAの還元型・中間体様・酸化型の結晶構造を決め、LC-MS/MS、MD、活性測定、Trxトラップ実験を組み合わせた。
結果
酸化型では Cys72–Cys218 に加えて予想外の Cys107–Cys227 ジスルフィドがあり、C末端ループを活性部位の上に固定していた。
わかったこと
著者らは、Cys72が触媒を担い、Cys107の組み替えとCys227へのTrxの侵入が基質の近づきやすさと再生を左右するというモデルを示す。
残された課題
この二重ジスルフィド状態が細胞内でどれほど存在するかは、まだ確かめられていない。

Highlights

1.6 Å の中間体様の構造では、触媒Cys72がβ-メルカプトエタノール(BME)と混合ジスルフィドを作り、隣のCys107がスルフェン酸になっていた。著者はX線の照射による酸化の寄与も考えている。

原文

“we consider the possibility that X-ray exposure contributed to the Cys107-SOH modification observed in the BTIL structure”Discussion

酸化型では、C末端ループが活性部位の上に折り重なり、基質や小さなチオールが結合する場所にふたをする。還元型ではこのふたがなく、活性部位は溶媒に開いている。

原文

“In our oxidized structure, the C-terminal loop folds over the active site pocket and forms a cap-like conformation at the site where methionine sulfoxide or small thiol molecules would bind.”Results

Cys107をSerに変えても還元活性は保たれ、触媒には要らないと分かった。一方、Cys218とCys227を両方変えるとTrxによる再生活性は失われた。

原文

“C107S showed DTT-dependent activity comparable to that of the wild-type protein and retained substantial Trx-dependent activity, indicating that Cys107 is dispensable for the catalytic reductase cycle.”Results

Lab Notes

発現系
大腸菌 Rosetta で全長mMsrAを発現(pET21a、1.0 mM IPTG、37 °C、4時間)
精製
Ni-NTA、イオン交換、Superdex 75 のゲルろ過で精製。酸化型は最後のゲルろ過で還元剤を除いた
結晶化/グリッド作製
22 °C で蒸気拡散法。酸化型の結晶は3か月以上のインキュベーション後に得られた
データ収集・解析
Pohang Accelerator Laboratory で収集し、HKL-2000 で処理。1FVA を探索モデルに分子置換

亜鉛を運ぶATPaseは、N末端で輸送を抑えるらしい

内向き型の結晶構造(3.6 Å)と変異体の活性測定から、取り込み経路とN末端の働きを探った

PaperStructural and functional insights into a Zn2+-transporting P-type ATPase

First authorPin Lyu (University of Copenhagen, Denmark)

CorrespondingPontus Gourdon (University of Copenhagen, Denmark)

JournalNature Communications

Published2026.09.16

LicenseCC BY 4.0

構造図:MmCadA(亜鉛輸送ATPase)
疑問・課題
金属を運ぶPIB型ATPaseは亜鉛の恒常性に欠かせないが、分子レベルの仕組みはよく分かっていなかった。
アプローチ
亜鉛などを運ぶMmCadAを結晶化して内向き型の構造を決め、N末端を削った変異体の活性とMDで調べた。
結果
3.6 Å の構造では、CPC モチーフの C564 が、電気的に負に帯電した広い取り込み領域に直接さらされていた。
わかったこと
N末端は輸送を抑えつつ、金属が増えると抑制が外れるセンサーとして働くとみられる。ヒスチジンに富む部分が金属を渡すと著者は提案する。
残された課題
N末端は結晶構造で見えず、その働きは生化学実験とモデルから推定した。

Highlights

金属の取り込みの門とされてきた M357 と F380 は、この負電荷の領域から遠く、構造は従来の漏斗モデルと合わない。著者は C564 が金属を受け取る役を担うと考えている。

原文

“However, the proposed gate between M357 and F380 is located far from the electronegative metal uptake region, and thus the MmCadA structure appears inconsistent with the funnel hypothesis (Fig. 3B).”Results

N末端を段階的に削った変異体はどれも活性を保った。N末端全体は輸送に必須ではないが、活性を調節している。先端側のMBD−2とヒスチジン部分を除くと、活性は2〜5倍に上がった。

原文

“increases the activity 2–5-fold relative to wild-type”Results

近縁のPIB型ATPaseの構造では初期位相が得られなかったが、AlphaFoldのモデルを探索モデルにした分子置換で構造を決められた。クライオ電顕は試みたが実らなかった。

原文

“we initially applied this method, but these efforts were fruitless.”Results

Lab Notes

発現系
大腸菌 BL21-CodonPlus(DE3) で発現(Strep タグ付き、0.5 mM IPTG、16 °C、20時間)
精製
C12E8 で可溶化し、StrepTactin XT と Superose 6 のゲルろ過で精製
結晶化/グリッド作製
Pb酢酸・AMPPNP・MgCl2 を加え、18 °C で結晶化(30% Jeffamine、0.1 M クエン酸ナトリウム pH 5.2)
データ収集・解析
Swiss Light Source の X06SA ビームラインで収集し、XDS で処理

Related Articles

R2abは細胞壁とポリスチレンの両方に結合する

溶液NMRで構造と動きを決め、結合面をPREと変異体で調べた

PaperThe mechanism of R2ab-mediated attachment to polystyrene surfaces in Staphylococcus epidermidis

First authorRahul Yadav (University of Arkansas-Fort Smith, USA)

CorrespondingRahul Yadav (University of Arkansas-Fort Smith, USA), Nicholas C. Fitzkee (Mississippi State University, USA)

JournalThe Journal of Biological Chemistry

Published2026.09.08

LicenseCC BY 4.0

構造図:R2ab(表皮ブドウ球菌)
疑問・課題
表皮ブドウ球菌の自己溶解酵素の R2ab 反復が、細胞壁やプラスチック表面にどう結合するかは未定義だった。
アプローチ
溶液NMRで R2ab の構造と運動を決め、ITC・NMR滴定・ポリスチレン粒子のPREで結合面を調べた。
結果
R2ab は R2b の C 末端側の面でポリスチレンに結合し、S776 と K779 が吸着に重要だった。
わかったこと
R2ab は細胞壁成分と人工表面の両方に結合する橋渡し役を果たすというモデルが支持される。

Highlights

R2ab の溶液構造は2つの半開きβバレルからなる。ループ(RT・n-Src)に動きが大きい部分があり、リガンド結合に関わる可能性がある。

原文

“Reduced hetNOE and generalized order parameter (S2) values reflect increased motions in the R2a RT and n-Src loops”Results

ペプチドグリカン(PGN)は R2a と R2b にまたがる空洞に結合する。LTA とは同じ面を取り合わないため、両方を同時に認識できる可能性がある。

原文

“PGN binds R2ab with micromolar affinity and is better fitted by a one-site model.”Discussion

スピンラベルしたポリスチレンナノ粒子を作り、PREで R2ab の吸着面を残基ごとに調べた。S776A・K779A 変異体は吸着が弱まり、バイオフィルムが増えた。

原文

“In contrast, both S776A and K779A mutants showed significantly higher S. epidermidis biofilm in comparison to either WT R2ab or tyrosine-mutated R2ab.”Results

Lab Notes

発現系
大腸菌 BL21 Star (DE3) で発現。同位体標識は M9 最小培地。
コンストラクト
R2ab 152 残基+N 末端 6×His タグ(pET15b)。
結晶化/グリッド作製
NMR 試料は 0.5 mM、550 μl。
データ収集・解析
Bruker Avance III 600 MHz(クライオプローブ)ほかで測定。

Related Articles

Structure-Based Study2026.10.212 Articles

D3受容体はGαiと共役せず、Gαoを選ぶ

キメラと変異体で、Gαのα5ヘリックスとICL2が選択性を決めると示した

PaperGαo/z-biased coupling profile of the dopamine D3 receptor

First authorLucrezia Zanetti (University of Rochester Medical Center, USA)

CorrespondingCesare Orlandi (University of Rochester Medical Center, USA)

JournalCommunications Biology

Published2026.06.29

LicenseCC BY-NC-ND 4.0

構造図:ドパミンD3受容体(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 9F33(論文が使った既存の構造)

Proteins & Nucleic Acids

  • GNAO1Guanine nucleotide-binding protein G(o) subunit alpha
  • Gnb1Guanine nucleotide-binding protein G(I)/G(S)/G(T) subunit beta-1
  • GNG2Guanine nucleotide-binding protein G(I)/G(S)/G(O) subunit gamma-2
  • Antibody scFv16
  • DRD3Green fluorescent protein,D(3) dopamine receptor

Ligands

  • FOB02-04AA1H9NN-[2-[(1R,2S)-2-[[(2S,5S)-2-(6-azanylpyridin-3-yl)-5-methyl-morpholin-4-yl]methyl]cyclopropyl]ethyl]-1H-indole-2-carboxamide
疑問・課題
D3受容体がどの Gα と共役するかは、報告ごとに結果が食い違っていた。
アプローチ
野生型 G タンパク質を使う細胞アッセイと、Gα・受容体のキメラで調べた。
結果
D3R は Gαi を活性化せず、Gαo・Gαz を活性化した。決め手は Gα の α5 ヘリックスと D3R の ICL2 だった。
わかったこと
既存のクライオ電顕構造の解析では、立体障害と静電反発が Gαi との共役を妨げていると示唆された。

Highlights

Gαi2 の末端を GαoA のものに替えたキメラと、D2R・D3R の細胞内ループを入れ替えたキメラで、選択性を決める領域を絞り込んだ。ICL3 は選択性に関わらなかった。

原文

“We confirmed the importance of the interface between the C-terminal α5 helix of the Gα proteins and the ICL2 of D3R in defining the biased coupling of D3R toward Gαo, while we showed that the ICL3 does not contribute to this selectivity.”Discussion

D3R–GαoA の構造(9F33)では、Gα 側の 350 番付近が D3R の負電荷の窪みに近い。Gαi では Asp になるため、静電反発が起きると考えられる。一つの残基だけでは説明できず、複数の残基の組み合わせが効く。

原文

“it is not a single residue responsible for the coupling preference exhibited by D3R, but rather a combinatorial effect of the different residues”Discussion

海馬の急性スライスで選択的アゴニストとアンタゴニストを処理すると、内在のアデニル酸シクラーゼと cAMP の調節に違いが出た。

原文

“treating hippocampal neurons in acute slices with selective agonists and antagonists reveals marked differences in their regulation of endogenous adenylyl cyclase and cAMP”Abstract

Lab Notes

発現系
HEK293T/17 細胞と、Gαi/o/z 欠損 HEK293A 細胞(ΔGαi/o/z)

Related Articles

PELDORで、17.3 nmの距離を測れた

重水素化と測定条件の最適化で、TRIM25 の曲がりを溶液で捉えた

PaperSpins AfarLong-Range Pulse Dipolar EPR Spectroscopy Uncovers Curvature in TRIM25’s Coiled Coil

First authorYannik Limbach (University of St.Andrews, UK)

CorrespondingBela E. Bode (University of St.Andrews, UK)

JournalThe Journal of Physical Chemistry Letters

Published2026.10.05

LicenseCC BY 4.0

構造図:TRIM25 コイルドコイル
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 4LTB(論文が使った既存の構造)

Proteins & Nucleic Acids

  • Tripartite motif-containing 25 variant
疑問・課題
10 nm を超える距離の PELDOR 測定は、これまでほとんど報告がなかった。
アプローチ
TRIM25 のコイルドコイルに複数のスピン標識を入れ、重水素化と条件の最適化で測った。
結果
通常条件で 10.5 nm、重水素化したタンパク質で 17.3 nm までの距離を得た。
わかったこと
TRIM25 は溶液中で、結晶構造や予測構造より強く曲がっていた。20 nm も測れそうだという。

Highlights

タンパク質を重水素化すると位相記憶時間が 5〜8 倍延び、測れる時間窓が約 150 μs まで伸びた。

原文

“This led to a ∼5–8 fold increase in T m which should translate into PDS traces with >100 μs length becoming accessible.”Results

TRIM25 のコイルドコイルは、溶液中で結晶構造や予測構造より強く曲がっていた。

原文

“TRIM25 featured a higher degree of curvature in solution than suggested by the crystal structure and structure prediction”Discussion

Lab Notes

コンストラクト
TRIM25 の逆平行コイルドコイル(189–379 番)に切り詰め、もとのシステインを除いて、距離ごとに Cys 変異を入れた。
データ収集・解析
100 μs の測定では 40 K・スピン濃度 40 μM が計算上の最適条件だった。

Not Covered