Contents

4 Articles
  1. 構造図:MspA M2(スメグマ菌)

    Picked up·Structure Update

    M2 MspA nanopore (M. smegmatis)

    MspAは、周りの脂質のアシル鎖を部分的に整列させる

    脂質ナノディスク中の2.5 Åクライオ電顕構造に、32本のアシル鎖が決まった位置で見えた
  2. Structure Update

    Human EGFR kinase domain with ZNL-1

    C797Sでも効く、EGFRのC775を狙う阻害剤

    ZNL-1との共結晶構造でC775への共有結合を確認。C775とC797の両方に結合するYNW-1も設計した

  3. 構造図:KLVFFAペプチドほか

    Structure Update

    KLVFFA peptide (Aβ segment) and hydrates

    液体セルで、室温の水和結晶の構造を決める

    炭素膜2枚の簡単な液体セルと低線量の多結晶データで、0.8〜1.0 Åの電子回折構造を得た

  4. 構造図:反応性アルギニン(CypA)

    Structure-Based Study

    Reactive arginines; cyclophilin A R55

    ニンヒドリンが、アルギニンを狙う共有結合の弾頭になる

    反応性アルギニンを6,800以上分類し、既存のPDB構造を使ってシクロフィリンAを狙う分子を設計した

Picked up Today’s Structure2026.11.011 Article

MspAは、周りの脂質のアシル鎖を部分的に整列させる

脂質ナノディスク中の2.5 Åクライオ電顕構造に、32本のアシル鎖が決まった位置で見えた
PaperCryo-EM structure of a protein nanopore reveals lipid acyl chains as integral components

First authorMilton Ashworth (University of York, UK)

CorrespondingOliver W. Bayfield, Alfred A. Antson (University of York, UK)

JournalScience Advances

Published2026.10.30

LicenseCC BY 4.0

構造図:MspA M2(スメグマ菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • MspA(ポリン)Porin MspA

Ligands

  • 脂質アシル鎖MYSPentadecane
疑問・課題
DNA解読に使われるナノポアMspAは、脂質膜に入った状態の実験構造がなかった。
アプローチ
解読用の変異体M2 MspAを脂質ナノディスクに埋め込み、クライオ電顕で構造を決めた。
結果
分解能2.5 Å。バレルの外側に、1サブユニットあたり4本、計32本のアシル鎖が決まった位置で見えた。
わかったこと
MspAは周囲の脂質のアシル鎖に秩序を与える。著者は、ナノポアの設計で脂質環境を考える重要性を指摘している。
残された課題
脂質の極性頭部の密度ははっきり見えず、動きやすいと考えられている。

Highlights

外側の疎水面に脂質アシル鎖の結合部位が並び、鎖はタンパク質の表面の形に沿って収まる。底部のバレルの溝では、鎖が細孔の軸に対して約45°傾く。

原文

“they adopt a ∼45° tilted orientation relative to the tunnel axis”Discussion

M2変異でD90N/D91N/D93Nに置き換わった細孔のくびれは、負電荷が弱まりほぼ中性になる。全体の折りたたみは野生型の結晶構造とほぼ同じで、Cα RMSDは0.38 Åだった。

原文

“generating a markedly more neutral surface charge within the constriction”Results

細孔の内側のHis148に、これまで報告のないN1メチル化が見つかった。大腸菌で作った組換え体で、ナノポアの性能に影響する可能性があると著者は考えている。

原文

“mass spectrometry identified N1 methylation of His148 (fig. S1), which accounts for the observed density”Results

Lab Notes

発現系
大腸菌BL21-Gold (DE3)で発現。18 °Cで一晩誘導。
コンストラクト
M2 MspA(残基1–184)。N末端His-tag付きで、pET28a(+)に組み込み、トロンビンでタグを切断。
精製
DDMを含む溶解液を95 °Cで15分熱処理し、HisTrapで精製。
結晶化/グリッド作製
MSP2N2とPOPCのナノディスクに再構成(八量体:MSP2N2:POPC = 1:3:300)。酸化グラフェンをのせたグリッドにVitrobot Mark IVで凍結。
データ収集・解析
200 kVのGlacios、Falcon IV。RELION 5.0とcryoSPARCで処理し、C8対称・82,082粒子で2.5 Å。

Related Articles

Structure Update2026.11.012 Articles

C797Sでも効く、EGFRのC775を狙う阻害剤

ZNL-1との共結晶構造でC775への共有結合を確認。C775とC797の両方に結合するYNW-1も設計した

PaperOvercoming EGFR Resistance by Monovalent and Bident Inhibitors Targeting Cys775

First authorZhengnian Li (Stanford University, United States)

CorrespondingJianwei Che (Dana−Farber Cancer Institute, United States), Nathanael S Gray, Tinghu Zhang (Stanford University, United States)

JournalACS Central Science

Published2026.10.31

LicenseCC BY 4.0

構造図:EGFR(キナーゼ)
疑問・課題
オシメルチニブが結合するEGFRのC797が変異すると、耐性になる。この耐性への対策が求められている。
アプローチ
ATP結合ポケットの奥にあるC775を狙う阻害剤ZNL-3と、C775とC797の両方に結合するYNW-1を設計した。
結果
ZNL-1との共結晶構造では、アクリルアミドがC775と共有結合した。ZNL-3はC797Sでも活性を保った。
わかったこと
ZNL-3は、C797Sを持つマウスの腫瘍モデルで腫瘍を縮小させた。YNW-1は、どちらか一方のシステインの変異では耐性にならない。
残された課題
ZNL-3はT790M変異で活性が落ちる。著者は、この点の最適化を進めているとしている。

Highlights

C775は裏のポケットの奥にあり、C797より埋もれていて反応性も低い。ZNL-1との共結晶構造では、アクリルアミドを持つベンジル基がこの疎水性ポケットに入り、C775と共有結合していた。

原文

“Compared to C797, C775 is more deeply buried and spatially constrained and less nucleophilic”Introduction

YNW-1は分子内で2つのアクリルアミドを持ち、質量分析でC775とC797をつなぐ架橋ペプチドが見つかった。キナーゼ全体の選択性も、改良前の分子より高かった。

原文

“YNW-1 demonstrated a highly improved selectivity profile across the whole kinome and only 7 kinases were detected as potential off-targets”Results

培養細胞に薬を長く与えると、オシメルチニブとYNW-3は1か月でC797Sを生んだが、YNW-1ではシステインの変異は出なかった。培養での結果で、臨床の耐性を完全には映さないと著者は述べる。

原文

“resistance mechanisms identified in this in-vitro model may not fully reflect the more complex and heterogeneous mechanisms that emerge clinically”Results

Lab Notes

発現系
EGFRキナーゼドメイン(696–1022)をSf9昆虫細胞でバキュロウイルス発現。
コンストラクト
N末端にTEV切断部位つきのHis-GSTタグ。結晶化には野生型を使用。
精製
Ni-NTA、TEVでタグ切断、Superdex 200でゲル濾過。
結晶化/グリッド作製
タンパク質約3 mg/mLに0.5 mMのZNL-1を1時間反応。3.5 Mギ酸ナトリウムで約1か月後に結晶化(シッティングドロップ)。
データ収集・解析
APSのNE-CATで収集。Dials/xia2で処理し、2GS2で分子置換、Phenixで精密化。

Related Articles

液体セルで、室温の水和結晶の構造を決める

炭素膜2枚の簡単な液体セルと低線量の多結晶データで、0.8〜1.0 Åの電子回折構造を得た

PaperRoom Temperature Structures of Solvated Organic Molecules Enabled by Liquid Cell Electron Diffraction

First authorNiko W. Vlahakis (University of California, Los Angeles (UCLA), United States)

CorrespondingNiko W. Vlahakis, Jose A. Rodriguez (University of California, Los Angeles (UCLA), United States)

JournalACS Central Science

Published2026.10.31

LicenseCC BY 4.0

構造図:KLVFFAペプチドほか
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • KLVFFAペプチド(Aβ断片)LYS-LEU-VAL-PHE-PHE-ALA
疑問・課題
溶液中の結晶は、電子線による損傷と真空のため、室温では電子回折で調べにくかった。
アプローチ
炭素膜のグリッド2枚で微結晶の懸濁液を挟み、低線量の回折データを多数の結晶から集めて合わせた。
結果
五つの結晶の室温構造が決まった。ceftazidime五水和物は0.8 Å、KLVFFAペプチドは1.0 Åで、結晶水も見えた。
わかったこと
溶液中の室温結晶から、原子分解能の構造が得られた。分子の形や結晶の相を、室温で水に浸った状態で調べられる。
残された課題
タンパク質結晶に広げるには、高スループットの連続的な方法が要る可能性がある。

Highlights

液体セルは、連続炭素膜のグリッドを2枚重ねるだけで作れ、特別な装置は要らない。EELSで見積もった液体層の厚さは約8 nmだった。

原文

“These measurements suggested that in LC samples, a liquid layer of 8 ± 5.8 nm thickness might be expected.”Results

水に浸った室温の結晶は電子線に弱い。試料ごとに許容できる線量を見積もり、細い角度範囲の回折データを別々の結晶から集めて合わせた。

原文

“Narrow wedge diffraction tilt series limited by this fluence budget were then automatically recorded from different microcrystals”Results

乾かしたceftazidimeの結晶は五水和物の単位格子を保てなかった。液体セルでは五水和物の構造が決まり、5個の水が水素結合をつくる位置に見えた。

原文

“maintained a unit cell inconsistent with a pentahydrate polymorph”Results

Lab Notes

結晶化/グリッド作製
KLVFFAは40%イソプロパノール、0.3 M酢酸アンモニウム、0.1 M Tris-HCl pH 8.5で結晶化し、スラリーを液体セルに載せた。
データ収集・解析
約30°のウェッジを70結晶から室温で集め、300 keVで1結晶あたり約0.3 e⁻/Ų。6セットを合わせ、完全度78%。

Structure-Based Study2026.11.011 Article

ニンヒドリンが、アルギニンを狙う共有結合の弾頭になる

反応性アルギニンを6,800以上分類し、既存のPDB構造を使ってシクロフィリンAを狙う分子を設計した

PaperNinhydrin as a Covalent Warhead for Chemical Proteomic-Enabled Discovery and Selective Engagement of Reactive Arginines

First authorAndrew K. Ecker (University of California, San Francisco, United States)

CorrespondingIan B. Seiple, Balyn W. Zaro (University of California, San Francisco, United States)

JournalACS Central Science

Published2026.10.31

LicenseCC BY 4.0

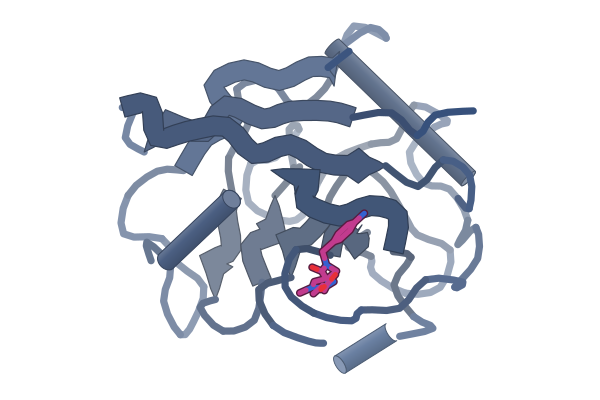
構造図:反応性アルギニン(CypA)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 6GJI(論文が使った既存の構造)

Proteins & Nucleic Acids

  • シクロフィリンA(CypA)Peptidyl-prolyl cis-trans isomerase A

Ligands

  • Tri-Vector型リガンドF1Eethyl 2-[[(4-aminophenyl)methyl-[(1-methyl-1,2,3-triazol-4-yl)methyl]carbamoyl]amino]ethanoate
疑問・課題
共有結合で狙うアミノ酸はシステインとリジンが中心で、アルギニンは十分に調べられていなかった。
アプローチ
アルキン付きニンヒドリンでアルギニンを標識して反応性の部位を探し、PDBの既存構造と照らして調べた。
結果
1つの細胞株で6,800以上の反応性アルギニンを分類し、シクロフィリンAのR55を狙う分子で活性を約60%下げた。
わかったこと
ニンヒドリンはアルギニンを選んで修飾する弾頭になり、アルギニンも共有結合薬の標的になりうる。

Highlights

アルキン付きニンヒドリンで反応性アルギニンを濃縮して同定する手法を作った。システインが反応しないタンパク質の上の部位も見つかり、触媒部位のアルギニンも含まれる。

原文

“uncovered potential modification sites on disease-relevant proteins, including reactive arginines within catalytic sites that are essential for function and reactive arginines on proteins lacking reactive cysteines”Abstract

PDBの構造に照らすと、反応性アルギニンはヘリックスと柔軟なループに多く、βシートには少なかった。カチオン–π相互作用をしているアルギニンへの偏りは見られなかった。

原文

“we do not see an enrichment of arginines engaged in cation-π interactions”Results

CypAの結晶構造(6GJI)に結合する既知の分子を土台に、R55へ届くニンヒドリン付きの分子を設計した。ニンヒドリンのない類縁体はほとんど効かず、共有結合による阻害と考えられる。

原文

“CA-Ind-Alk showed minimal inhibition (6.85 ± 14.94% at 25 μM)”Results

Related Articles