
構造生物学者のための情報収集サポートサイト
New Structure
42 Articles構造が初めて解かれたタンパク質。
2026.11.051
Podophage A1002 (P. aeruginosa)
緑膿菌ファージA1002は、尾の繊維を2種類のタンパク質で組む
完全な粒子をクライオ電顕で解析。ノズルが2つのタンパク質に分かれ、尾に6本の鎖状繊維が巻きつく
2026.10.302
EIGHT fold knotted proteins (Lachnospiraceae)
腸内細菌に、8交差の複雑な結び目をもつタンパク質が見つかった
X線構造で結び目を確かめ、変性は6段階で進むと分かった
ChOGRE23 G-quadruplex (chicken β-globin origin)
ニワトリの複製起点のDNAは、Cが飛び出したG4を作る
NMRで決めた3層の(3+1)ハイブリッド型で、5'端のGがanti型で外側の層に入る
2026.10.293
OmcE cytochrome nanowire (D. soudanensis)
電気を運ぶ細菌のナノワイヤーは、逆向きに束ねて並ぶ
深部地下の塩水に棲む菌のシトクロム線維をクライオ電顕で解き、束の接触面を示した
Flagellar export apparatus (B. burgdorferi)
鞭毛の輸送装置は、脂質の層を挟んでFlhAとつながる
ライム病菌の細胞内でin situクライオ電顕により解析。膜が大きく曲がり、漏斗状の通り道ができていた
WDR82–PNUTS–Symplekin–Ssu72 (S. pombe)
WDR82は、2つの短い配列で分かれた相手をつなぐ
PNUTSとSymplekinがWD40タンパク質WDR82の別々の面に結合する構造を、X線結晶構造で示した
2026.10.252
Hda–β clamp (DnaN) complex (E. coli)
Hda–βクランプ複合体は、濃度に応じて組み合わせを変える
クライオ電顕で4つの状態を解析。八量体では活性中心のアルギニンが埋まる
COCFAT (Capnocytophaga ochracea)
システイン酸を選ぶ酵素は、二量体の境目に結合ポケットを持つ
細菌のスルホ脂質をつくるCFATの結晶構造。基質結合型は2.46 Å
2026.10.242
Alkaline phosphatase (P. aeruginosa) / proteinase K
アルカリホスファターゼとプロテイナーゼKが、繊維を作る
クライオ電顕で、緑膿菌ALPのフィラメントとProtKのナノチューブの構造を決めた
SARS-CoV-2 ORF3a-specific TCRs / HLA-A*01:01
同じβ鎖でも、α鎖が違うとT細胞受容体の抱き方が変わる
SARS-CoV-2 ORF3aペプチドを認識するパブリックTCRとプライベートTCRを約3 Åで比べた
2026.10.234
ScMK (S. cerevisiae mevalonate kinase)
大小5種の阻害剤を、酵母のMKは同じ部位で受け止める
5つの阻害剤複合体の結晶構造で、小さなループと側鎖の動きが鎖長の差を吸収していた
DAB1 complex (T. albus)
DAB1複合体のクライオ電顕で、活性部位の2状態が見えた
状態Aは反応物の入口、状態BはHCO3−の出口とみられる通路が開いていた
CAPADH (B. fragilis, C. leptum)
アグマチンは、細菌の脱水素酵素のNADPH結合を34倍強める
apo結晶構造とSAXSで、NADP+が加わると酵素が閉じた配置になることを示した
Blm10:13S proteasome intermediate (S. cerevisiae)
Blm10とPba1は、並行する別の経路で働くらしい
組み立て中間体5種をクライオ電顕で解き、両者の結合は排他的と分かった
2026.10.224
VZV B- and C-capsids (varicella-zoster virus)
VZVのカプシドは、ジスルフィド結合で安定化している
B・Cカプシドをクライオ電顕で3.1 Åまで解き、ポータル頂点の違いも調べた
ZIKV NS1–Fab complexes (Zika virus)
ジカウイルスNS1の外側の面を覆う抗体が見つかった
5種の抗体との複合体をクライオ電顕で解析し、結合様式を2群に分けた
RdRp of Jingmen tick virus and Alongshan virus
分節型フラビ様ウイルスのRdRpは亜鉛結合部位を欠く
JMTVとALSVのRdRpの結晶構造は、典型的なフラビウイルスと似た形だった
Bat MHC-II (Eptesicus fuscus) with peptides
AlphaFoldでMHC-IIの結合ペプチドを種を超えて予測
予測ツールAF-predをコウモリMHC-IIの結晶構造と結合実験で検証した
2026.10.214
Enterovirus A71 RdRP (S417G) elongation complex
レムデシビルは、RdRPの移動と次の反応を100倍以上遅らせる
EV71 RdRPの結晶構造と速度論で、セリン417が通り道をふさぐ様子を示した
Human MGAT1
MGAT1の阻害剤は、活性部位とは別のポケットに入る
ヒトMGAT1の結晶構造から、肺がんの免疫回避に関わる酵素の新しい結合部位が見えた
Stk1 kinase (S. aureus)
MRSAのβ-ラクタム耐性は、キナーゼStk1の阻害で弱まる
Stk1と阻害剤GWXの結晶構造は、DFG-out型の不活性な状態を示した
Mouse MPO–anti-MPO Fab complexes
抗MPO抗体は、結合部位が違うほど好中球を強く動かす
MPOとFabのクライオ電顕で、抗体の結合部位を特定した
2026.10.202
Cdr1 (Candida glabrata)
Cdr1は、ATPの加水分解後にCヘリックスをピストン状に引き込む
クライオ電顕と3D変動解析で、ポンプが開く動きとイトラコナゾールの収まり方を捉えた
KKT23 (T. brucei)
動原体の酵素KKT23は、トリパノソーマのH2Aをアセチル化する
酵素ドメインの結晶構造はGCN5に最も近く、KKT23を減らすとH2Aのアセチル化が下がった
2026.10.193
AshA (Amycolatopsis keratiniphila)
放線菌の酵素AshAは、ヒスチジンを2位で硫黄化する
1.11 Åの結晶構造で、ヒスチジンの向きが反応位置を決めると示した
PdpC (F. tularensis subsp. novicida)
野兎病菌のPdpCは、タツノオトシゴ形の新しい折りたたみをもつ
3.4 Åのクライオ電顕構造で5つのドメインを示し、PI(3)Pへの結合を調べた
FMDV O/Cathay topotype + porcine antibody pO18-29
口蹄疫ウイルスは、VP3の2残基の変異で抗体を逃れる
ブタ抗体pO18-29との複合体をクライオ電顕で解析し、結合の差を示した
2026.10.184
Human OCTN1 (SLC22A4)
OCTN1の外向き・内向きの構造から、阻害薬メベンダゾールを見いだした
ヒトOCTN1のapo型とエルゴチオネン結合型をクライオ電顕で解き、構造に基づく仮想スクリーニングで阻害剤を探した
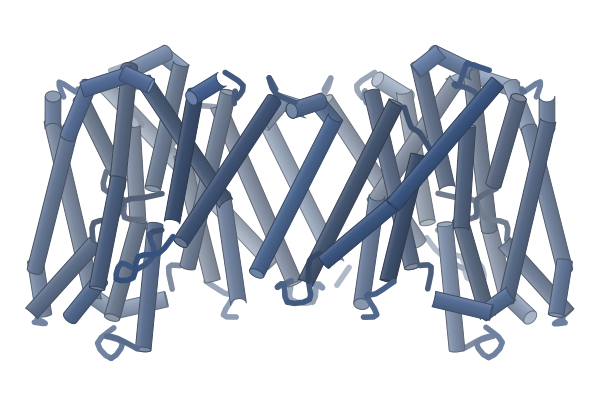
Human NHA1 (SLC9B1)
ヒトNHA1の内向き構造は、エレベーター型の輸送を裏づける
精子の運動に関わるNa⁺/H⁺交換体を3.6 Åで解析し、モデルした外向き状態との比較でコア領域の動きを調べた
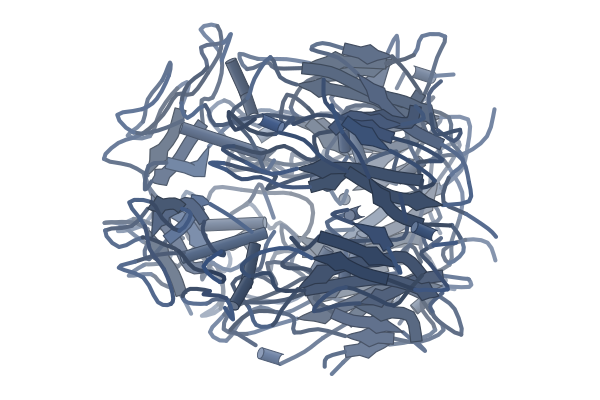
Vaccinia virus D13 (scaffold)
A17の末端ペプチドが、D13の棒状集合体を足場の格子に組み替える
足場タンパク質D13の2種類の集合体をクライオ電顕で解析し、棒状から格子への移行を示した。
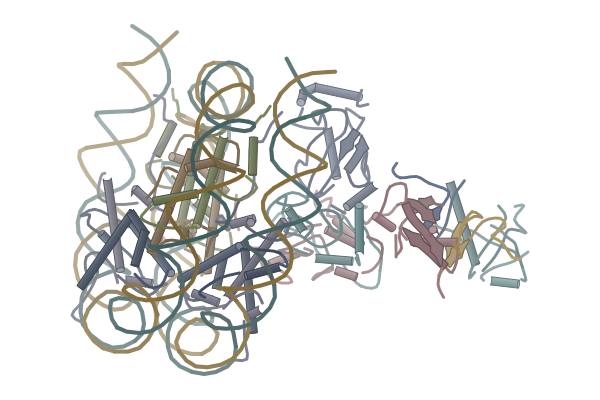
Human cPRC1 (PRC1.4)
PRC1は4つのサブユニットを密に組み、E2酵素をヌクレオソーム上に置く
ヌクレオソーム結合型のヒトPRC1をクライオ電顕で解析し、PHC2を含む界面の働きを調べた
2026.10.163
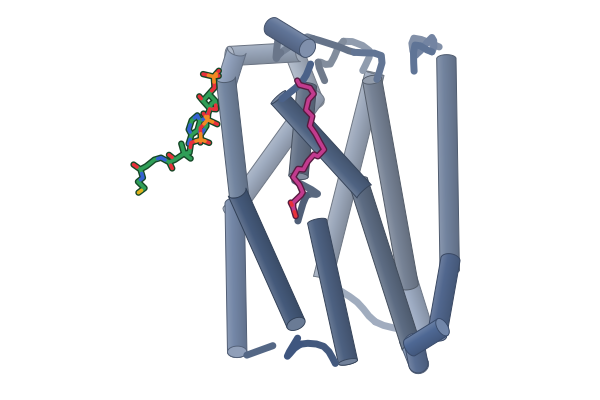
Human CLN8 (Batten disease protein)
CLN8は、BMPの材料LPGを立体を選んでつくる酵素だ
クライオ電顕で活性部位を示し、Batten病の変異は酵素活性を弱めた
Human DNAAF19–RUVBL1/2
DNAAF19は、シャペロンRUVBL1/2に結合して働くらしい
クライオ電顕でRUVBL1/2の環にDNAAF19とDPCDが結合する様子を示した
SaMurJ (S. aureus)
黄色ブドウ球菌のMurJの構造が、初めて明らかになった
外向きと内向きの2状態をクライオ電顕で解析し、大腸菌のMurJと同じ型の動きを示した
2026.10.141
Human ciliary transition zone (ECT2L, DZANK1)
ECT2LとDZANK1は、繊毛の根もとで微小管をつなぐ
気道細胞の中で構造を直接解析し、2遺伝子の変異は原発性線毛運動異常症の原因になる
2026.10.131
Pit2 (Ustilago maydis)
Pit2から切り出されたペプチドが、カビのGPCRを活性化する
Pit2の結晶構造で、リガンドのペプチドは二量体の芯に隠れていた
2026.10.114
WzmWzt (M. tuberculosis)
基質とATPで構造が切り替わる、結核菌のガラクタン輸送体
3つの状態をクライオ電顕で解析。ゲートヘリックスの動きが輸送のカギを握る
Human HLA-DR3–Ro60 peptide
Ro60ペプチドは、HLA-DR3の上で3つの残基をTCRに向ける
自己抗原ペプチドと結合したHLA-DR3の初の結晶構造(2.87 Å)。TCRを組み込んだTregは抑制力が約2倍に
NsRufO (P450)
P450酵素RufOのニトロ化には、基質のヒスチジンが欠かせない
抗生物質ルフォマイシンの合成で、His-5を介したプロトンの受け渡しが関わる可能性がある
Rho (M. tuberculosis)
結核菌のRhoは、天然変性のNIDで転写停止の目印を選ぶ
NIDを欠くと、Rhoが見つけるRut部位は1759か所から47か所に減った
2026.10.091
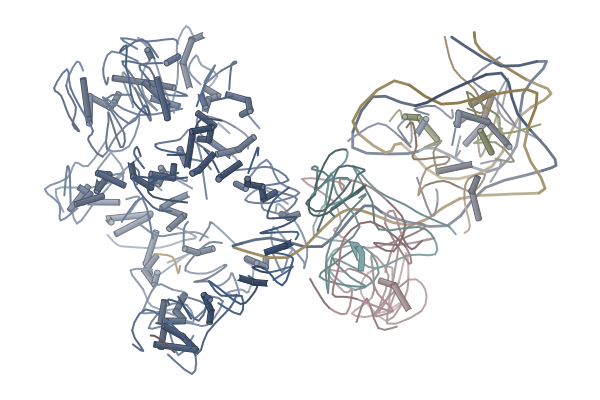
DNA-PK–nucleosome complex
Kuはヌクレオソームの末端で、約2巻き分のDNAをほどく
DNA-PKcsがKuを内側へ押し込む中間状態も、クライオ電顕で捉えた
2026.10.071
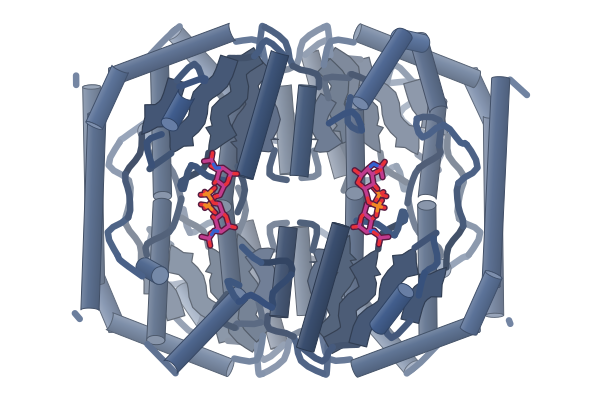
SpNanR (S. pneumoniae)
肺炎球菌のNanRは、代謝物が四量体をつなぎとめて安定化する
全長のapo型とDNA結合型の構造を決定。Arg67の対がDNAの副溝に入り込む