Contents

4 Articles
  1. 構造図:ヒトPARP2–HPF1/ヌクレオソーム

    Picked up·Structure Update

    Human PARP2–HPF1 / nucleosome

    PARP2は、ヌクレオソームの2周にまたがって切断を認識する

    阻害剤はDNA結合面を固めており、PARP2がクロマチンに捕捉される理由の説明になりうる
  2. 構造図:SpNanR(肺炎球菌)

    New Structure

    SpNanR (S. pneumoniae)

    肺炎球菌のNanRは、代謝物が四量体をつなぎとめて安定化する

    全長のapo型とDNA結合型の構造を決定。Arg67の対がDNAの副溝に入り込む

  3. Structure Update

    LbCas12a Lid2 mutant

    Lidをループに置き換えると、Cas12aは非標的鎖だけを切る

    Lid2変異体のクライオ電顕構造(2.5 Å)では、標的鎖を活性部位に装填する動きが妨げられていた

  4. 構造図:大腸菌NNT(PntA/PntB)

    Structure Update

    E. coli NNT (PntA/PntB)

    NNTは基質の結合でdIIIを外し、プロトン通路を切り替える

    全長の大腸菌NNTを複数の状態で解析。阻害剤パルミトイルCoAはapoに近い状態で固定する

Picked up Today’s Structure2026.10.071 Article

PARP2は、ヌクレオソームの2周にまたがって切断を認識する

阻害剤はDNA結合面を固めており、PARP2がクロマチンに捕捉される理由の説明になりうる
PaperStructural basis of PARP2 recognition of nucleosomal DNA breaks and inhibitor trapping

First authorChathuni Jayathilake (Case Western Reserve University, United States)

CorrespondingTae Hun Kim (Case Western Reserve University, United States)

JournalNucleic Acids Research

Published2026.10.05

LicenseCC BY 4.0

構造図:ヒトPARP2–HPF1/ヌクレオソーム
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • ヒストン H2AHistone H2A
  • ヒストン H2BHistone H2B
  • ヒストン H3Histone H3
  • ヒストン H4Histone H4
  • DNA 153 塩基(つながった鎖)DNA (153-MER)
  • DNA 130 塩基(切れた鎖)DNA (130-MER)
  • DNA 23 塩基(切れた鎖)DNA (23-MER)
  • PL2-6(抗体)mAb PL2-6 antibody
  • PARP2(切断を認識)Poly [ADP-ribose] polymerase 2
疑問・課題
クロマチンの狭い構造の中で、PARP2が一本鎖切断をどう認識するかは不明だった。
アプローチ
一本鎖切断を入れたヌクレオソームとPARP2・HPF1の複合体を、クライオ電顕で解析した。
結果
WGRドメインが切断部位に、ヘリカルドメインとHPF1が反対側のDNAに結合し、DNAの2周にまたがる。
わかったこと
この結合様式が、遊離DNAよりヌクレオソーム上の切断を好む理由を説明する。
残された課題
切断の位置が結合・活性化・クロマチン保持をどう左右するかは、今後の研究が必要とされる。

Highlights

WGRドメインが上側のDNAジャイアで切断を認識し、HDのArg296とHPF1の塩基性残基が下側のジャイアに接触。ヌクレオソームDNAの2周分をまたぐ結合が、裸のDNA(Kd 653 nM)よりヌクレオソーム上の切断(Kd 約55 nM)を強く好む理由を説明する。

原文

“free DNA containing the same SSB was bound with substantially lower affinity (Kd = 653 nM)”Results

オラパリブ・タラゾパリブ・EB-47はいずれもWGRの揺らぎを抑えてWGR–HD界面を安定化し、ART–HPF1触媒モジュールはむしろ動的になった。DNA結合面が固まることが、阻害剤によるPARP2のクロマチン上への「捕捉」の構造的な説明になりうる。阻害剤はDNAの非対称なほどけも促した。

原文

“Thus, inhibitor-associated nucleosome unwrapping is coupled to PARP2–HPF1 binding, rather than arising from a direct, global effect of PARPis on nucleosome structure.”Results

当初は複合体がグリッド上(空気–水界面)で壊れて見えなかった。ヌクレオソームのacidic patchに結合するscFv(PL2-6抗体由来)で安定化し、凝集しやすいN末端の天然変性領域を除いたPARP2(90–583)を使うことで構造決定に成功した。

原文

“we employed the scFv derived from the PL2-6 antibody, which is known to bind the acidic patch and stabilize nucleosomes for cryo-EM”Results

Lab Notes

発現系
PARP2はpET-SUMOでE. coli Rosetta 2 pLysS、20°Cで一晩誘導。HPF1はBL21(DE3)-CodonPlus(RIPL)、16°Cで一晩。
コンストラクト
ヒトPARP2 isoform 1の90–583(最初の89残基を除去)。全長はグリッド上で凝集した。WGRドメインのみ(90–212)も使用。
精製
Ni-NTA → ULP1でHis-SUMOタグ切断 → 逆Ni-NTA → HiTrap Heparin → Superdex 200。
結晶化/グリッド作製
ヌクレオソーム 2 µMにscFv 8 µMを先に加え、PARP2 5 µM・HPF1 8 µM(阻害剤は10 µM)を添加。架橋やゲルろ過はなし。Quantifoil R2/1 Cu、Vitrobot 4°C・湿度100%。
データ収集・解析
Titan Krios G3i(300 kV)+K3、エネルギーフィルター(スリット20 eV)。CryoSPARC v4.7.0で処理。

Related Articles

New Structure2026.10.071 Article

肺炎球菌のNanRは、代謝物が四量体をつなぎとめて安定化する

全長のapo型とDNA結合型の構造を決定。Arg67の対がDNAの副溝に入り込む

PaperMechanism of NanR transcriptional activation of sialic acid metabolism in Streptococcus pneumoniae

First authorDavid M Wood (University of Canterbury, New Zealand)

CorrespondingRenwick C J Dobson, Christopher R Horne (University of Canterbury, New Zealand)

JournalNucleic Acids Research

Published2026.10.05

LicenseCC BY 4.0

構造図:SpNanR(肺炎球菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • SpNanR(転写調節因子)MurR/RpiR family transcriptional regulator

Ligands

  • ManNAc-6-PBMX2-acetamido-2-deoxy-6-O-phosphono-alpha-D-mannopyranose
疑問・課題
NanRがシアル酸の代謝遺伝子をどう活性化するのか、分子レベルでは不明だった。
アプローチ
代謝物の探索と解析に加え、apo型・代謝物結合型・DNA結合型の全長構造を決めた。
結果
代謝物が結合すると四量体が安定化するが、DNAへの親和性は変わらない。
わかったこと
DNA結合ドメインが糖イソメラーゼドメインと構造的に連動しないためと説明される。
残された課題
ここで示した機構を生体内で確かめることが、今後の課題とされる。

Highlights

RpiRファミリー転写因子で、エフェクターなし(apo)とDNA複合体の全長構造は初めて。これまで全長のRpiR構造は2例しかなく、いずれもこの2状態ではなかった。

原文

“To date, no crystal structures of full-length RpiR bound to DNA or in the apo form (i.e. without effector) have been reported, representing a key knowledge gap in understanding the molecular mechanism of RpiR transcriptional regulators.”Introduction

ManNAc-6-Pは1分子で3つのプロトマーにまたがって結合し(リン酸基はSer135・Ser179・Ser181・Thr184、糖部分はArg148・Tyr229と隣の二量体のAsp160)、界面を組み替えずに四量体を「橋渡し」して安定化する。R148A変異体はエフェクターがあっても二量体のまま。

原文

“In contrast, SpNanRR148A is exclusively dimeric at the same concentration as wild type even in the presence of N-acetylmannosamine-6-phosphate”Results

各サブユニットのArg67がDNAの副溝に入り込み、2つのグアニジノ基が約3.6 Åの距離でπスタックする珍しい配置をとる。塩基との直接の接触は少なく、TpAステップでの副溝の歪みを読む「間接読み取り」で配列特異性を出していると考えられる。

原文

“The guanidinium groups π-stack ∼3.6 Å apart (averaged across the two dimers) and each forms a weak hydrogen bond with the N3 nitrogen of adenine at position 10”Results

Lab Notes

発現系
pET30ΔSEでE. coli BL21(DE3)。1 mM IPTGで誘導し、25°Cで一晩(14–16時間)。
コンストラクト
全長SpNanR(WP_000360349.1)を親和性タグなしで発現。
精製
硫安沈殿(50%飽和)→ 陰イオン交換 → ヘパリン → Superdex 200 Increase。タグを使わず電荷とDNA結合性で精製。
結晶化/グリッド作製
タンパク質1 µL+リザーバー1 µLで、結晶は4–16週かけて成長。初期位相は三ヨウ化物ソーキング(1–5分、それ以上は結晶が割れる)によるSAD。
データ収集・解析
Australian Synchrotron MX2(EIGER 16M)。弱い異常分散シグナルを補うため7データセットを統合。

Related Articles

Structure Update2026.10.072 Articles

Lidをループに置き換えると、Cas12aは非標的鎖だけを切る

Lid2変異体のクライオ電顕構造(2.5 Å)では、標的鎖を活性部位に装填する動きが妨げられていた

PaperSize and sequence variation of the Lid of the Cas12a nuclease domain results in a nickase phenotype

First authorRicardo Villegas Warren (Wageningen University & Research, Netherlands)

CorrespondingJohn van der Oost (Wageningen University & Research, Netherlands)

JournalNucleic Acids Research

Published2026.10.05

LicenseCC BY 4.0

構造図:LbCas12a Lid2変異体
疑問・課題
Cas12aは1つのRuvCで両鎖を切るため、ニッカーゼへの改変は容易でなかった。
アプローチ
大腸菌でLid領域の変異体を探し、Lid2を2.5 Åのクライオ電顕で解析した。
結果
Lid2ではαヘリックス状のLidが置き換わり、非標的鎖だけを切るニッカーゼになった。
わかったこと
作り替えたLidが非標的鎖を活性部位に保ち、標的鎖の切断に必要な動きを妨げるとみられる。
残された課題
このスクリーニングは、ニッカーゼ候補を見分ける定性的なもので、定量的ではない。

Highlights

野生型LbCas12aではαヘリックス状のLidがガイド–標的ヘテロ二重鎖やブリッジヘリックスと接触して開いた状態を保つ。Lid2ではこの接触が失われ、REC2ドメインのW355が外側へ約3.4 Å動く。Lid–REC2–TNBドメイン間のアロステリックな連携が崩れ、標的鎖の活性部位への装填が妨げられる。

原文

“W355 undergoes a 3.4-Å outward movement from the terminus of the heteroduplex”Results

野生型の結晶構造にはなかった一本鎖DNA(非標的鎖)の密度が、Lid2のRuvC活性部位に見えた。切断されるリン酸がマグネシウム2個(D832・E925・D1172が配位)とともに切断可能な位置にあり、Sanger配列解析で決めたPAMの14塩基下流という切断位置と一致する。変異したYCSSモチーフのY930が糖部分と疎水結合して非標的鎖をつなぎとめる。

原文

“Y930 in the YCSS motif forms a hydrophobic interaction with the ribose moiety of dG15*, facilitating the stable binding of the NTS within the RuvC active site”Results

狙った点変異(Lid1)だけでなく、設計が思いつかないような解も拾えたのがこのスクリーニングの強み。12アミノ酸のLidコアが全く別の4アミノ酸ペプチド(YCSS、8残基の欠失を伴う)に置き換わったLid2が偶然得られた。順序立った設計では見落とすタイプの変異だと著者は述べる。

原文

“the ordered α-helical Lid structure is replaced by a flexible loop, a solution that rational design would most likely have overlooked”Discussion

Lab Notes

発現系
N末端His6タグ付きLbCas12a-Lid2をE. coli Rosetta2 (DE3)で発現。37°CでOD600 0.8まで培養し、0.1 mM IPTGで誘導、20°Cで18時間。
コンストラクト
LbCas12a-Lid2(930–941のGFKNSRVKVEKQを YCSS に置換、8残基欠失)。
精製
Ni-NTA → HiTrap Heparin HP(0.3–2 M NaCl勾配)。40-nt crRNA・39-bp標的DNAと1:1.2:1.2:1.2で再構成し、Superdex 200 Increaseでゲルろ過。
結晶化/グリッド作製
アミルアミン処理したAu 300メッシュ R1.2/1.3グリッド、Vitrobot Mark IV 4°C・湿度100%、待機10秒・ブロット4秒。A260が4.0になるまで濃縮。
データ収集・解析
Titan Krios G3i(300 kV)+GIF+Gatan K3(カウンティング、東京大学)。cryoSPARC v4.4.0で処理。

NNTは基質の結合でdIIIを外し、プロトン通路を切り替える

全長の大腸菌NNTを複数の状態で解析。阻害剤パルミトイルCoAはapoに近い状態で固定する

PaperStructures of multiple states of the nicotinamide nucleotide transhydrogenase from Escherichia coli

First authorJiao Li (University of Science and Technology of China)

CorrespondingJiao Li, Kai Zhang (University of Science and Technology of China), Robert B Gennis (University of Illinois at Urbana-Champaign, USA) ほか 1 名

JournaliScience

Published2026.09.24

LicenseCC BY 4.0

構造図:大腸菌NNT(PntA/PntB)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

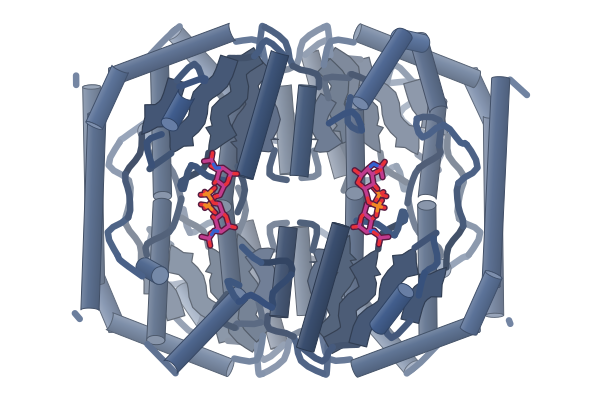
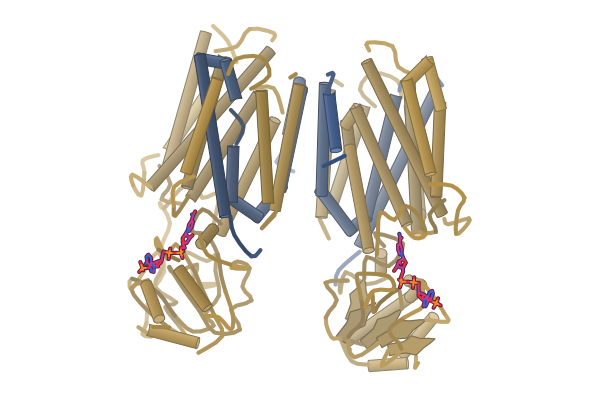
  • PntA(NNT α サブユニット)NAD(P) transhydrogenase subunit alpha
  • PntB(NNT β サブユニット)NAD(P) transhydrogenase subunit beta

Ligands

  • NADP+NAPNadp Nicotinamide-Adenine-Dinucleotide Phosphate
疑問・課題
全長の大腸菌NNTの構造と、状態の変化は分かっていなかった。
アプローチ
全長の大腸菌NNTを、apo・基質結合・阻害剤結合の状態でクライオ電顕で解析した。
結果
apoでは2つのdIIIが膜ドメインに張り付き、基質が結合すると外れて通路の向きが変わる。
わかったこと
dIIIの位置が、プロトン通路の開閉と触媒サイクルを左右する。
残された課題
プロトン勾配下のリポソーム再構成で、共役効率を直接調べることが今後必要とされる。

Highlights

dIIIの着脱がプロトン通路の開閉と連動する。さらに外れた2つのdIIIは同時には(dI)2と組まず、片方だけが上向きで寄り添う。二量体の左右で交互にヒドリド転移が進むという触媒サイクルのモデルを提示した。

原文

“The structures further indicate that two detached dIII domains do not engage (dI)2 simultaneously; only one adopts a (dI)2-associated orientation while the second dIII remains distal.”Discussion

阻害剤パルミトイルCoAはdIIIのNADP(H)結合ポケットに入り込み(アデニンのN6がAsp450と水素結合)、dIIIを下向き・膜付着のapo様状態に固定する。生化学で知られていた競合阻害の構造的な根拠になる。

原文

“Palmitoyl-CoA is buried within the pocket, partially occupying the position normally taken by NADP(H).”Results

柔軟で見えにくいdIを捉えるため、βのC末端とαのN末端を原生生物Paratrimastix pyriformis由来のリンカーでつないだ一本鎖変異体を設計。活性は野生型の約1/3を保ち、apoでdIまで含めてモデル化できた。著者はリンカーが動きを制約しうる点も注意している。

原文

“the linker could potentially restrict or bias the movements of dIII relative to dI”Discussion

Lab Notes

発現系
pntAB欠損株 C43(DE3) Δcyo ΔpntAB(THO株)にpET16b-EcTHを導入して発現。
コンストラクト
N末端Hisタグ付き。野生型と、β–リンカー–αの一本鎖融合体(102 kDa)。
精製
LMNGで可溶化し、IMAC → サイズ排除クロマトグラフィー。
結晶化/グリッド作製
Quantifoil R 2/1 金グリッド(300メッシュ)、Vitrobot Mark IV 8°C・湿度100%、ブロット2.5–4秒。阻害剤は1 mMで事前に添加。
データ収集・解析
Titan Krios+Gatan K3(カウンティングモード)。