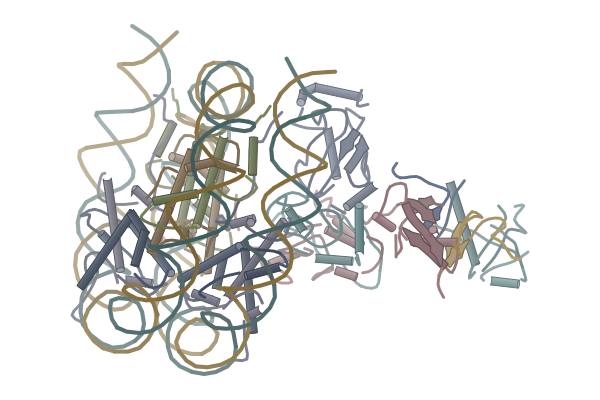
Issue No. 12 · Sunday

2026.10.18

10月17日に論文データベースへ登録された論文から

15Articles
約35分Reading time

New Structure4Structure Update10Structure-Based Study1

Today’s Structures

1 / 3
Contents
  1. AMPA receptor GluA2–γ2部分作動薬が、AMPA受容体の開く前の中間状態をとらえた
  2. Human OCTN1 (SLC22A4)OCTN1の外向き・内向きの構造から、阻害薬メベンダゾールを見いだした
  3. Human NHA1 (SLC9B1)ヒトNHA1の内向き構造は、エレベーター型の輸送を裏づける
  4. Vaccinia virus D13 (scaffold)A17の末端ペプチドが、D13の棒状集合体を足場の格子に組み替える
  5. Human cPRC1 (PRC1.4)PRC1は4つのサブユニットを密に組み、E2酵素をヌクレオソーム上に置く
  6. Human NLRP6 (inflammasome sensor)ATPがNLRP6の各ドメインを束ねて、活性化を抑える
  7. Tau filaments (AD and VT patient brains)ポリユビキチンの位置が動くと、タウ線維の原線維間の接合面がずれる
  8. Human β2AR dimerAP-7-168は分子糊としてβ2ARを二量体にし、アレスチンを遮る
  9. PDB 公開待ちHuman norovirus GII.4 Sydney VP1ノロウイルスの殻は、抗体が結合すると形を変えて受け止める
  10. PDB 公開待ちAsCas12a (ΨDNA guide)DNAガイドのCas12aは、DNAのヘアピンでPAM認識を真似る
  11. PDB 公開待ちSARS-CoV-2 NSP3 macrodomain (Mac1)共折りたたみAIは、Mac1に結合する薬の形を半数以上当てる
  12. Photosystem I monomer (T. vestitus)光合成の光化学系Iの単量体を、温度と界面活性剤で作る
  13. E. coli β-galactosidase · GroEL乾いたタンパク質は、レーザーで氷を溶かすと水を取り戻して元に近づく
  14. PDB 公開待ちHuman Pin1 WW domain + AIE peptide F11AIE蛍光色素は、タンパク質に結びつくと環の回転が止まって光る
  15. μOR–Gi complex (mouse, human)オピオイドの効力は、Gαドメインの開きやすさに表れる

Contents

15 Articles
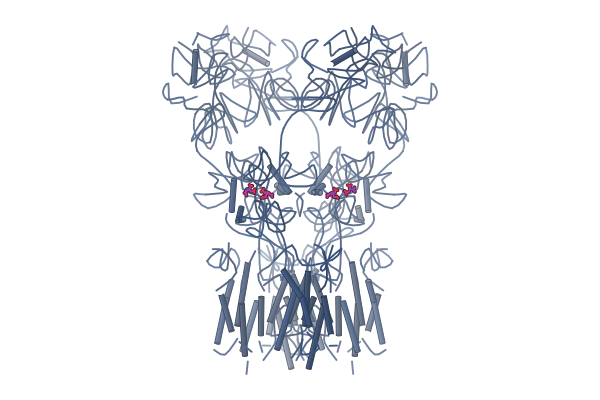
  1. 構造図:GluA2–γ2(AMPA受容体)

    Picked up·Structure Update

    AMPA receptor GluA2–γ2

    部分作動薬が、AMPA受容体の開く前の中間状態をとらえた

    時間分解クライオ電顕でGluA2–γ2の4つの状態を解析し、ドメインの閉じ角約17°が分かれ道だと示した。
  2. 構造図:ヒトOCTN1(SLC22A4)

    New Structure

    Human OCTN1 (SLC22A4)

    OCTN1の外向き・内向きの構造から、阻害薬メベンダゾールを見いだした

    ヒトOCTN1のapo型とエルゴチオネン結合型をクライオ電顕で解き、構造に基づく仮想スクリーニングで阻害剤を探した

  3. 構造図:ヒトNHA1(SLC9B1)

    New Structure

    Human NHA1 (SLC9B1)

    ヒトNHA1の内向き構造は、エレベーター型の輸送を裏づける

    精子の運動に関わるNa⁺/H⁺交換体を3.6 Åで解析し、モデルした外向き状態との比較でコア領域の動きを調べた

  4. 構造図:ワクシニアウイルスD13(足場)

    New Structure

    Vaccinia virus D13 (scaffold)

    A17の末端ペプチドが、D13の棒状集合体を足場の格子に組み替える

    足場タンパク質D13の2種類の集合体をクライオ電顕で解析し、棒状から格子への移行を示した。

  5. 構造図:ヒトcPRC1(PRC1.4)

    New Structure

    Human cPRC1 (PRC1.4)

    PRC1は4つのサブユニットを密に組み、E2酵素をヌクレオソーム上に置く

    ヌクレオソーム結合型のヒトPRC1をクライオ電顕で解析し、PHC2を含む界面の働きを調べた

  6. 構造図:ヒトNLRP6(炎症の感知因子)

    Structure Update

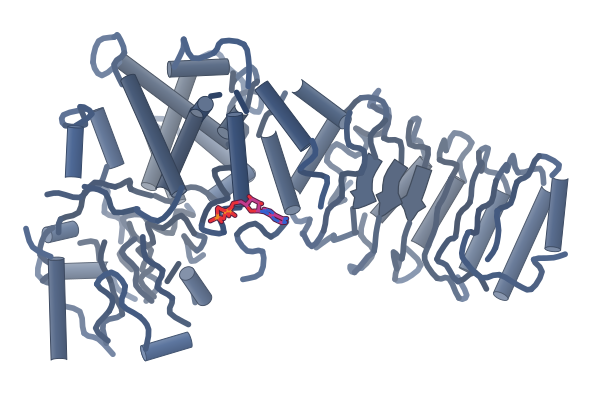
    Human NLRP6 (inflammasome sensor)

    ATPがNLRP6の各ドメインを束ねて、活性化を抑える

    ヒトNLRP6単量体の2つの構造から、別のポケットに入るATPと酸性ループが阻害状態を支えると示した。

  7. 構造図:タウ線維(AD・VT患者脳)

    Structure Update

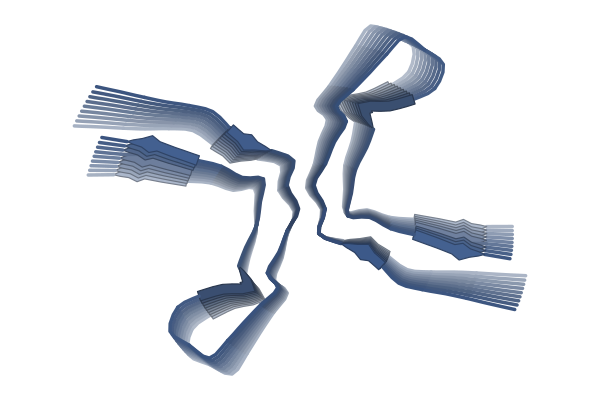
    Tau filaments (AD and VT patient brains)

    ポリユビキチンの位置が動くと、タウ線維の原線維間の接合面がずれる

    ADとVTの患者脳のタウ線維をクライオ電顕で解析し、ユビスタチンBの処理でVT Ia型の接合面が変わった

  8. 構造図:β2AR(ヒト)二量体

    Structure Update

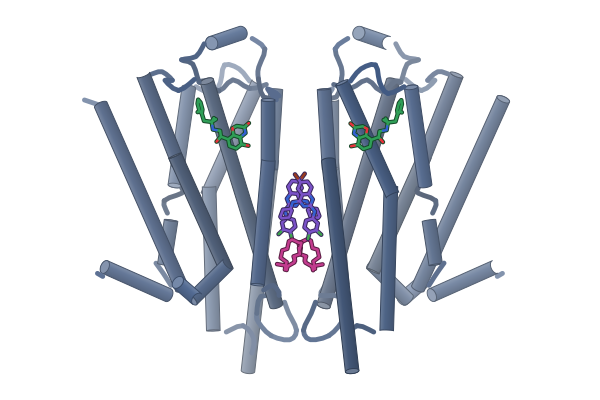
    Human β2AR dimer

    AP-7-168は分子糊としてβ2ARを二量体にし、アレスチンを遮る

    2分子のAP-7-168がTM3・4・5の間に収まって2つの受容体を結びつける様子を、クライオ電顕で捉えた

  9. Structure Update

    Human norovirus GII.4 Sydney VP1

    ノロウイルスの殻は、抗体が結合すると形を変えて受け止める

    流行株GII.4 Sydneyの殻をクライオ電顕で解析。抗体結合で殻タンパク質は11の構造をとる

  10. Structure Update

    AsCas12a (ΨDNA guide)

    DNAガイドのCas12aは、DNAのヘアピンでPAM認識を真似る

    ΨDNAガイドとRNA標的に結合したAsCas12aを、クライオ電顕で解析した

  11. Structure Update

    SARS-CoV-2 NSP3 macrodomain (Mac1)

    共折りたたみAIは、Mac1に結合する薬の形を半数以上当てる

    未公開のMac1–リガンド結晶構造551個で、AF3・Boltz-2・Chai-1を評価した

  12. 構造図:光化学系I単量体(T. vestitus)

    Structure Update

    Photosystem I monomer (T. vestitus)

    光合成の光化学系Iの単量体を、温度と界面活性剤で作る

    単量体の光化学系Iをクライオ電顕で高分解能に解析し、脂質や界面活性剤の配置を示した

  13. 構造図:β-ガラクトシダーゼ・GroEL(大腸菌)

    Structure Update

    E. coli β-galactosidase · GroEL

    乾いたタンパク質は、レーザーで氷を溶かすと水を取り戻して元に近づく

    ソフトランディングしたβ-ガラクトシダーゼを、30 µsのレーザー融解で再水和して解析した

  14. Structure Update

    Human Pin1 WW domain + AIE peptide F11

    AIE蛍光色素は、タンパク質に結びつくと環の回転が止まって光る

    ペプチドをつないだAIE分子とhPin1-WWドメインの複合体を、NMRの溶液構造で解析した

  15. 構造図:μOR–Gi 複合体(マウス・ヒト)

    Structure-Based Study

    μOR–Gi complex (mouse, human)

    オピオイドの効力は、Gαドメインの開きやすさに表れる

    既存の構造を使い、一分子FRETでμOR–Gi複合体のAHDの動きを測った。強い作動薬ほど開きが速い

Picked up Today’s Structure2026.10.181 Article

部分作動薬が、AMPA受容体の開く前の中間状態をとらえた

時間分解クライオ電顕でGluA2–γ2の4つの状態を解析し、ドメインの閉じ角約17°が分かれ道だと示した。
PaperPre-activation and gating pathway of AMPA receptors revealed by full and partial agonists

First authorThomas P Newton (Columbia University, USA)

CorrespondingAlexander I Sobolevsky (Columbia University, USA)

JournalNature Structural & Molecular Biology

Published2026.09.09

LicenseCC BY-NC-ND 4.0

構造図:GluA2–γ2(AMPA受容体)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • GluA2–γ2(AMPA 受容体)Isoform Flip of Glutamate receptor 2,Voltage-dependent calcium channel gamma-2 subunit

Ligands

  • カイニン酸KAI3-(Carboxymethyl)-4-Isopropenylproline
疑問・課題
AMPA受容体が開く前の中間体である前活性状態は、構造がよく分かっていなかった。
アプローチ
部分作動薬またはGluを加えて素早く凍結する時間分解クライオ電顕で、GluA2–γ2の状態の集まりを調べた。
結果
リガンド結合ドメイン(LBD)の閉じが約17°を超えると開状態か脱感作状態に進み、それより小さいと前活性状態にとどまった。
わかったこと
前活性状態のゲートは閉と開の中間の形をとるが、孔は閉じたままで、イオンと水は通さない。
残された課題
この方法では4つのサブコンダクタンス状態すべての構造は得られず、より速い時間分解クライオ電顕などが助けになるとされる。

Highlights

前活性状態ではLBDの上側(D1)の二量体界面が保たれたまま下側(D2)だけが離れる(S635間で24 Å、apoは17 Å)。前活性状態は、開状態と脱感作状態に分かれる分岐点にあたる。

原文

“Pre-activation, therefore, represents an intermediate bifurcation point in the AMPAR gating pathway”Results

室温で作動薬を加えてから2.5秒以内に凍結した。KAは前活性状態だけ、IWは開状態だけ、NOWは3つの状態を示し、作動薬ごとに状態の分布が違った。

原文

“with the time between the agonist application and plunging shorter than 2.5 s”Results

単一チャネル記録では、どの部分作動薬でもGluと同様に4段階のコンダクタンスが見られた。MDでは前活性状態で水が通らず、開状態では孔に水が行き来した。

原文

“In contrast, for all open-state structures, the pore remained continuously hydrated throughout the entire simulation trajectories”Results

Lab Notes

発現系
BacMam 系で HEK 293 GnTI− 細胞に発現。
コンストラクト
ラット GluA2flip(Q586)とマウス γ2(L207 で切断)の融合体。C 末端にトロンビン切断部位、eGFP、Strep-II。
精製
1% ジギトニンで可溶化し、ストレプトアビジン樹脂 → トロンビンでタグ除去 → Superose 6 Increase でサイズ排除。
結晶化/グリッド作製
UltrAuFoil R1.2/1.3 の 300 メッシュ金グリッド。部分作動薬 250 μM(Glu は 1 mM)を加えて 2.5 秒以内に自作の装置で凍結。
データ収集・解析
Titan Krios(300 kV)、Gatan K3。cryoSPARC v4.4 で処理。

Related Articles

New Structure2026.10.184 Articles

OCTN1の外向き・内向きの構造から、阻害薬メベンダゾールを見いだした

ヒトOCTN1のapo型とエルゴチオネン結合型をクライオ電顕で解き、構造に基づく仮想スクリーニングで阻害剤を探した

PaperStructural and mechanistic insights into OCTN1-mediated transport and cancer cell proliferation

First authorBinghong Xu (Tianjin University, China)

CorrespondingBinghong Xu, Sai Shi, Cheng Zhu (Tianjin University, China) ほか 3 名

JournalNature Communications

Published2026.09.14

LicenseCC BY-NC-ND 4.0

構造図:ヒトOCTN1(SLC22A4)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • OCTN1(輸送体)Solute carrier family 22 member 4
疑問・課題
OCTN1が基質を認識して運ぶ仕組みは、構造の面からはよく分かっていなかった。
アプローチ
ヒトOCTN1のapo型とエルゴチオネン(ET)結合型をクライオ電顕で解析し、構造をもとに阻害剤を探した。
結果
apo型は外向き(3.11 Å)、ET結合型は内向き(3.37 Å)だった。メベンダゾール(MBZ)はKD 2.48 nMで結合し、ET輸送を約60%抑えた。
わかったこと
OCTN1はNa⁺と共役して輸送する。MBZは、がん細胞の増殖を、OCTN1を介して抑えるとみられる。
残された課題
MBZを結合させたOCTN1のクライオ電顕構造は、最適化を重ねても決められなかった。

Highlights

ETの結合ポケットは芳香族残基(Y211、F239、F441)が囲み、R469がETのカルボキシ基と水素結合を作る。R469をAlaに替えると取り込みが85%以上失われた。OCT1ではこの位置がAspで、OCTN1ではE381とR469の電荷の組み合わせが、双性イオンのETを受け入れるのに役立つと論文は述べている。

原文

“The R469A substitution was most detrimental, abrogating over 85% of uptake activity”Results

ET結合型の構造を使った承認薬の仮想スクリーニングで、駆虫薬メベンダゾール(MBZ)が最上位の候補になった。HeLaとA549細胞の増殖を抑え、OCTN1をノックダウンするとこの効果はほぼ消えた。マウス異種移植でも腫瘍が約3分の1になった。MBZの結合の様子は、AF3予測とMDによるモデルである。

原文

“indicating that the anti-proliferative effect of MBZ was largely abolished upon OCTN1 depletion”Results

外向きのapo型と内向きのET結合型を比べると、C末端側のドメインがN末端側のドメインに対して剛体として動いていた。TM7とTM10の細胞外側が内側に傾き、細胞質側が開く。TM8だけは約40°傾き、その仕組みは未解明である。

原文

“undergoing a ~ 40° helical tilt during the outward-to-inward conformational transition”Results

Lab Notes

発現系
HEK293F細胞にBacMam法で発現(バキュロウイルスをSf9で作り、MOI 20で感染、酪酸ナトリウム添加)。
コンストラクト
全長ヒトOCTN1、C末端にtwin-Strepタグ(pEG-BacMam)。
精製
LMNG/CHSで可溶化し、Strep-Tactinアフィニティ → Superose 6によるサイズ排除クロマトグラフィー。ET結合型は2 mM ETと氷上で一晩インキュベート。
結晶化/グリッド作製
Quantifoil Au R1.2/1.3(300メッシュ)、Vitrobot Mark IV、8°C・湿度100%。
データ収集・解析
Titan Krios。apoはK3(9,779ムービー)、ET結合型はFalcon 4(9,385ムービー)。cryoSPARCで処理。

Related Articles

ヒトNHA1の内向き構造は、エレベーター型の輸送を裏づける

精子の運動に関わるNa⁺/H⁺交換体を3.6 Åで解析し、モデルした外向き状態との比較でコア領域の動きを調べた

PaperCryo-EM structure of human Na+/H+ exchanger NHA1 in an inward-open conformation

First authorBingjie Tang (The Hong Kong University of Science and Technology, China)

CorrespondingShangyu Dang (The Hong Kong University of Science and Technology, China)

JournalNature Communications

Published2026.09.15

LicenseCC BY-NC-ND 4.0

構造図:ヒトNHA1(SLC9B1)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • NHA1(Na+/H+ 交換体)Sodium/hydrogen exchanger 9B1
疑問・課題
精子の運動と男性の生殖能力に関わるNHA1の、構造と輸送の仕組みは分かっていなかった。
アプローチ
ヒトNHA1の全長をクライオ電顕で解析し、モデルした外向き状態と比べて、変異体のNa⁺輸送も測った。
結果
3.6 Åの内向き構造が得られた。外向きと比べ、コア領域がダイマー領域に対して細胞質側へ大きく動いていた。
わかったこと
この動きはエレベーター型の輸送機構を支持する。D258・D259・E453などの残基が、状態の切り替えと輸送に関わるらしい。
残された課題
ダイマー界面に見える脂質とみられる密度の正体と役割は、さらに調べる必要がある。

Highlights

NHA1は2つの鎖がTM0とTM8で組み合わさったダイマーで、各鎖は14本の膜貫通ヘリックスを持つ。内向きの構造では、イオン結合部位のD259に細胞質側から届く通路が見える。D258とD259のどちらか一方を替えても輸送はわずかに下がるだけで、両方を替えると大きく下がった。

原文

“Each NHA1 protomer contains 14 transmembrane helices (TMs), TM0 to TM13”Results

内向き状態ではE453がR157と塩橋を作る。モデルした外向き状態では、R157はE387と組むと予測された。E453をAlaに替えると輸送が大きく下がった。著者はこれを構造から導いた仮説と位置づけ、R157が切り替えの支点になりうると述べている。

原文

“Among these mutants, E453A exhibited significantly reduced transport activity”Results

構造では見えない C 末端のS503を、リン酸化の有無を模した変異で調べた。リン酸化を模したS503Dは野生型の約2倍の輸送活性を示し、精子の受精能獲得で活性を調節している可能性が示唆された。

原文

“These observations suggest a potential role for S503 phosphorylation in regulating NHA1 transport activity”Results

Lab Notes

発現系
HEK293S GnTI−細胞にBacMam法で発現(Sf9で作ったバキュロウイルスを感染、酪酸ナトリウム添加、30°Cで48時間)。
コンストラクト
全長ヒトNHA1、C末端にFLAG-TEV切断部位-eGFP(pEG BacMam)。
精製
DDM/CHSで可溶化し、GFPナノボディ樹脂で精製。TEVでタグを切り、Superose 6でLMNGに置換しながらサイズ排除クロマトグラフィー。
結晶化/グリッド作製
1.2 mg/mL、Quantifoil R1.2/1.3 金300メッシュ、Vitrobot Mark IV、4°C・湿度100%、ブロット4.5秒。
データ収集・解析
Titan Krios G3+K3+BioQuantum、ピクセルサイズ1.06 Å、総線量約50 e−/Ų。cryoSPARCで処理し、最終は270,161粒子。

Related Articles

A17の末端ペプチドが、D13の棒状集合体を足場の格子に組み替える

足場タンパク質D13の2種類の集合体をクライオ電顕で解析し、棒状から格子への移行を示した。

PaperStructural transition of the immature poxvirus scaffold from preassembly to the scaffold lattice

First authorYeontae Jang (Sungkyunkwan University, Republic of Korea)

CorrespondingJaekyung Hyun (Sungkyunkwan University, Republic of Korea)

JournalNature Communications

Published2026.09.15

LicenseCC BY-NC-ND 4.0

構造図:ワクシニアウイルスD13(足場)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • D13(足場)Scaffold protein OPG125
疑問・課題
未成熟ウイルス粒子の足場がどう組み上がるかは、粒子の形が不規則で、よく分かっていなかった。
アプローチ
試験管内で作らせたD13(足場タンパク質)の2種類の集合体を、クライオ電顕とトモグラフィーで解析した。
結果
足場様粒子(SLP)は2.9 Å、棒状のtwisterは3.9 Åで解析。A17のN末端ペプチドを加えるとtwisterがSLPに変わった。
わかったこと
A17の末端がD13の底の空洞に入ると、棒状の事前集合体が不安定になり、足場の形成が始まると著者は提案している。
残された課題
膜に埋め込んだ全長A17を使って、この組み替えを試験管内で再現することが次の課題とされる。

Highlights

twisterは、D13三量体6個の環が2枚向かい合い、約12 Åの隙間を挟んで約19.3°ねじれた構造だった。底の空洞の芳香族残基(F環)をアラニンに替えた変異体はtwisterを作らなかった。

原文

“the rings are slightly rotated relative to each other by approximately 19.3°, precluding axial alignment”Results

A17が結合する底の空洞は、リファンピシンの結合部位でもある。著者は、足場タンパク質を標的にする抗ウイルス薬の設計の土台になると述べ、結合面の保存から広い抗ウイルス薬の可能性にも触れている。

原文

“the conservation of intertrimeric interfaces across poxvirus genera suggests the potential for developing broad-spectrum antiviral agents”Discussion

形が不規則に見える粒子でも、繰り返し単位を通常の単粒子解析で解けた。eGFPを付けたD13も同じ足場様粒子を作り、N末端が底の空洞に入ることは形成の必須条件ではないと分かった。

原文

“its translocation into the base cavity is not a prerequisite”Results

Lab Notes

発現系
大腸菌 BL21 (DE3) で発現(eGFP-D13 は Rosetta (DE3))。
コンストラクト
pPROEX-HTa に全長 D13(1–551)、N 末端欠失(18–551)、F 環・N 末端の変異体、eGFP-D13 融合体。
精製
Ni-NTA による IMAC。TEV プロテアーゼで His6 タグを除去(His6-D13 を除く)し、サイズ排除クロマトグラフィー。
結晶化/グリッド作製
精製タンパク質(26 μM)を 150 mM NaCl に透析して集合体を作製。グリッドは Quantifoil R1.2/1.3 Cu 300 メッシュ、Vitrobot Mark IV。
データ収集・解析
Krios G4(K3 または Falcon 4i)。単粒子解析は cryoSPARC v4.5.3。

Related Articles

PRC1は4つのサブユニットを密に組み、E2酵素をヌクレオソーム上に置く

ヌクレオソーム結合型のヒトPRC1をクライオ電顕で解析し、PHC2を含む界面の働きを調べた

PaperCryo-EM structure, enzymatic activity and genome targeting of canonical PRC1

First authorMaria Ciapponi (Max-Planck Institute of Biochemistry, Germany)

CorrespondingJacques Bonnet, Jürg Müller (Max-Planck Institute of Biochemistry, Germany)

JournalNature Structural & Molecular Biology

Published2026.09.14

LicenseCC BY 4.0

構造図:ヒトcPRC1(PRC1.4)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • PHC2(サブユニット)Isoform 2 of Polyhomeotic-like protein 2
  • CBX7(サブユニット)Chromobox 7
  • RING1B(E3)E3 ubiquitin-protein ligase RING2
  • BMI1(サブユニット)Polycomb complex protein BMI-1
  • UBCH5C(E2)Ubiquitin-conjugating enzyme E2 D3
  • ヒストン H3Histone H3
  • ヒストン H4Histone H4
  • ヒストン H2AHistone H2A
  • ヒストン H2BHistone H2B
  • DNA(一方の鎖)DNA (151-MER)
  • DNA(相補鎖)DNA (151-MER)
疑問・課題
PRC1全体の構造は未解明で、サブユニットの配置や触媒の連携は分かっていなかった。
アプローチ
RING1B・BMI1・PHC2・CBX7とUBCH5Cを、H3K27me3ヌクレオソームに結合させてクライオ電顕で解析した。
結果
2.7 Åの構造で、4つのサブユニットがβシートでつながる密な構造をとり、UBCH5Cの位置を決めていた。
わかったこと
PHC2は複合体の組み立てと酵素活性をつなぎ、ショウジョウバエのPhのSAMドメインは標的遺伝子への集合に必要だった。
残された課題
PHC2とUBCH5Cの相互作用が生体内でH2A修飾に寄与するかは、今後の変異体解析で調べる必要がある。

Highlights

BMI1のRAWULドメインがUBCH5Cの背面に位置し、RING1Bとの複合面でUBCH5C R15を挟む。従来はUBCH5CがRING1Bのみと結合するとされていた。さらにPHC2もUBCH5Cに近接し、PHC2のLLVGモチーフをアラニンに置換すると活性が2倍超低下した。

原文

“the PRC1(PHC24A) mutant complex exhibited more than a twofold reduction in E3 ligase activity toward H2A monoubiquitination compared to wild-type (WT) PRC1”Results

4サブユニット版のPRC1は10分でH2AK119のモノユビキチン化がほぼ完了し、RING1B–BMI1二量体より活性が高かった。ショウジョウバエのPh(PHC2の相同分子)のSAMドメインは、複合体の形成には不要だが、標的遺伝子での局在とH2Aのユビキチン化に必要だった。

原文

“Thus, although V5–PhΔSAM retains the capacity to assemble into PRC1 (Fig. 4h), it fails to recruit the complex to PREs.”Results

ビオチン化ヌクレオソームをストレプトアビジン単層のグリッドに結合させて撮影した。UBCH5Cがないと複合体の上部が大きく揺らぎ、UBCH5Cの存在で安定化した。CBX7のクロモドメインは分解能が足りず、モデルに含められなかった。

原文

“Lastly, we note that the conformation of the upper lobe of PRC1 is stabilized in the presence of UBCH5C.”Results

Lab Notes

発現系
RING1B・BMI1・CBX7・PHC2をTrichoplusia ni HighFive昆虫細胞で共発現。
コンストラクト
ヒトの全長配列。PHC2のSAMドメインにL307E;L311E置換を入れてオリゴマー化を防いだ。
精製
Ni-NTA、Strep-Tactin、タグ除去後に陽イオン交換とサイズ排除クロマトグラフィー。
結晶化/グリッド作製
5′ビオチン化ヌクレオソーム(H3Kc27me3)を、ストレプトアビジン単層で覆ったQuantifoil R2/2金グリッドに結合させ、Vitrobot Mark IV(4℃、湿度96%)で凍結。
データ収集・解析
Titan Krios(300 kV)とGatan K3、SerialEMで収集。cryoSPARC 4.7.0で解析し、2.7 Å(FSC 0.143)。

Related Articles

Structure Update2026.10.189 Articles

ATPがNLRP6の各ドメインを束ねて、活性化を抑える

ヒトNLRP6単量体の2つの構造から、別のポケットに入るATPと酸性ループが阻害状態を支えると示した。

PaperStructural mechanisms for ATP-mediated inhibition of human NLRP6 inflammasome

First authorZhen Cui (Washington University School of Medicine, USA)

CorrespondingChen Shen (Washington University School of Medicine, USA)

JournalNature Structural & Molecular Biology

Published2026.09.08

LicenseCC BY-NC-ND 4.0

構造図:ヒトNLRP6(炎症の感知因子)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • NLRP6(センサー)NACHT, LRR and PYD domains-containing protein 6

Ligands

  • ATPAdenosine-5'-Triphosphate
疑問・課題
NLRP6が、どのような構造で抑えられた状態に保たれているかは分かっていなかった。
アプローチ
ヒトNLRP6単量体を、ATP結合型と非結合型の2状態でクライオ電顕により解析し、変異体を細胞で調べた。
結果
ATPは通常のATP結合部位とは別のポケットに入り、NACHTの各ドメインとLRRをつないで縮めていた。
わかったこと
ATPの結合やNBDの相互作用を壊すと活性化が進み、NLRP6はATPなどの協同で自己抑制されている。
残された課題
細胞実験はNLRP6を本来発現しない細胞での過剰発現系で、生理的な意義は今後の検証課題とされる。

Highlights

NLRP3などでADPが入る正規の触媒ポケットは空で、ATPはHD1・HD2・NBD・WHD・LRRと酸性ループが集まる別のポケットに入っていた。γリン酸にはE609、E613、H539などが水素結合していた。

原文

“The γ-phosphate group establishes a strong hydrogen-bonding network with E609 and E613 in the acidic loop, H539 in the HD2 domain, backbone of A330 in the NBD domain and E504 in the WHD domain”Results

ATP結合部位の変異(H539L、Y623A)はATP加水分解を2.0倍と3.8倍に高め、細胞でもカスパーゼ-1の切断を増やした。酸性ループは、ねじれ型ではATPを覆って固定していた。

原文

“the short acidic loop (E609–N616) at the C-terminal of HD2 domain acts as a shield to stabilize the ATP molecule in the inhibitory pocket”Results

NLRP3の阻害剤MCC950は、NLRP3で似た位置に結合するが、この再構成系ではNLRP6を抑えなかった。著者は、NLRP6に選択的な阻害薬・活性化薬を探す道が開けると述べている。

原文

“Although MCC950 is a potent NLRP3 inhibitor, NLRP6 inflammasome activity was not inhibited by MCC950 in our reconstituted system”Discussion

Lab Notes

発現系
Sf9 昆虫細胞にバキュロウイルス(Bac-to-Bac)で発現。
コンストラクト
N 末端側を欠いた NLRP6(14–892)に N 末端 His6-MBP タグ(切断しないリンカー)。
精製
Ni-NTA → サイズ排除クロマトグラフィー(Superdex 200 Increase)を、塩濃度を下げて 2 回。
結晶化/グリッド作製
Quantifoil R1.2/1.3 Cu 300 メッシュ、Vitrobot、ブロット 4 秒、湿度 100%。
データ収集・解析
Titan Krios(300 kV)+Falcon4EC、Leginon で収集。cryoSPARC v4.4.0 で処理。

Related Articles

ポリユビキチンの位置が動くと、タウ線維の原線維間の接合面がずれる

ADとVTの患者脳のタウ線維をクライオ電顕で解析し、ユビスタチンBの処理でVT Ia型の接合面が変わった

PaperRepositioning of polyubiquitin alters the pathologic tau filament structure

First authorRyohei Watanabe (Perelman School of Medicine at the University of Pennsylvania, USA)

CorrespondingEdward B. Lee (Perelman School of Medicine at the University of Pennsylvania, USA)

JournalNature Structural & Molecular Biology

Published2026.08.31

LicenseCC BY-NC-ND 4.0

構造図:タウ線維(AD・VT患者脳)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • タウ(MAPT)Microtubule-associated protein tau
疑問・課題
タウ線維の核(コア)の外側にある密度が線維の安定性に与える影響は、よく分かっていなかった。
アプローチ
AD・VT患者脳のタウ線維を解析し、ユビスタチンBでポリユビキチンの極性を変えてクライオ電顕で比べた。
結果
処理したVTでは未処理で見えない6種の線維が現れ、VT Ia型は減少した。弱い密度は正電荷の残基の側へ移った。
わかったこと
コアの外側の要素(翻訳後修飾など)が、タウ線維の構造と安定性に影響しうることが示唆された。
残された課題
他のタウオパチーの線維でも同様の修飾依存の変化が起きるかは、今後ユビスタチンBで調べる必要がある。

Highlights

VT(液胞性タウオパチー)の脳には5種類のタウ線維がある。ADの線維はVTの3例では見つからなかった。VT Ia・II・IIIは既知の構造と対応し、VT IVとVでは新しい原線維の接合面が見られた。マウスへの接種でも、AD由来とVT由来のタウは異なる広がりを示した。

原文

“In contrast, VT tau-injected mice showed more cortical and contralateral tau pathology, mimicking the preferential neocortical involvement seen in VT (Fig. 1c).”Results

ユビスタチンB処理でVT Ia型が減り、新しいVT Ib〜If型が現れた。K321とK331の間の距離はVT Iaの17.4 Åから、VT Ibの19.4 ÅからVT Ifの26.0 Åへ広がった。著者は、ポリユビキチンが接合面に集まって原線維を外側へ押したと解釈している。

原文

“the accumulation of polyubiquitin around the positively charged lysine residues at the protofilament interface appeared to have pushed VT Ia protofilaments outward”Results

K48結合型の二ユビキチンに結合する小分子ユビスタチンBで、コア外の弱い密度がポリユビキチンかを探った。ADのPHFとSFは処理後も同じ型のままで、変わったのはVT Iaの接合面だけだった。著者は、人為的な処理であり、脳から抽出した線維を使った点も限界として述べている。

原文

“Thus, their native distributional and interatomic features were not available.”Discussion

Lab Notes

精製
凍結したヒト前頭葉新皮質(灰白質)からサルコシル不溶性のタウ線維を段階的に抽出。
結晶化/グリッド作製
穴あきカーボングリッド(QuantiFoil R1.2/1.3、200メッシュ)に3 μLを滴下し、Leica EM GP2で液体エタンに凍結。ユビスタチンB処理は1 mM、約2.5 μMタウ、室温4時間。
データ収集・解析
Titan Krios G3i(300 kV)、Gatan K3、エネルギーフィルター20 eV。RELIONでらせん再構成。

Related Articles

AP-7-168は分子糊としてβ2ARを二量体にし、アレスチンを遮る

2分子のAP-7-168がTM3・4・5の間に収まって2つの受容体を結びつける様子を、クライオ電顕で捉えた

PaperA biased allosteric modulator is a molecular glue for β2AR dimerization

First authorJiemin Shen (Stanford University School of Medicine, USA)

CorrespondingJun Xu, Brian K. Kobilka (Stanford University School of Medicine, USA)

JournalNature

Published2026.08.19

LicenseCC BY-NC-ND 4.0

構造図:β2AR(ヒト)二量体
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • β2AR(受容体)Beta-2 adrenergic receptor

Ligands

  • エイコサンLFAEicosane
  • BI-167107P0G8-[(1R)-2-{[1,1-dimethyl-2-(2-methylphenyl)ethyl]amino}-1-hydroxyethyl]-5-hydroxy-2H-1,4-benzoxazin-3(4H)-one
  • AP-7-168A1CNS6-bromo-N~4~-cyclohexyl-N~2~-(3,4-difluorophenyl)quinazoline-2,4-diamine
疑問・課題
β2ARを偏って阻害する化合物AP-7-168が、どのような分子機構で働くのかは分かっていなかった。
アプローチ
AP-7-168を結合させたβ2ARをクライオ電顕で解析し、生化学・生物物理の実験と細胞での二量体化の測定を組み合わせた。
結果
2分子のAP-7-168がTM3・4・5が作る空間に収まり、受容体2つをつないでいた(2.5 Å)。細胞でも二量体化が起きた。
わかったこと
二量体は隣の受容体との立体障害でGRKやβアレスチンの結合を妨げる一方、Gタンパク質は受け入れうると考えられる。

Highlights

AP-7-168は、2分子が互いに積み重なる形でTM3・4・5が作る空間に収まる。2-アミノ基がGlu122とつくる水素結合など、これまでの構造活性相関と変異の結果を説明できる。非偏りのNAM AS408と結合部位は重なるが、キナゾリン環は180°反転していた。

原文

“Moreover, the 2-amino group in AP forms hydrogen bond interactions with Glu1223.41 in TM3 (Fig. 2a).”Structural basis of AP binding

二量体のβ2ARは、AP存在下でGRK5によるリン酸化がほぼ完全に阻害され、βアレスチンによるアゴニスト親和性の上昇も消えた。一方で単量体では影響が小さい。Gsとは二量体でも結合した。リガンドが二量体を安定化して偏りを生む戦略の可能性を示している。

原文

“Despite adopting an inactive conformation in the structural models, the β2AR dimer retains the ability to engage Gs”Biased signalling of AP-mediated dimer

精製した単量体にAPを加えても二量体はできにくかったが、細胞膜をAPで処理してから界面活性剤で可溶化すると、ほぼ完全に二量体化した。連続した流動性のある膜が、膜貫通部の接触を助けることを示唆している。

原文

“Although incubation of AP with purified monomeric β2AR in detergent did not result in efficient dimerization as assessed by SEC (Fig. 1c), we achieved almost complete β2AR dimerization by pretreating resuspended cell membrane with AP for around 30 min at room temperature before detergent extraction (Fig. 1c and Methods).”Structure determination of AP-bound β2AR

Lab Notes

発現系
β2AR(PN1コンストラクト)をSf9細胞で発現。二量体は、細胞を10 μM APとともに30分処理してから可溶化。
精製
LMNGで可溶化し、M1抗Flag親和精製とSuperdex 200によるゲルろ過。10 μM APを精製中ずっと維持。
結晶化/グリッド作製
二量体はPOPC:POPS:コレステロール(7:2:1)のナノディスク(MSP1E3D1)に再構成し、アゴニストBI-167107を加えた。Quantifoil R1.2/1.3 Auグリッド、Vitrobot Mark IV。
データ収集・解析
Titan Krios G3i(300 kV)。ナノディスク試料は17,997枚を収集し、cryoSPARCで解析(二量体にC2対称を適用)。

Related Articles

ノロウイルスの殻は、抗体が結合すると形を変えて受け止める

流行株GII.4 Sydneyの殻をクライオ電顕で解析。抗体結合で殻タンパク質は11の構造をとる

PaperSymmetry-breaking antibody binding reveals extensive capsid malleability in pandemic human norovirus

First authorCarmen V Apostol (Baylor College of Medicine, USA)

CorrespondingB V Venkataram Prasad (Baylor College of Medicine, USA)

JournalResearch Square

Published2026.09.21

LicenseCC BY 4.0

構造図:ヒトノロウイルスGII.4 Sydney VP1
疑問・課題
ヒトノロウイルスの殻が、抗体の圧力にどう応えるかは原子レベルで分かっていなかった。
アプローチ
流行株GII.4 SydneyのVLPと、抗体M6・Fab NORO-320の複合体をクライオ電顕と焦点を絞った精密化で解析した。
結果
結合部位の違いで、殻タンパク質VP1は11通りの構造をとった。壊れた粒子は小さな粒子に組み直された。
わかったこと
VP1は抗体の非対称な結合に合わせて形を変える。この柔軟さは、ワクチン設計に関わると著者は述べている。

Highlights

ウイルス様粒子(VLP、ウイルスの殻だけを人工的に作った粒子)のT=3粒子では、非中和ナノボディM6が結合するとP領域(殻から突き出た部分)が持ち上がり、A-B二量体で3通り、C-C二量体で3通りの結合様式が見えた。隣り合う二量体どうしの立体障害で、結合様式の組み合わせは限られる。

原文

“Across all structures, the P-domains are raised above the shell to reveal the M6 epitope.”Results

M6を加えるとT=4粒子は壊れ、約30 nmの小さなT=1粒子に組み直された。T=4の殻は曲がりが大きく、M6が殻と衝突するためと著者は考えている。中和抗体のFab NORO-320では、T=3粒子が消えてT=1粒子が現れた。

原文

“Thus, it is possible that the wider T=4 shell creates steric clashes upon M6 binding, leading to T=4 particle disassembly (Fig. 4C).”Results

流行株GII.4 SydneyのT=3粒子(2.84 Å)は、2002年株で見つかっていた金属イオンの結合密度を欠く。イオンを配位する残基のうち2つ(L459Q、H460Y)が置き換わっており、pHや金属イオン、EDTAを変えても粒子径は変わらなかった。

原文

“Sequence comparison between the Sydney and HOV strains revealed mutation of two of the four ion-coordinating residues, L459Q and H460Y”Results

Lab Notes

発現系
VLPはSf9昆虫細胞でバキュロウイルス発現。M6はBL21(DE3)の周辺質から回収。
コンストラクト
GII.4 SydneyはVP1とVP2を共発現。結晶構造にはGII.3のP領域とM6を使った(GII.4 Sydneyでは良い回折が得られなかった)。
精製
VLPはショ糖クッションとCsCl密度勾配で精製。
結晶化/グリッド作製
酸化グラフェン付きQuantifoil R1.2/1.3グリッド、Vitrobotで2.5秒ブロット。抗体はVLPに4倍のモル比で混合。
データ収集・解析
Titan Krios G3+K2 Summit。cryoSPARCで解析し、対称性を展開して二量体ごとに粒子を差し引いて3D分類。

Related Articles

DNAガイドのCas12aは、DNAのヘアピンでPAM認識を真似る

ΨDNAガイドとRNA標的に結合したAsCas12aを、クライオ電顕で解析した

PaperArchitecture of a DNA-guided Cas12a

First authorRodrigo Fregoso Ocampo (University of Texas at Austin, USA)

CorrespondingPiyush K Jain (University of Florida, USA), David W Taylor (University of Texas at Austin, USA)

JournalNature Structural & Molecular Biology

Published2026.09.09

LicenseCC BY-NC-ND 4.0

構造図:AsCas12a(ΨDNAガイド)
疑問・課題
Cas12aがDNAのガイドを受け入れながらRNAを認識する仕組みは、構造として分かっていなかった。
アプローチ
AsCas12aをΨDNAガイドと40ヌクレオチドの標的RNAに結合させ、クライオ電顕で構造を決めた。
結果
ΨDNAのヘアピンは、PAM近傍の二本鎖がつく位置でPIDとWEDドメインに結合し、スペーサーはRNAとの二重鎖を作っていた。
わかったこと
ΨDNAの構造が、通常のガイドが作る空間の手がかりを再現するため、Cas12aはDNAガイドでRNAを認識できる。

Highlights

ΨDNAは3'側のヘアピンと5'側のスペーサーからなる。ヘアピンは通常のDNA標的二本鎖と同じ向きで結合し、スペーサーは標的鎖と同じ向きに置かれる。5'側にヘアピンをもつガイドの活性が低いことも、この配置で説明できる。

原文

“This structure explains our recent findings that show that a 5′ handle is much less active than a 3′ handle”Structure of DNA-guided AsCas12a

PAM類似部位の配列を変えても活性は残る。プリンに富むAGATに置き換えると活性は約3分の1に下がるが、なお切断活性を示した。TTTAなどの本来のPAMに似た配列では切断の速度が上がる。配列の設計で活性を調節できる可能性がある。

原文

“performing a time-course assay revealed that Cas12a achieves significantly faster rates of trans-cleavage when a TTTA PAM-analogous hairpin is used, followed by TTTG and TTTC.”A canonical PAM-containing ΨDNA enhances target recognition

標的鎖に相当するDNAの全長(NTS)がないため、RuvC lidとNucローブは構造として見えなかった。これらの安定化には、追い出されたNTSとの相互作用が必要らしい。活性部位は露出していたが、lidは切断に必要なαヘリックスの形をとっていなかった。

原文

“This observation indicates that stabilization of these domains depends on interactions with the displaced NTS.”A canonical PAM-containing ΨDNA enhances target recognition

Lab Notes

発現系
大腸菌用にコドン最適化したAsCas12aをBL21 DE3で発現(18°C、16時間)。
コンストラクト
N末端に6×His-TEVタグ(pET28)。
精製
HisTrapのNiカラム、TEVによるタグ切断、Superose 6のゲルろ過。
結晶化/グリッド作製
10 μMのAsCas12aをΨDNAと1:1で37°C・30分、続いて標的RNAを加えて30分。Quantifoil 1.2/1.3 ultrathin 400メッシュのカーボングリッドにVitrobotで作製。
データ収集・解析
Titan Krios+K3。cryoSPARCで解析し、初期モデルに8SFOを使用。

共折りたたみAIは、Mac1に結合する薬の形を半数以上当てる

未公開のMac1–リガンド結晶構造551個で、AF3・Boltz-2・Chai-1を評価した

PaperLarge-scale prospective evaluation of co-folding across hundreds of Mac1–ligand complexes and three virtual screens

First authorJongbin Kim (University of California, San Francisco, United States)

CorrespondingBrian K Shoichet, James S Fraser (University of California, San Francisco, United States)

JournaleLife

Published2026.10.12

LicenseCC BY 4.0

構造図:SARS-CoV-2 NSP3 マクロドメイン(Mac1)
疑問・課題
共折りたたみ法の評価は、訓練データとの独立性が確かめにくく、テスト用の構造数も足りなかった。
アプローチ
訓練の締め切り日より後にX線で決めた551個のMac1–リガンド構造を使い、3つの共折りたたみ法とDOCK3.7を比べた。
結果
3つの共折りたたみ法はいずれも半数超のリガンドを2 Å未満の誤差で再現した。ペプチドの反転や大きなループの開きは再現できなかった。
わかったこと
共折りたたみは既知リガンドの配置と序列付けに強い。ドッキングの候補選別では、ドッキングより優れるとは言えなかった。

Highlights

論文は、約1 Åの分解能でX線構造を決めたMac1–リガンド複合体のうち、未公開だった551個を評価用に用意した。AF3とChai-1は約70%、Boltz-2は53%、DOCK3.7は40%のリガンドを2 Å未満の誤差で再現した。

原文

“Using the field standard, 2 Å cutoff for correct predictions, AF3 and Chai-1 predicted roughly 70% of the ligands correctly.”Results

実験で見られたペプチド主鎖の反転(twisted)の19例のうちAF3が当てたのは4例、約8 Åのループの開き(open)の20例では0例だった。それでもリガンドの位置は低いRMSDで当たっており、AIは詳細な物理ではなく結合の型を学んでいるらしい。

原文

“We observed that only 4/19 twisted states and 0/20 open states were correctly predicted by AF3.”Results

AmpC、σ2受容体、ドーパミンD4受容体の大規模ドッキングで実験的に調べた候補のうち、偽陽性から真のリガンドを選ぶ力は、AF3ではドッキングに及ばなかった。Boltz-2の親和性予測はドッキングと同程度だった。ただし候補はもともとドッキングで選ばれており、著者はこれがドッキングに有利に働いたと述べている。

原文

“An important caveat is that the hit lists were composed of molecules prioritized by docking in the first place, giving it an advantage on these particular sets.”Results

Lab Notes

結晶化/グリッド作製
P43結晶形のMac1結晶にリガンドを2.5〜20 mMでソーキング。
データ収集・解析
PanDDAのevent mapにリガンドをCootで構築し、phenix.refineで精密化。

光合成の光化学系Iの単量体を、温度と界面活性剤で作る

単量体の光化学系Iをクライオ電顕で高分解能に解析し、脂質や界面活性剤の配置を示した

PaperHigh-resolution structure of monomeric photosystem I from Thermosynechococcus vestitus

First authorJelena Boyka (Humboldt-Universität zu Berlin, Germany)

CorrespondingFrank Müh (Johannes Kepler University Linz, Austria), Athina Zouni (Humboldt-Universität zu Berlin, Germany), Cecilia Blikstad (Uppsala University, Sweden)

JournalPhotosynthesis Research

Published2026.10.15

LicenseCC BY 4.0

構造図:光化学系I単量体(T. vestitus)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • PsaA(反応中心)Photosystem I P700 chlorophyll a apoprotein A1
  • PsaB(反応中心)Photosystem I P700 chlorophyll a apoprotein A2
  • PsaC(Fe-S 中心)Photosystem I iron-sulfur center
  • PsaDPhotosystem I reaction center subunit II
  • PsaEPhotosystem I reaction center subunit IV
  • PsaFPhotosystem I reaction center subunit III
  • PsaIPhotosystem I reaction center subunit VIII
  • PsaJPhotosystem I reaction center subunit IX
  • PsaKPhotosystem I reaction center subunit PsaK
  • PsaMPhotosystem I reaction center subunit XII
  • 4.8K タンパク質Photosystem I 4.8K protein

Ligands

  • クロロフィル aCLAChlorophyll A
  • phylloquinonePQNPhylloquinone
  • beta-caroteneBCRBeta-Carotene
  • [4Fe-4S]SF4Iron/Sulfur Cluster
  • chlorophyll a isomerCL0Chlorophyll A Isomer
疑問・課題
光化学系Iの単量体を、活性を保ったまま大量に得る方法と、高分解能の構造が必要だった。
アプローチ
三量体を界面活性剤C12E8と高温で単量体にし、クライオ電顕で構造を決め、分光法と小角中性子散乱で調べた。
結果
PsaL以外のサブユニットが見えた。SQD分子1個と、リング状に並ぶ16個のβDMが見つかった。
わかったこと
この単量体の構造は溶液中でも保たれていた。三量体との比較から、失われた赤色クロロフィルの割り当てを著者は示唆している。

Highlights

BDMで精製した三量体を、1%のC12E8と60°Cで30分処理すると、ほぼ単量体になった。PsaLは失われるが、酸素の消費活性は三量体と同程度に高い。温度と界面活性剤だけでよい点が工夫である。

原文

“Incubating ßDM tPSI for 30 min with the addition of 1% C12E8 at 60 °C yielded almost solely mPSI.”Results

膜の周りに16個のβDMが二重層のように並ぶ構造と、PSIで新たに見つかったSQD分子が見えた。PsaLが外れた単量体では、三量体にあった2つ目のCa2+結合部位に、Mg2+が入っていた。

原文

“arranged in a bilayer structure around the peripheral hydrophobic transmembrane region of mPSI”Results

単量体ではカロテノイド6個(三量体の24%)とクロロフィルa 5個が失われていた。スペクトルの解析から、失われた赤色クロロフィルは708〜710 nm付近の吸収に寄与するものらしい。チトクロムc6を加えると、P700の近くに追加の密度が見えたが、モデルは作れなかった。

原文

“This loss corresponds to 24% of the 25 identified ß-Cars in 7FIX.”Results

Lab Notes

発現系
天然のT. vestitus BP1から三量体PSIを単離。Cyt c6は大腸菌で発現(C末端6×Hisタグ)。
精製
βDM三量体を1% C12E8・60°C・30分で単量体化し、10〜35%ショ糖密度勾配で分離。
結晶化/グリッド作製
Quantifoil R 1.2/1.3 Cuグリッド、Vitrobot Mark IV(4°C、湿度100%、30秒インキュベート、2秒ブロット)。
データ収集・解析
Titan Krios G3+K3で22,001ムービー。cryoSPARC 4.5で解析、ModelAngeloで初期モデルを作成。

Related Articles

乾いたタンパク質は、レーザーで氷を溶かすと水を取り戻して元に近づく

ソフトランディングしたβ-ガラクトシダーゼを、30 µsのレーザー融解で再水和して解析した

PaperCryo-EM sample preparation with soft-landing and laser flash melting

First authorSarah V Barrass (Ecole Polytechnique Fédérale de Lausanne (EPFL), Switzerland)

CorrespondingUlrich J Lorenz (Ecole Polytechnique Fédérale de Lausanne (EPFL), Switzerland)

JournalNature Communications

Published2026.09.15

LicenseCC BY 4.0

構造図:β-ガラクトシダーゼ・GroEL(大腸菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • β-ガラクトシダーゼBeta-galactosidase
疑問・課題
ソフトランディングでは試料が乾燥し、タンパク質が縮んだ形でしか観察できなかった。
アプローチ
着地させたタンパク質に非晶質の氷を重ね、30 µsのレーザーパルスで氷を一瞬溶かして再水和し、GroELとβ-ガラクトシダーゼを調べた。
結果
再水和した粒子は幅広い形の集団になった。一部の粒子は、天然に近い形に戻った。
わかったこと
著者は、融解の時間を延ばすなどの方法で全粒子を再水和できるとみており、ソフトランディングによる日常的な試料調製が近づくと述べている。

Highlights

ソフトランディングで着地させた粒子の上に、その場で非晶質の氷を50 nm重ね、532 nmのレーザーを30 µs当てて溶かすと、粒子が再水和して膨らむ。レーザーを切ると数マイクロ秒で再びガラス化するため、新しい形が凍結される。

原文

“The sample is then flash melted with a 30 µs laser pulse (Fig. 1E, 532 nm wavelength), allowing the proteins to rehydrate (Fig. 1F).”Results

GroELは着地すると高さが約24%、直径が約7%縮んだが、レーザー融解後はサブユニット間の水で満たされた空間が戻った。β-ガラクトシダーゼでは、天然状態に最も近い粒子だけを選ぶと3.7 Åの再構成が得られ、分子モデルの差は0.7 Åだった。

原文

“This is also reflected in the similarity of the molecular models that we have built for both structures (Supplementary Information E and Supplementary Fig. 14, root-mean-square deviation of 0.7 Å)”Results

界面への吸着が再水和を遅らせ、粒子を非対称にする可能性がある。天然に近い粒子ほど配向の偏りが小さかった。ソフトランディングでは、通常の試料に混じる二量体が見えず、四量体だけが見つかった。

原文

“While a conventional sample of β‑galactosidase contains some fraction of dimers (Supplementary Fig. 5C), only tetramers are found after soft-landing”Results

Lab Notes

発現系
GroELとβ-ガラクトシダーゼはSigma-Aldrichの市販品。
結晶化/グリッド作製
酢酸アンモニウム中でネイティブ質量分析。UltrAuFoil+2 nm非晶質炭素膜のグリッドに、110 K・2 eV/電荷で着地。
データ収集・解析
改造したJEOL 2010Fでレーザー融解(30 µs、532 nm)。

AIE蛍光色素は、タンパク質に結びつくと環の回転が止まって光る

ペプチドをつないだAIE分子とhPin1-WWドメインの複合体を、NMRの溶液構造で解析した

PaperSolution structure of a peptide-conjugated aggregation-induced-emission (AIE) fluorophore bound to a protein

First authorDaniel Seifert (University of Duisburg-Essen)

CorrespondingJens Voskuhl, Christine Beuck (University of Duisburg-Essen)

JournalRSC Chemical Biology

Published2026.10.15

LicenseCC BY 3.0

構造図:hPin1-WWドメイン+AIEペプチドF11
疑問・課題
AIE(凝集誘起発光)リガンドがタンパク質に結合した複合体の構造は、これまで報告されていなかった。
アプローチ
hPin1-WWの結合配列をつないだAIEペプチドを作り、蛍光滴定で結合を調べ、遊離状態と複合体の溶液NMR構造を決めた。
結果
遊離のF11はペプチドが芳香環の上に巻き付く。結合すると伸びて、hPin1-WWのF25などが芳香環に接触した。
わかったこと
芳香環がタンパク質表面に固定されて動きが制限されるため、結合すると蛍光が強くなる。

Highlights

遊離のF11では、ペプチドがらせん状にAIEコアの上に巻き付き、プロリン環が芳香環とCH–π相互作用をつくる。近位の環は回転できるため、単独では蛍光が弱い。結合したF11は伸びた形になるが、最初のペプチド結合はcis型のままである。

原文

“The AIE-peptide F11 is draped over the saddle-shaped top of the central hPin1-WW β-sheet and no longer in a curled-up conformation; however, the first peptide bond remains in cis conformation.”NMR solution structure of F11 bound to hPin1-WW

AIEコアはC字形のままβシートの上に載り、F25が中央に入り込んでコアと接触する。R14はカチオン–π相互作用でコアを支え、M15の側鎖は既知のhPin1-WW構造にない上向きの形で、トリアゾール環の方を向く。

原文

“Residue R14 is also involved in stabilizing the aromatic AIE-core of F11 by cation–π interactions.”NMR solution structure of F11 bound to hPin1-WW

クリック反応でペプチドをAIEコアにつなぐと、さまざまなペプチド結合タンパク質向けの直接読み出しプローブにできる。2本腕のF21–F24は蛍光の増加がF11より5〜9倍大きく、リンカーは短いほうが凝集しにくい。著者は、F11のKDが対照ペプチドより小さくならなかった点も注意している。

原文

“The fluorescence amplitude of F11 (with one peptide) upon protein binding was 5–9-fold lower compared to that of the two-armed fluorophores.”Aggregation-induced emission enhancement (AIEE) for the quantitative characterisation of protein binding via direct read-out

Lab Notes

コンストラクト
AIEコアに1本(F11)または2本(F21–F26)のペプチドをつなぐ。ペプチドはhPin1-WWの認識配列pThr-Proを含み、N末端にアジドホモアラニンをもつ。
精製
ペプチドは標準的な固相合成(FMOC法)で作り、HPLCで精製。TFAは塩化物イオンに置換。
結晶化/グリッド作製
AIEペプチドと、Cu(I)触媒のクリック反応でカップリング。
データ収集・解析
15N標識hPin1-WWにAIEペプチドを加えたNMR滴定と、蛍光滴定でKDを求めた。

Structure-Based Study2026.10.181 Article

オピオイドの効力は、Gαドメインの開きやすさに表れる

既存の構造を使い、一分子FRETでμOR–Gi複合体のAHDの動きを測った。強い作動薬ほど開きが速い

PaperLigand-dependent G protein dynamics underlying opioid efficacy

First authorJonathan C. Deutsch (University of Illinois Urbana-Champaign, USA)

CorrespondingBrian K. Kobilka, Rabindra V. Shivnaraine (Stanford University, USA)

JournalNature Structural & Molecular Biology

Published2026.10.13

LicenseCC BY-NC-ND 4.0

構造図:μOR–Gi 複合体(マウス・ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 7T2H(論文が使った既存の構造)

Proteins & Nucleic Acids

  • Gαi1(G タンパク質 α)Guanine nucleotide-binding protein G(i) subunit alpha-1
  • Gβ1(G タンパク質 β)Guanine nucleotide-binding protein G(I)/G(S)/G(T) subunit beta-1
  • Gγ2(G タンパク質 γ)Guanine nucleotide-binding protein G(I)/G(S)/G(O) subunit gamma-2
  • scFv16(抗体断片)scFv16
  • μオピオイド受容体Mu-type opioid receptor

Ligands

  • ロフェンタニルEIDLofentanil
疑問・課題
オピオイド受容体に結合した作動薬の効果が、結びついた G タンパク質にどう伝わるかは分かっていなかった。
アプローチ
既存の構造を使い、Gαi の 2 か所を蛍光標識して、一分子 FRET で α ヘリックスドメイン(AHD)の開閉を測った。
結果
効力の高い作動薬ほど AHD が開いた状態(低 FRET)にいる割合が高く、GTP 代謝回転と R2 = 0.97 で相関した。
わかったこと
受容体のリガンドは 70 Å 以上離れた結合部位から G タンパク質の形を調節し、効力を決める一因になると示唆される。
残された課題
絶対的な速度は、界面活性剤ミセルやシステイン置換、温度などの実験条件の影響を受けうると論文は述べている。

Highlights

作動薬の効力が高いほど、AHD が開いた状態(低 FRET)に留まる割合が増えた。その割合は GTP 代謝回転活性と強く相関した(R2 = 0.97)。

原文

“At μOR bound to full agonists, occupancy of the low-FRET (0.27) state increased relative to partial agonists, whereas that of the high-FRET (0.62) state decreased (Fig. 2a).”Results

強い作動薬(LFT)の複合体では、AHD が開く見かけの速さが apo の約 2.25 倍(約 0.9 s−1 と約 0.4 s−1)だった。開いた状態に留まる時間はどの作動薬でも約 1.4 秒で近かった。

原文

“Conversely, dwell times in the low-FRET state were similar (~1.4 s on average) across all ligands tested”Results

GTP に似せた GMP・PPi を加えると、AHD は短命な中間の FRET 状態を経て閉じた。論文は、ヌクレオチドとの接触が一度にではなく段階的に切れる、または形成される機構を示唆している。

原文

“Together, these findings suggest a mechanism where nucleotide contacts are broken or formed progressively rather than all at once, providing a free-energy-efficient pathway for nucleotide exchange through a transient intermediate step”Results

Lab Notes

発現系
Gαi1 は大腸菌 BL21(DE3)、μOR は Sf9 昆虫細胞のバキュロウイルス系で発現した。
コンストラクト
Gαi1 に R90C と E238C を導入した最小システイン変異体を標識に使った。
精製
μOR–Gi 複合体は M1 抗 Flag カラムで精製し、さらに Superdex 200 のゲルろ過にかけた。
結晶化/グリッド作製
LD555 と JFX673 で Gαi を標識し、複合体を M1 Fab で石英スライドに固定した。
データ収集・解析
自作のプリズム型 TIRF 顕微鏡で 19 °C、50 ms の時間分解能で撮像した。

Related Articles

Not Covered