Issue No. 13 · Monday

2026.10.19

10月18日に論文データベースへ登録された論文から

15Articles
約31分Reading time

New Structure3Structure Update11Structure-Based Study1

Today’s Structures

1 / 3
Contents
  1. Human B0AT1 (SLC6A19)–ACE2B0AT1阻害剤は、輸送体を外向きの閉じた状態に固定する
  2. AshA (Amycolatopsis keratiniphila)放線菌の酵素AshAは、ヒスチジンを2位で硫黄化する
  3. PdpC (F. tularensis subsp. novicida)野兎病菌のPdpCは、タツノオトシゴ形の新しい折りたたみをもつ
  4. FMDV O/Cathay topotype + porcine antibody pO18-29口蹄疫ウイルスは、VP3の2残基の変異で抗体を逃れる
  5. ALAS (S. cerevisiae)酵母ALASは、基質を受けて下半分ごと動く
  6. PDB 公開待ちA. baumannii F1-ATPaseε サブユニットが形を変えながら、ATP 合成酵素の中から抜け出す
  7. PDB 公開待ちEMC:Spf1 complex (S. cerevisiae)膜に入れる装置と抜き出す装置が、小胞体で向かい合って複合体を作る
  8. MtCHI-I (Medicago truncatula)カルコンイソメラーゼは、基質アナログの向きを少しずつ変える
  9. ChdC H117A (L. monocytogenes)活性部位のふたが緩むと、ChdCは酸化に弱くなる
  10. Human coagulation factor VIII (FVIII)第VIII因子は、膜に斜めに刺さって固定される
  11. A8F5 glucosidase (A. humicola, GH176)土壌細菌のGH176酵素は、コウジビオースのα-1,2結合を切る
  12. WT1 RMF peptide/HLA-A*02:01 with Q2L FabFab の VH だけで WT1 ペプチド提示を見分ける抗体を設計した
  13. PDB 公開待ちPolymorphic toxin PT9–PIM9 (bacterial)毒素は、免疫タンパク質と融合すると作れる
  14. EMDB マップのみFibroblast activation protein (FAP)結合した場で薬を切り離す、取り込み不要の運搬法
  15. 構造図なしSTV-C8 (AI-designed protein assembly)AIが設計したタンパク質で、RNA運搬体を作った

Contents

15 Articles
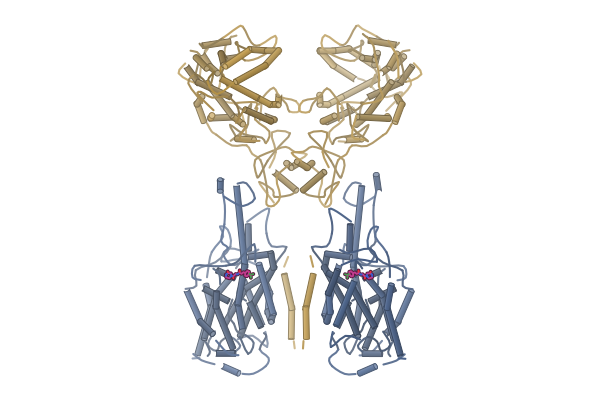
  1. 構造図:ヒトB0AT1(SLC6A19)

    Picked up·Structure Update

    Human B0AT1 (SLC6A19)–ACE2

    B0AT1阻害剤は、輸送体を外向きの閉じた状態に固定する

    クライオ電顕で設計した阻害剤が、PKUモデルマウスの血中Pheを下げた
  2. 構造図:AshA(放線菌)

    New Structure

    AshA (Amycolatopsis keratiniphila)

    放線菌の酵素AshAは、ヒスチジンを2位で硫黄化する

    1.11 Åの結晶構造で、ヒスチジンの向きが反応位置を決めると示した

  3. 構造図:PdpC(野兎病菌)

    New Structure

    PdpC (F. tularensis subsp. novicida)

    野兎病菌のPdpCは、タツノオトシゴ形の新しい折りたたみをもつ

    3.4 Åのクライオ電顕構造で5つのドメインを示し、PI(3)Pへの結合を調べた

  4. 構造図:口蹄疫ウイルス O/Cathay型

    New Structure

    FMDV O/Cathay topotype + porcine antibody pO18-29

    口蹄疫ウイルスは、VP3の2残基の変異で抗体を逃れる

    ブタ抗体pO18-29との複合体をクライオ電顕で解析し、結合の差を示した

  5. 構造図:ALAS(出芽酵母)

    Structure Update

    ALAS (S. cerevisiae)

    酵母ALASは、基質を受けて下半分ごと動く

    グリシン結合型とスクシニルCoA結合型のX線構造で、ヘム合成の最初の酵素の動きを捉えた

  6. Structure Update

    A. baumannii F1-ATPase

    ε サブユニットが形を変えながら、ATP 合成酵素の中から抜け出す

    アシネトバクターの F1-ATPase を6状態で捉え、ε の C 末端ドメインの動きを示した

  7. Structure Update

    EMC:Spf1 complex (S. cerevisiae)

    膜に入れる装置と抜き出す装置が、小胞体で向かい合って複合体を作る

    EMC と Spf1 のクライオ電顕構造で、基質の入口が膜の中で隣り合い、ATP の状態で動くことが分かった

  8. 構造図:MtCHI-I(タルウマゴヤシ)

    Structure Update

    MtCHI-I (Medicago truncatula)

    カルコンイソメラーゼは、基質アナログの向きを少しずつ変える

    フロレチン結合型の2.0 Å結晶構造で、8分子が異なる姿勢を示した

  9. 構造図:ChdC H117A(リステリア)

    Structure Update

    ChdC H117A (L. monocytogenes)

    活性部位のふたが緩むと、ChdCは酸化に弱くなる

    H117A変異体のX線構造とMD・速度論から、ふたのループが入口を守る役割を調べた

  10. 構造図:第VIII因子(ヒト)

    Structure Update

    Human coagulation factor VIII (FVIII)

    第VIII因子は、膜に斜めに刺さって固定される

    分岐脂質のナノディスクとリポソームでクライオ電顕構造を解き、C2 ドメインが主なアンカーだと示した

  11. 構造図:A8F5グルコシダーゼ(GH176)

    Structure Update

    A8F5 glucosidase (A. humicola, GH176)

    土壌細菌のGH176酵素は、コウジビオースのα-1,2結合を切る

    ループを短くして結晶化し、基質との複合体を1.79 Åで解いた

  12. 構造図:WT1 ペプチド/HLA-A*02(ヒト)

    Structure Update

    WT1 RMF peptide/HLA-A*02:01 with Q2L Fab

    Fab の VH だけで WT1 ペプチド提示を見分ける抗体を設計した

    Fab–pMHC の結晶構造から VH 単独の抗体を設計し、T 細胞エンゲージャーとして働くことを確かめた

  13. Structure Update

    Polymorphic toxin PT9–PIM9 (bacterial)

    毒素は、免疫タンパク質と融合すると作れる

    毒性が強く作れなかった3種の毒素を作製し、PT9は1.5 Åの結晶構造で折りたたみを調べた

  14. Structure Update

    Fibroblast activation protein (FAP)

    結合した場で薬を切り離す、取り込み不要の運搬法

    リンカーをFAPのTyr745の近くに置いて放出させ、FAPI部分の結合をクライオ電顕で調べた

  15. Structure-Based Study

    STV-C8 (AI-designed protein assembly)

    AIが設計したタンパク質で、RNA運搬体を作った

    設計集合体100種超を試し、STV-C8が運搬効率で既存の運搬体を上回った。構造はクライオETで大きさを確認

Picked up Today’s Structure2026.10.191 Article

B0AT1阻害剤は、輸送体を外向きの閉じた状態に固定する

クライオ電顕で設計した阻害剤が、PKUモデルマウスの血中Pheを下げた
PaperStructure-guided development of a potent human B0AT1 inhibitor effective in a mouse model of phenylketonuria

First authorTakuya Imazu (Mitsubishi Tanabe Pharma Co, Ltd, Japan)

CorrespondingTakuya Imazu, Ikuko Miyaguchi (Mitsubishi Tanabe Pharma Co, Ltd, Japan), Osamu Nureki (The University of Tokyo, Japan)

JournalCommunications Biology

Published2026.06.25

LicenseCC BY 4.0

構造図:ヒトB0AT1(SLC6A19)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • B0AT1(アミノ酸輸送体)Sodium-dependent neutral amino acid transporter B(0)AT1
  • ACE2(相手タンパク質)Angiotensin-converting enzyme 2

Ligands

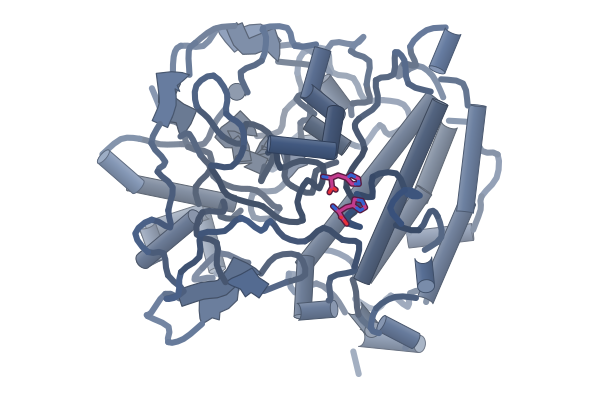
  • 化合物3A1L6W(~{E})-~{N}-[2-oxidanylidene-2-(3-oxidanylidenepiperazin-1-yl)ethyl]-3-[4-(trifluoromethyl)phenyl]prop-2-enamide
疑問・課題
フェニルケトン尿症(PKU)では血中のPheが高くなる。B0AT1の阻害で下げられるが、アロステリック阻害剤の効き方と最適化の構造的な根拠は不十分だった。
アプローチ
B0AT1の外向き・内向きのクライオ電顕構造と、阻害剤3種との複合体を解き、構造をもとに化合物を改良した。最適化した化合物はPKUモデルマウスに経口投与した。
結果
化合物3は、ヒトB0AT1に対してIC50 513 nM、マウスに対して295 nMだった。投与4時間後、尿中のPhe排泄が増え、血漿のPheが下がった。
わかったこと
阻害剤は外向き開口型にだけ現れる、基質部位から約17 Å離れたポケットに結合し、輸送体を外向き閉塞型に固定して輸送を止めると考えられる。
残された課題
マウスでPheが下がったのが腸での吸収と腎での再吸収のどちらによるのかは、この実験では区別できない。

Highlights

シンロミド(化合物1)はヒトB0AT1を阻害したがマウスにはほとんど効かず、動物試験ができなかった。ベンゼン環にCF₃基を加えるなどした化合物2を経て、ピペラジノン基を足した化合物3は、ヒトとマウスの両方にサブマイクロモルで効いた。

原文

“To this end, we replaced the dimethylamino group of compound 2 with a piperazinone moiety.”Results

阻害剤は細胞外側のアロステリック部位に結合する。化合物1はLeu52を基質部位側に倒し、水分子を介した相互作用を作った。化合物2と3はTrp56の主鎖と水素結合し、Leu52はapoに近い向きに戻った。

原文

“As a result, the Leu52 side chain reverted to its apo-like conformation, occluding the canonical substrate-binding site”Results

化合物3はPheの取り込みに対して競合阻害を示したが、結合部位は基質部位とは別の場所にある。Na⁺が多い条件で結合量が増え、Na⁺が外向き構造を安定化して阻害剤を結合しやすくしていると著者は考えている。

原文

“Compound 3 increased the Km for d5-Phe without affecting Vmax, indicating competitive inhibition”Results

Lab Notes

発現系
野生型は FreeStyle 293-F 細胞で B0AT1 と ACE2 を一過性に共発現した。
コンストラクト
野生型は不安定なため ACE2 と共発現し、内向き構造用には安定化変異体(sB0AT1)と Fab#54 を使った。
精製
FLAG と Strep のアフィニティー精製後、Superose 6 のゲルろ過で精製した。
結晶化/グリッド作製
精製した B0AT1-ACE2 を化合物(0.5 mM)と氷上で1時間混ぜてグリッドを作った。
データ収集・解析
Titan Krios G3i(300 kV、K3 検出器)で撮影し、対称性展開と局所分類で単量体の分解能を上げた。

Related Articles

New Structure2026.10.193 Articles

放線菌の酵素AshAは、ヒスチジンを2位で硫黄化する

1.11 Åの結晶構造で、ヒスチジンの向きが反応位置を決めると示した

PaperWidespread Biosynthesis of Thiohistidine Dipeptides in Bacteria

First authorMarissa L. Abbott (Princeton University, United States)

CorrespondingMohammad R. Seyedsayamdost (Princeton University, United States)

JournalJournal of the American Chemical Society

Published2026.10.01

LicenseCC BY 4.0

構造図:AshA(放線菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • AshA(硫黄化酵素)Sulfoxide synthase AshA

Ligands

  • ヒスチジンHISHistidine
疑問・課題
チオヒスチジン類の化学的な広がりや、他の生合成酵素との組み合わせは、ほとんど分かっていなかった。
アプローチ
NHISS酵素の周辺遺伝子を探索し、ATP-grasp酵素との組を再構成した。AshAはX線結晶構造解析も行った。
結果
2-チオヒスチジンを含む2種類のジペプチドを見つけた。AshAはヒスチジンをイミダゾール2位で硫黄化した。
わかったこと
AshAの活性部位はヒスチジンの向きを変え、2位の炭素を触媒Tyrに向ける。2-チオヒスチジンは遺伝子にコードされた部品として使われる。

Highlights

AshAの活性部位では、ヒスチジンの骨格が回った向きで結合し、イミダゾールの2位の炭素が触媒Tyr(Y493)の側に来る。この向きは水素結合のネットワークで保たれ、OvoAの5位での反応と異なる位置選択性を説明する。

原文

“In contrast to the NHISS enzymes OvoA and OvsA, which catalyze C–S/Se bond formation at the 5-carbon of histidine, the active site of AshA reorients histidine such that the imidazole 2-carbon is positioned toward the catalytic Tyr residue”X-ray Crystal Structure of AshA

カルボキシ基に結合するR120とT231が2位での反応に役立つらしいが、OvoAにも同じ残基があるため、これだけでは十分でない。他の構造要素も位置選択性に関わると考えられる。

原文

“these comparisons suggest that while these carboxylate-binding contacts may be necessary to enable the reaction at the 2-carbon, they are not sufficient on their own”X-ray Crystal Structure of AshA

ATP-grasp酵素AshBは、2-チオヒスチジンをC末端側に持つジペプチド(Phe–2-チオヒスチジン、actinothioneine)を作る。近縁のTgiBはGluを選び、thioglutineを作る。thioglutineは放線菌の培養から単離された。

原文

“thus establishing thioglutine as a novel Glu–2-thiohistidine dipeptide natural product and the first modified TSI isolated from the original microbial host.”Thioglutine, a Thiohistidine Natural Product Isolated from a Streptomycete

Lab Notes

発現系
組換え酵素を精製して試験管内で再構成した。AshABを大腸菌で過剰発現するとactinothioneineができた。
コンストラクト
C末端のメチルトランスフェラーゼ領域は電子密度がなく、短くなった酵素が結晶化したと考えられる。
精製
NHISSの一部はN末端Hisタグ付きで発現し、IMACで精製した。
結晶化/グリッド作製
チオール産物はモノブロモビマン(mBBr)で誘導体化してHR-MSで検出した。

野兎病菌のPdpCは、タツノオトシゴ形の新しい折りたたみをもつ

3.4 Åのクライオ電顕構造で5つのドメインを示し、PI(3)Pへの結合を調べた

PaperStructure and potential role of T6SS effector PdpC in Francisella tularensis intracellular lifestyle

First authorXiaoyu Liu (Central China Normal University)

CorrespondingMarcus A. Horwitz, Z. Hong Zhou (University of California, Los Angeles (UCLA), USA)

JournalCommunications Biology

Published2026.06.25

LicenseCC BY 4.0

構造図:PdpC(野兎病菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • PdpC(T6SSエフェクター)T6SS effector protein PdpC
疑問・課題
野兎病菌のT6SSエフェクターが、細胞内での増殖をどう助けるのかは、よく分かっていなかった。
アプローチ
PdpCをクライオ電顕で解析した。宿主のリン脂質への結合と、別のFPIタンパク質PdpEとの相互作用も調べた。
結果
3.4 Åの構造は、5つのドメインからなるタツノオトシゴ形だった。PdpCはPI(3)Pなど一部のリン脂質に選択的に結合した。
わかったこと
中央の本体ドメイン(CBD)だけでPI(3)PとPdpEの両方に結合できる。PdpCが初期ファゴソームの膜に運ばれる仕組みの手がかりになると著者は考えている。
残された課題
N末端ドメインは凝集しやすく調べられず、構造の約200残基の「口」ドメインも見えていない。

Highlights

PdpCは長さ約120 Å、幅約80 Åの単量体で、N末端のIg様β サンドイッチ、α ヘリックスだけでできた中央の本体ドメイン、「口」ドメイン、くさびドメイン、C末端の尾部からなる。DALIで相同な構造は見つからず、AlphaFoldの予測も実測と大きく違っていた。

原文

“The 3.4 Å cryoEM structure reveals a highly elongated, seahorse-shaped monomer with a completely novel fold—no structural homologs were identified by DALI, and AlphaFold predictions failed to anticipate the observed architecture.”Discussion

PdpCはPI(3)P、PI(3,5)P2、スルファチド、カルジオリピンに強く結合した。PI(3)Pは初期ファゴソームの細胞質側にある脂質で、PdpCをファゴソームの膜につなぎ留めるのに役立つ可能性がある。

原文

“the selective binding of PdpC to PI(3)P may serve to anchor PdpC to the Francisella phagosome, thereby exerting its (still unknown) enzymatic or disruptive actions locally rather than diffusely throughout the cell”Discussion

大腸菌ではなく野兎病菌(F. novicida)で作ったPdpCは、金属結合タンパク質FPM13が混ざり、ドーナツ形の粒子しか見えなかった。FPM13を欠く株で発現し、グラフェンオキシド膜のグリッドを使うと撮影できた。

原文

“Ultimately, graphene oxide (GO)-coated grids enabled cryoEM imaging and reconstruction of PdpC reported in this study.”CryoEM reveals a seahorse-shaped architecture of PdpC from F. novicida

Lab Notes

発現系
His6-FLAGタグ付きPdpCをΔFPM13株のF. novicidaで発現し、T6SSを誘導するため5% KClを加えた。
コンストラクト
全長PdpC(1325残基)。部分構築物のCBD-ALFAは可溶だったが、N末端ドメインは凝集した。
精製
ニッケル樹脂とサイズ排除クロマトグラフィーで精製した(約150 kDa)。
結晶化/グリッド作製
通常のグリッドでは粒子が見えず、グラフェンオキシド膜のグリッドを使った。
データ収集・解析
粒子の配向の偏りとS/N比の低さのため、spIsoNetで3D再構成を改善した。

Related Articles

口蹄疫ウイルスは、VP3の2残基の変異で抗体を逃れる

ブタ抗体pO18-29との複合体をクライオ電顕で解析し、結合の差を示した

PaperStructural basis of antigenic drift in FMDV O/Cathay topotype variants revealed by porcine-derived single B-cell neutralizing antibodies

First authorFengjuan Li (Lanzhou University, China)

CorrespondingPinghua Li, Zengjun Lu, Dongsheng Lei (Lanzhou University, China) ほか 1 名

JournalPLOS Pathogens

Published2026.10.15

LicenseCC BY 4.0

構造図:口蹄疫ウイルス O/Cathay型
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • VP1(カプシド)VP1 of capsid protein
  • VP2(カプシド)VP2 of capsid protein
  • VP3(カプシド)VP3 of capsid protein
  • VP4(カプシド)VP4 of capsid protein
  • pO18-29 重鎖pO18-29 VH
  • pO18-29 軽鎖pO18-29 VL
疑問・課題
O/Cathay型の口蹄疫ウイルスが抗体を逃れて変わっていく構造的な理由は、よく分かっていなかった。
アプローチ
ブタ由来の中和抗体7種で抗原領域を調べ、pO18-29のscFvと古い株・新しい変異株のカプシドの複合体をクライオ電顕で解析した。
結果
2.24 Åと2.34 Åの再構成で、抗体の結合面は似ていた。VP3の73番と134番の残基の相互作用が、新しい株で弱まっていた。
わかったこと
V73KとK134Tの置換が、疎水性の接触と水素結合・塩橋の網を乱し、中和からの逃避を起こすと論文は結論している。

Highlights

古い株(O/HN/CHA/93)では、VP3のV73が抗体のHCDR3ループと深い疎水性の接触を作り、K134は水素結合と塩橋を作る。新しい変異株(O/18074)ではV73KでV73の接触が消え、K134Tで塩橋が作れなくなる。

原文

“VP3 residue K134 in O/HN/CHA/93 formed both hydrogen bonds and salt bridges with pO18-29”Cryo-EM complex structures of virus-antibody revealed novel antigenic regions on VP3

抗体が結合するウイルス表面の領域(フットプリント)は、2つの株でほぼ同じだった。逃避は結合面の大きな変化ではなく、疎水性と静電的な相互作用の細かな組み替えで起こる。

原文

“neutralization escape in the O/18074 variant is driven by subtle remodeling of hydrophobic and electrostatic interactions, leading to reduced interfacial stability without altering the overall antigenic footprint.”Cryo-EM complex structures of virus-antibody revealed novel antigenic regions on VP3

VP1のRGDモチーフの2つ後ろの残基(149番、Q→H)の変化は、3種の抗体とワクチン接種血清による中和に影響した。このVP1の149番とVP3の73・134番は、ワクチン株の更新を考えるときの監視の目印になると著者は述べている。

原文

“the identification of VP1 residue 149 (RGD + 2) and VP3 residues 73 and 134 as critical determinants of neutralization escape provides clear targets for monitoring antigenic drift in the field”Discussion

Lab Notes

発現系
抗体の重鎖・軽鎖遺伝子を合成し、CHO-S細胞に共導入して発現した。
コンストラクト
pO18-29はscFvとして使った。
精製
精製したウイルス粒子を使った。
結晶化/グリッド作製
ウイルス粒子とscFvをモル比1:240で混ぜ、Quantifoilグリッドに塗布してVitrobot Mark IVで凍結した。
データ収集・解析
Titan Krios G3i(300 kV)とK3検出器で撮影し、cryoSPARCで再構成した。

Related Articles

Structure Update2026.10.1910 Articles

酵母ALASは、基質を受けて下半分ごと動く

グリシン結合型とスクシニルCoA結合型のX線構造で、ヘム合成の最初の酵素の動きを捉えた

PaperSubstrate-bound structures of yeast ALA synthase reveal protein dynamics initiating heme biosynthesis

First authorJenny U. Tran (Vanderbilt University School of Medicine, USA)

CorrespondingBreann L. Brown (Vanderbilt University School of Medicine, USA)

JournalScience Advances

Published2026.10.16

LicenseCC BY-NC 4.0

構造図:ALAS(出芽酵母)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • scALAS(ALA合成酵素)5-aminolevulinate synthase, mitochondrial

Ligands

  • ピリドキシル-グリシンPLGN-Glycine-[3-Hydroxy-2-Methyl-5-Phosphonooxymethyl-Pyridin-4-Yl-Methane]
疑問・課題
ヘム合成の最初の酵素ALASは、真核生物に特有の領域を持つが、基質と結合した状態の構造は細菌のものしか分かっていなかった。
アプローチ
酵母ALASをグリシンまたはスクシニルCoAと共結晶化してX線構造を決め、MD、変異体の酵素測定、酵母株の代謝測定を組み合わせた。
結果
グリシン結合型では下半分が上半分に対して剛体のように動き、スクシニルCoA結合型では蝶番の部分が秩序化した。
わかったこと
蝶番を介した下半分の動きが触媒の開始に関わり、活性の調節に使われている。活性の入口にあるGateの配列を替えると、酵素の活性が増減した。
残された課題
酵母のヘム合成で、ALAを増やしてもプロトポルフィリンIXが比例して増えない理由には、さらなる検討が要る。

Highlights

グリシンが結合した酵素の6分子では、下半分が上半分に対して剛体のように動く度合いが分子ごとに違っていた。2つの半分をつなぐC末端側の蝶番(Ct-ext Hinge)が乱れていて、これが下半分の動きを可能にしている。スクシニルCoAが結合すると蝶番は秩序化し、動きが安定した。

原文

“This distinct disorder-to-order transition enables the Ct-ext to bridge the two ALAS lobes and act as a hinge controlling lower lobe movement.”RESULTS

スクシニルCoAは細菌の酵素とは違う向きで活性部位に入り、Gate頂点の保存されたスレオニン(T452)ではなくP451の主鎖と水素結合していた。この違いのため、Gateと保存されたN末端のヘリックスとの相互作用が失われている。

原文

“Instead, in the scALAS-sCoA structure, there is a hydrogen bond between the main chain of P451 and the sCoA pantetheine moiety.”RESULTS

Gateを細菌型にした変異体はALAの放出が約2倍になり、ヒト型にした変異体は活性が下がった。酵母に組み込むと、細胞内のALA産生も同じ傾向を示した。一方、ヘムの量は変わらず、フェロケラターゼが全体の律速段階だと著者は結論している。

原文

“However, by strategically targeting the scALAS Gate, we found that ferrochelatase is the ultimate bottleneck in heme biosynthesis in yeast.”DISCUSSION

Lab Notes

コンストラクト
残基58〜548(ミトコンドリア移行配列を除く)を結晶化に使った。
結晶化/グリッド作製
酵素を基質(グリシン50 mMまたはスクシニルCoA 1 mM)と1時間混ぜてから、ハンギングドロップ蒸気拡散法で結晶化した。
データ収集・解析
NSLS-II の AMX ビームラインで回折データを集め、5TXR を探索モデルに分子置換で解いた。

Related Articles

ε サブユニットが形を変えながら、ATP 合成酵素の中から抜け出す

アシネトバクターの F1-ATPase を6状態で捉え、ε の C 末端ドメインの動きを示した

PaperStructural Snapshots of F1 ‐ATPase Catalysis in Drug Resistant Acinetobacter baumannii Reveal Novel Therapeutic Targets

First authorKhoa C M Le (Nanyang Technological University, Republic of Singapore)

CorrespondingGerhard Grüber (Nanyang Technological University, Republic of Singapore)

JournalThe FASEB Journal

Published2026.10.17

LicenseCC BY-NC-ND 4.0

構造図:AbF1-ATPase(A. baumannii)
疑問・課題
ATP 合成と加水分解を切り替える ε サブユニットの C 末端が、どう動くのかは未解決だった。
アプローチ
F1-ATPase に ADP とリン酸を加えてクライオ電顕で解析し、標的 MD シミュレーションで補った。
結果
ε の C 末端ドメインの形が異なる 6 状態を 2.88〜3.13 Å で得た。
わかったこと
α3β3 の触媒部位と中心軸の動きに合わせ、ε の C 末端が伸びた形から折りたたまれた形へ移ると考えられる。
残された課題
ε が伸びた形に戻る条件については、議論が続いている。

Highlights

ε の C 末端ドメインは、長い 1 本のヘリックスから 3 本、さらに 2 本の短いヘリックスへと形を変え、触媒部位の外へ出ていく。この途中の状態が初めて野生型の酵素で見えた。

原文

“Comparison of the AbF1‐ATPase states C1 and C2a reveals the transition from an extended α‐helix (ε91–125) into three smaller helices formed by residues ε91–98, ε102–108 and ε120–131”Results

ADP とリン酸を加えると、触媒部位の β サブユニットが 24° 外へ振れ、ε との相互作用が切れる。これが ε の動きの引き金になると考えられる。

原文

“the C‐terminus of β DP of conformer C1b, including the critical 377DIIAILGMDE386‐loop (homologous to the E. coli DELSEED motif) that contributes to the angular velocity of rotary subunit γ [31, 32], swings outwards by 24°”Results

ε の C 末端ヘリックスが γ から順に外れる段階があり、著者はここを分子糊で固定すれば ATP 合成を妨げられると提案している。A. baumannii の γ–ε の配列はヒトと大きく異なるという。

原文

“By anchoring both εCTD helices to γ's Rossman‐fold via a molecular glue as observed in CELMoD, a class of molecular glues [49], the critical transition step for ATP synthesis would be blocked.”Discussion

Lab Notes

発現系
野生型 AbF1-ATPase を先行研究と同じ方法で精製。
結晶化/グリッド作製
1.5 mg/mL の酵素を 12 μM ADP、24 μM MgCl2、24 μM KH2PO4 と混ぜ、Vitrobot Mark IV で急速凍結。
データ収集・解析
300 kV Titan、K3 検出器で 5093 ムービーを取得し、cryoSPARC で処理。

膜に入れる装置と抜き出す装置が、小胞体で向かい合って複合体を作る

EMC と Spf1 のクライオ電顕構造で、基質の入口が膜の中で隣り合い、ATP の状態で動くことが分かった

PaperStructural basis of an endoplasmic reticulum EMC:Spf1 insertase–dislocase complex

First authorCarolin J. Klose (Technical University of Munich, Germany)

CorrespondingCarolin J. Klose, Brenda A. Schulman, Matthias J. Feige (Technical University of Munich, Germany)

JournalNature Structural & Molecular Biology

Published2026.10.13

LicenseCC BY 4.0

構造図:EMC:Spf1 複合体(出芽酵母)
疑問・課題
膜タンパク質を膜へ入れる装置と、誤って入ったものを抜く装置が、小胞体でどう連携するかは分かっていなかった。
アプローチ
酵母の EMC と Spf1 を昆虫細胞で作り、クライオ電顕で解析した。ATP 類似体を加えた状態や変異体も調べた。
結果
EMC 3.8 Å、Spf1 4.2 Å の構造を得た。EMC の挿入口と Spf1 の溝は、膜内で向かい合っていた。
わかったこと
2 つの装置は役割を保ったまま安定に会合し、Spf1 の ATP サイクルが両者の境界面と細胞質側の入口を変える。
残された課題
どの基質をどの部位で扱うかをどう調節するかは、今後の課題とされている。

Highlights

EMC の挿入口(Emc3・4・6 の親水性の溝)と Spf1 の基質結合の溝が、膜の中で互いに向き合い、漏斗状の空間を作っていた。幅は小胞体内腔側で 25 Å、細胞質側で 50 Å である。

原文

“This arrangement creates a large intramembrane space between the two proteins that resembles a funnel spanning the whole transmembrane region, with a width of 25 Å at the ER lumenal and 50 Å at the cytoplasmic sides”Results

2 つの装置は主に小胞体内腔側の「ルーメナルドック」(約 424 Å2)で接する。Emc7 と Emc10 の変異や Spf1 の E1087A で会合が弱まるが、Spf1 自身の働きは保たれた。

原文

“This ‘lumenal dock’ buries around 424 Å2 of surface area (366 Å2 with Emc10, 58 Å2 with Emc7)”Results

ATPγS を加えた状態では、Spf1 のアーム領域が EMC の細胞質側の蓋につながり、2 つの空洞への入口をふさぐ。AlF4− の状態ではアームは見えず、Spf1 は EMC の側へ約 10 Å 寄る(AlF4− の構造は 6.8 Å と低分解能)。

原文

“Comparison of the nucleotide states revealed substantial repositioning of Spf1 relative to the EMC, with the transmembrane core and cytoplasmic domains of Spf1 shifting by approximately 10 Å toward the EMC after ATP hydrolysis”Results

Lab Notes

発現系
Hi5 昆虫細胞にバキュロウイルスを共感染させ、3 日間発現。
コンストラクト
Emc5 に TwinStrep II タグ、複合体の精製に FLAG タグを使用。
精製
1.5% ジギトニンで可溶化し、StrepTactin と抗 FLAG のタンデム親和精製後、Superose 6 でサイズ排除。
結晶化/グリッド作製
ATPγS 試料は 2 mM ATPγS と氷上 30 分。AlF4− 試料は ADP、NaF、AlF3 と氷上でインキュベート。Vitrobot Mark IV で凍結。
データ収集・解析
アポ型は 300 kV・0.8222 Å/pixel で撮影。内在性 EMC は Glacios 200 kV。

Related Articles

カルコンイソメラーゼは、基質アナログの向きを少しずつ変える

フロレチン結合型の2.0 Å結晶構造で、8分子が異なる姿勢を示した

PaperSnapshots From the Catalytic Landscape of Chalcone Isomerase

First authorJason R. Burke (California State University San Bernardino, USA)

Corresponding筆頭著者と同じ

JournalPlant Direct

Published2026.10.16

LicenseCC BY-NC-ND 4.0

構造図:MtCHI-I(タルウマゴヤシ)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • CHI(カルコンイソメラーゼ)Chalcone-flavonone isomerase family protein

Ligands

  • フロレチンG503-(4-Hydroxyphenyl)-1-(2,4,6-Trihydroxyphenyl)Propan-1-One
疑問・課題
カルコンイソメラーゼ(CHI)が、環化に必要な基質の形の組み替えを酵素の動きで助けているのか、実験的な証拠が足りなかった。
アプローチ
環化できない基質アナログのフロレチンをCHIの結晶に浸し、2.0 Åで構造を解いた。結合と阻害は熱シフト測定と酵素速度論で調べた。
結果
非対称単位の8分子で活性部位の形が少しずつ違い、フロレチンも8通りの姿勢を取った。フロレチンは競合阻害剤として働いた。
わかったこと
8つの姿勢は、基質が環化直前の形へ近づく過程を表すと著者は解釈している。CHIは動的な構造の集まりとして働くという考えを支持する。
残された課題
先行モデルはタイプ2のCHIに基づくが、この研究が調べたのはタイプ1だけで、結果をそのままタイプ2に当てはめられない。

Highlights

環化する原子どうし(フロレチンの2′Oと C3)の距離は、最も伸びた姿勢で3.98 Å、環化に最も近い姿勢で3.09 Åだった。触媒に働くアルギニンR37が水素結合でフロレチンの位置を決め、距離が縮むのを助けているように見える。

原文

“In the pose called “mol. D,” the phloretin (Ph)2′O‐(Ph)C3 interatomic distance is 3.98 Å, revealing a relatively extended conformation (Figure 4A).”Results

結晶構造で見えた水素結合を、変異体の熱シフト測定で確かめた。T49A・R37K・S193Aでは結合が弱まり、Y107Fは野生型とほぼ同じだった。フロレチンの阻害定数Kiは32 μMで、熱シフトから求めたKdとよく合った。

原文

“From the enzyme inhibition experiments, the inhibitory constant, Ki value, averaged from the three inhibitor concentrations, is calculated to be 32 ± 4 μM.”Results

Lab Notes

発現系
大腸菌 BL21 DE3-pRIL で発現し、20°C で一晩誘導した。
コンストラクト
pET-21b にタルウマゴヤシの MtCHI-I(UniProt B7FJK3)を入れた。
精製
Ni 親和性、陰イオン交換、ゲルろ過で精製した。
結晶化/グリッド作製
アポ型の結晶を、20 mM フロレチンを含む溶液に1週間浸した。
データ収集・解析
ALS のビームライン 8.2.1・8.2.2 で 100 K で回折データを集め、4DOI を探索モデルに分子置換で解いた。

活性部位のふたが緩むと、ChdCは酸化に弱くなる

H117A変異体のX線構造とMD・速度論から、ふたのループが入口を守る役割を調べた

PaperUnraveling the active site cover of coproheme decarboxylase from Listeria monocytogenes

First authorNikolaus Falb (BOKU University, Austria)

CorrespondingStefan Hofbauer (BOKU University, Austria)

JournalThe Febs Journal

Published2026.05.06

LicenseCC BY 4.0

構造図:ChdC H117A(リステリア)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • ChdC(コプロヘム脱炭酸酵素)Coproheme decarboxylase

Ligands

  • コプロヘムFEC1,3,5,8-Tetramethyl-Porphine-2,4,6,7-Tetrapropionic Acid Ferrous Complex
疑問・課題
コプロヘム脱炭酸酵素(ChdC)の活性部位は柔軟なループでおおわれているが、その生理的な役割は十分に調べられていなかった。
アプローチ
リステリア菌ChdCのループにあるH117をアラニンに替え、MD、CD、速度論、シアン化物の結合測定、X線結晶構造解析で調べた。
結果
変異体ではループの揺らぎが増え、コプロヘムとシアン化物が速く結合した。一方、過酸化水素にはより傷つきやすく、色素の退色が目立った。
わかったこと
H117は隣のS116との水素結合でループを安定させ、補基質の過酸化水素が酸化の標的に届くのを調節していると考えられる。

Highlights

野生型の結晶構造では、S116の水酸基がH117の側鎖に向いて極性接触を作っている。H117Aではこの相手がなくなり、S116の向きが変わっていた。MDでもこの水素結合が93%の頻度で見られた。

原文

“the same hydrogen bond occurs with a frequency of 93.31%”Results

コプロヘムの結合は、野生型では中間状態を経る二段階だが、H117Aでは中間状態のない一段階になった。シアン化物の結合も変異体のほうが速く、単一の指数関数で表せた。ループが緩むと入口が広がることを示す。

原文

“In contrast in the H117A variant, no spectral signatures indicative of an intermediate state are present.”Results

ChdCはグラム陽性菌に固有の酵素で、将来の抗菌薬の標的になりうると著者は述べる。ふたのループが入口を守る仕組みは、阻害剤の設計でも考慮すべき点になりうる。

原文

“ChdC is a valuable target for enzymatic research, as it is unique to Gram‐positive bacteria, a group containing a plethora of pathogenic organisms and might prove to be a suitable target for future antibiotics [6].”Introduction

Lab Notes

発現系
大腸菌 BL21 Gold で発現し、0.1 mM IPTG で 18°C 一晩誘導した。
コンストラクト
LmChdC を His タグと HRV3C 切断部位つきの pETM11 に入れ、H117A は部位特異的変異で作った。
精製
HisTrap で捕捉してプロテアーゼで切り、コプロヘムを加えてゲルろ過で精製した。
結晶化/グリッド作製
シアン化物を 1 mM 加えた状態で、シッティングドロップ蒸気拡散法により結晶化した。
データ収集・解析
ESRF の ID30A3(MASSIF-3)でデータを集め、AlphaFold の予測モデルを使って分子置換で解いた。

第VIII因子は、膜に斜めに刺さって固定される

分岐脂質のナノディスクとリポソームでクライオ電顕構造を解き、C2 ドメインが主なアンカーだと示した

PaperStructural determination of lipid-bound factor VIII

First authorBassem M Mohammed (Saint Louis University School of Medicine, USA)

Corresponding筆頭著者と同じ

JournalJournal of thrombosis and haemostasis : JTH

Published2026.05.26

LicenseCC BY 4.0

構造図:第VIII因子(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • 第VIII因子(凝固因子)Coagulation factor VIII
疑問・課題
凝固因子 FVIII が膜とどう結合するかは、構造の面で分かっていない部分だった。
アプローチ
メチル化した分岐脂質でナノディスクとリポソームを作り、全長 FVIII をクライオ電顕で解析した。
結果
膜上の FVIII を 3.46 Å(ナノディスク)と 3.56 Å(リポソーム)で得た。C ドメインが斜めに浅く挿入していた。
わかったこと
C2 ドメインが主なアンカー、C1 が補助の係留として働く。この配置が C2 変異の重症度を説明するという。

Highlights

分岐したメチル基をもつ脂質(DPhPC・DPhPS)は、脂質の詰まりを乱して疎水性の隙間を作る。曲がった膜に似た環境がナノディスク上にでき、FVIII の挿入を高分解能で捉えられた。

原文

“Methylated branched lipids enable rapid, high-resolution characterization of membrane-associated clotting factors.”Abstract

C2 の疎水性スパイク(Met2199/Phe2200 と Leu2251/Leu2252)が 3〜4 Å だけ膜に差し込まれ、C1 の Lys2092/Phe2093 が補助する。C2 スパイクの変異は重症に、C1 側の変異は中程度になりやすいと説明される。

原文

“The structures reveal the FVIII-C2 domain as the primary membrane anchor with 2 prominent hydrophobic spikes: Met2199/Phe2200 and Leu2251/Leu2252, mediating a shallow interfacial insertion (3–4 Å) toward the hydrophobic core of the membrane.”Results and Discussion

斜めの向きは、プロトロンビナーゼ複合体の FVa と重なる。著者は、この非対称な配置が FIXa や FX を迎える足場になると考えている。

原文

“Alignment of our lipid-bound FVIII model with the membrane-binding C domains of FVa from the only reported membrane-bound prothrombinase complex (PDB 9CTH) [28] reveals a striking spatial overlap.”Results and Discussion

Lab Notes

発現系
市販の全長組換えヒト FVIII(Kogenate FS)を使用。
精製
サイズ排除クロマトグラフィー(Superdex 200 increase)でバッファー交換。
結晶化/グリッド作製
DPhPC:DPhPS = 80:20 のナノディスク(MSP1D1)に FVIII を混ぜ、Vitrobot Mark IV で凍結。
データ収集・解析
Glacios 200 keV で撮影し、cryoSPARC v5.0.1 で解析。

Related Articles

土壌細菌のGH176酵素は、コウジビオースのα-1,2結合を切る

ループを短くして結晶化し、基質との複合体を1.79 Åで解いた

PaperDiscovery and structural analysis of glycoside hydrolase family 176 α-1,2 glucosidase from Arthrobacter humicola A8F5

First authorRyota Yasukochi (The University of Tokyo, Japan)

CorrespondingHikaru Watanabe (Nagase Viita CO, LTD, Japan), Shinya Fushinobu (The University of Tokyo, Japan)

JournalThe Journal of Biological Chemistry

Published2026.09.08

LicenseCC BY 4.0

構造図:A8F5グルコシダーゼ(GH176)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • A8F5グルコシダーゼalpha-1,2-glucosidase

Ligands

  • s-1,2-propanediolPGOS-1,2-Propanediol
疑問・課題
α-1,2結合のグルコシド結合を切る酵素は少なく、GH176ファミリーもほとんど調べられていなかった。
アプローチ
土壌細菌から酵素を見つけ、柔軟なループが結晶化を妨げたため、ループを短くした変異体で複合体の結晶構造を解いた。
結果
コウジビオース、コウジトリオース、セラギノースとの複合体を1.79〜1.83 Åで決めた。基質は−1と+1のサブサイトで認識されていた。
わかったこと
GH176の酵素が、既知のコウジビオース加水分解酵素(GH65)とは別の構造の枠組みでα-1,2結合を切ることが分かった。
残された課題
コウジビオースの認識は+1サブサイトで完全には安定せず、さらなる進化的な調整が必要かもしれない。

Highlights

野生型の結晶は並進の非結晶学的対称(tNCS)が強く、複合体の結晶がうまく得られなかった。長い柔軟なループ1を短くした変異体(Δloop1)にするとtNCSが消え、基質複合体の高分解能構造が得られた。

原文

“Notably, no significant tNCS was detected in the Δloop1 crystal (maximum Patterson peak height of ∼4.8%, p = 0.95), indicating that shortening the long flexible loop effectively reduced packing degeneracy and favored a more rigidly ordered crystal lattice.”Loop deletion construct

(α/α)6バレル折りたたみをもつ酵素で、D427が触媒酸、E611が触媒塩基と推定された。D287は−1サブサイトのグルコースのC4・C6の水酸基を認識する。逆転型の加水分解機構が提案されている。

原文

“D427 and E611 in A8F5 glucosidase were suggested to be the catalytic acid and base residues, respectively”Overall structure

AlphaFold3の予測では、ループ3と4が活性部位に蓋をする。このため基質の入る穴が狭く、長いコウジペンタオースへの活性が低いことと合う。ループ3は結晶構造では見えていないため、この部分は予測に基づく。

原文

“This narrow substrate-binding pocket environment aligns well with the experimental data showing that the activity of A8F5 glucosidase toward kojipentaose is significantly lower than its activity toward shorter substrates (Fig. 1B).”Structural comparison with another GH176 enzyme

Lab Notes

発現系
大腸菌でHisタグ付きタンパク質として発現した。結晶化用にはpET28aで N末端Hisタグにした。
コンストラクト
ループ1を短くしたΔloop1変異体と、触媒酸を置換したD427N変異体を使った。
結晶化/グリッド作製
シッティングドロップ蒸気拡散法で結晶化した(リザーバー:0.1 M酢酸ナトリウム pH 5.1、34% 1,2-プロパンジオール)。

Fab の VH だけで WT1 ペプチド提示を見分ける抗体を設計した

Fab–pMHC の結晶構造から VH 単独の抗体を設計し、T 細胞エンゲージャーとして働くことを確かめた

PaperComputational Design of a TCR-like Human VH Domain Antibody That Specifically Recognizes a WT1-Derived Peptide Presented by Class I Major Histocompatibility Complex

First authorTae-Sung Oh (Therazyne, Inc, Republic of Korea)

CorrespondingBo-Seong Jeong, Byung-Ha Oh (Therazyne, Inc, Republic of Korea)

JournalComputational and Structural Biotechnology Journal

Published2026.10.15

LicenseCC BY 4.0

構造図:WT1 ペプチド/HLA-A*02(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • Q2L Fab 重鎖Q2L_Fab_heavy chain
  • Q2L Fab 軽鎖Q2L_Fab_light chain
  • HLA-A*02(MHC)HLA class I antigen
  • β2M(MHC 軽鎖)Beta-2-microglobulin
  • WT1 ペプチド(抗原)Wilms tumor protein
疑問・課題
pMHC を標的にする TCR 様抗体は、ペプチドが小さいため交差反応を避けるのが難しい。
アプローチ
Q2L Fab–RMF/HLA-A*02 の結晶構造から、トラスツズマブ由来の VH 骨格に結合部位を移して設計した。
結果
設計した VH は RMF/HLA-A*02 に 81 nM で結合し、対照の pMHC には結合しなかった。2 価型は 0.37 nM だった。
わかったこと
VH 単独でもペプチドに焦点を当てた TCR 様抗体を作れ、2 価の T 細胞エンゲージャーにもできると著者は結論している。

Highlights

Q2L Fab の結晶構造(3.03 Å)では VL が VH から離れ、VH がペプチドを広く、HLA とは 6 残基だけで触れていた。この VH だけで結合できるという着想の元になった。

原文

“First, VH extensively contacts the bound RMF peptide while making limited contacts with only 6 HLA-A*02:01 residues (Fig. 1B, bottom).”Results

HSA ドメインIII を融合すると溶液中で単量体になり、親和性は変わらなかった(76.4 → 81.4 nM)。2 価型の T 細胞エンゲージャーは、1 価型よりずっと効率よく標的細胞を殺した。

原文

“comparable KD values for αRMF_VH and HSADIII-αRMF_VH (76.4 and 81.4 nM, respectively)”Results

設計した VH と RMF/HLA-A*02 の複合体は結晶構造ではなく、Chai-1 の予測モデルで評価されている。設計の検証は結合測定と細胞実験が中心である。

原文

“The predicted αRMF_VH/RMF/HLA-A*02 model closely matched the Q2L VH/RMF/HLA-A*02 crystal structure”Results

Lab Notes

発現系
VH とその融合体は大腸菌 BL21(DE3) RIPL、Q2L-Fab は CHO-S 細胞で発現。
精製
Ni-NTA とサイズ排除クロマトグラフィー。pMHC は変性した HLA と β2M のリフォールディングで調製。
結晶化/グリッド作製
Q2L-Fab/RMF/HLA-A*02(8 mg/mL)を PEG 5000 MME、Tacsimate、Hepes を含む溶液で蒸気拡散法により結晶化。
データ収集・解析
Pohang Accelerator Laboratory のビームライン 5C で回折データを収集。

Related Articles

毒素は、免疫タンパク質と融合すると作れる

毒性が強く作れなかった3種の毒素を作製し、PT9は1.5 Åの結晶構造で折りたたみを調べた

PaperModular Platform for Recombinant Production of Highly Toxic Bacterial Proteins

First authorRina Fraenkel (The Hebrew University of Jerusalem, Israel)

CorrespondingNetanel Tzarum (The Hebrew University of Jerusalem, Israel)

JournalMicrobial Biotechnology

Published2026.10.16

LicenseCC BY 4.0

構造図:多型毒素 PT9–PIM9(細菌)
疑問・課題
毒性が強い細菌の毒素は、大腸菌などで組換え発現できず、生化学的な解析が進まなかった。
アプローチ
毒素を、自身の免疫タンパク質(毒素を中和する相手)と共有結合でつなぎ、発現中の毒性を抑えて精製した。
結果
3つの毒素ファミリーを作製できた。精製・再折りたたみした PT9 は、免疫タンパク質との複合体を1.5 Åの結晶構造で決めた。
わかったこと
PT9 の活性は不明だが、変性後も折りたたまれた構造に戻ることが構造で示された。PT7 と PT8 は核酸分解活性を保った。
残された課題
精製した毒素を細胞の外から加えたときの抗菌活性は、まだ分かっていない。

Highlights

毒素を免疫タンパク質と融合して発現し、後で切り離す。さらに細胞内でプロテアーゼに切らせ、精製を4工程から2工程に減らした。

原文

“reducing purification from four steps to two and increasing the recovered yield of PT9 from approximately 1–2 mg/L to ~4 mg/L.”Abstract

再折りたたみした PT9 は、AlphaFold の予測モデルとよく一致した(61個の Cα で RMSD 0.67 Å)。免疫タンパク質 PIM9 とも再び複合体を作った。

原文

“Refolded PT9 adopted a well‐defined structure that closely matched the AlphaFold‐predicted model (RMSD 0.67 Å over 61 Cα atoms, Figure 6D).”Results

Lab Notes

精製
固定化した毒素を、変性緩衝液を Tris 緩衝液に徐々に置き換えてカラム上で再折りたたみした。
結晶化/グリッド作製
PT9–PIM9 複合体を 7 mg/ml で、シッティングドロップ蒸気拡散法により 20°C で結晶化した。
データ収集・解析
ESRF の ID30A-3 ビームラインで 100 K の回折データを収集した。

Related Articles

結合した場で薬を切り離す、取り込み不要の運搬法

リンカーをFAPのTyr745の近くに置いて放出させ、FAPI部分の結合をクライオ電顕で調べた

PaperA binding-to-release strategy for targeted anticancer drug delivery

First authorZihao Wen (Peking University, China)

CorrespondingZhibo Liu (Peking University, China)

JournalNature

Published2026.08.26

LicenseCC BY-NC-ND 4.0

構造図:FAP(線維芽細胞活性化タンパク質)
疑問・課題
薬物複合体は細胞内への取り込みに頼って薬を放出するため、取り込まれにくい標的では効きにくかった。
アプローチ
標的に結合した場で、結合ポケット内の求核残基がリンカーを切って薬を放出する BTR 戦略を、PhoPEx 化学で作った。
結果
FAP を標的にした複合体は、取り込み依存型より腫瘍内の MMAE 曝露が5.9倍高く、複数の腫瘍モデルでほぼ完全に退縮した。
わかったこと
FAP の Tyr745 が反応の鍵となる求核残基だった。結合だけで薬を放出する枠組みが、標的の範囲を広げる可能性がある。

Highlights

Tyr745 をフェニルアラニンに置き換えると、共有結合の効率が下がり、薬の放出速度は野生型 FAP より63%低くなった。

原文

“the payload release rate decreased by 63% compared with that of wild-type FAP (Fig. 2j).”Results

クライオ電顕の密度マップでは FAPI の標的結合部分だけが見え、DOTA と MMAE は柔軟で密度がなかった。分子動力学と合わせ、反応する P 原子は Tyr745 の近くにあるとされた。

原文

“The cryo-EM density map showed electron density (blue mesh) for the FAPI targeting head bound to FAP, whereas the DOTA and MMAE moieties exhibited high flexibility and thus lacked well-defined density.”Results

Lab Notes

結晶化/グリッド作製
FAP(0.4 mg/ml)を20倍モル過剰の FAPI-oMe-MMAE と4°Cで2時間反応させ、酸化グラフェン被覆グリッドで調製した。

Related Articles

Structure-Based Study2026.10.191 Article

AIが設計したタンパク質で、RNA運搬体を作った

設計集合体100種超を試し、STV-C8が運搬効率で既存の運搬体を上回った。構造はクライオETで大きさを確認

PaperCreating bottom-up RNA transfer vehicles from synthetic protein assemblies

First authorMaren Kirstin Schuhmacher (Helmholtz Munich, Germany)

CorrespondingChristoph Gruber, Florian Giesert, Wolfgang Wurst (Helmholtz Munich, Germany)

JournalNature

Published2026.09.02

LicenseCC BY 4.0

疑問・課題
ウイルスのカプシドは似た形に収束しており、進化の枠に縛られない RNA 運搬体が作れるかが問われた。
アプローチ
AI で設計した対称な集合体と天然ドメインを組み合わせ、100 種超の RNA 運搬体(STV)を作って運搬効率を調べた。
結果
STV-C8 は RNA 運搬効率が広く使われる運搬体を桁違いに上回り、マウスで安全性を示し、ブタでも遺伝子編集に使えた。
わかったこと
生成 AI が作ったタンパク質を、天然に縛られない RNA 輸送系の部品として使えることが示された。
残された課題
現在の設計手法は動的なタンパク質や酵素活性の設計が苦手だと論文は述べている。

Highlights

天然ドメインと AI 設計の集合体を組み合わせ、100 種超の運搬体を同じ評価系で比べた。

原文

“By combining natural protein domains with synthetic protein assemblies, we create more than 100 bottom-up RNA transfer vehicles with unique sizes and shapes.”Abstract

運搬効率は広く使われる運搬体を桁違いに上回り、マウスでの分布と安全性、ブタでの遺伝子編集まで示された。

原文

“These vehicles surpass the RNA transfer efficiency of widely used delivery vehicles by several orders of magnitude.”Abstract

クライオ ET で小胞内に直径約 22 nm の集合体が見えた。原子レベルの構造は決められておらず、予測モデルと大きさが合うことを確かめた段階である。

原文

“Cryo-ET analysis revealed dozens of protein structures within these vesicles, with a typical diameter of 22 ± 1.4 nm (Extended Data Fig. 6a,b); this was consistent with the expected STV-C8 assemblies, although the precise atomic organization of the assembly could not be resolved.”Results

Lab Notes

発現系
HEK293T 細胞にプラスミドを導入し、上清の小胞を回収
精製
上清をショ糖クッションで超遠心して濃縮
結晶化/グリッド作製
小胞を 10^9 粒子/µL に希釈し、Quantifoil グリッドに載せて急速凍結
データ収集・解析
Titan Krios G4・ピクセルサイズ 1.63 Å・−60°〜60° のチルト系列

Not Covered