Contents

4 Articles
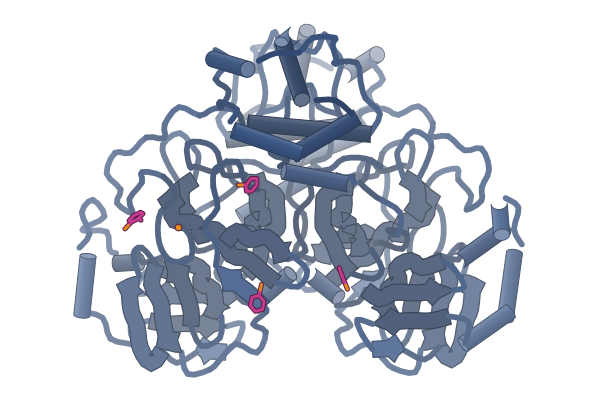
  1. 構造図:SP15型DNA合成酵素(ファージ)

    Picked up·Structure Update

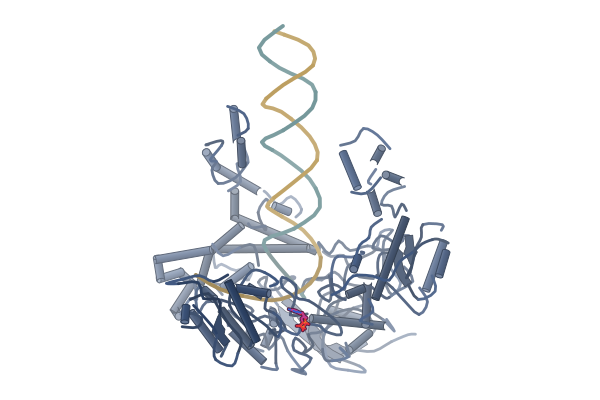
    SP15-like DNA polymerases (YerA41, phiLo phages)

    ファージのDNA合成酵素は、複製の手前でウラシルを外す

    UDGドメインを融合した2種の酵素をクライオ電顕で解析。DNAを締める2つの挿入部も見えた
  2. 構造図:ヒトKBAT(SLC26A11)

    Structure Update

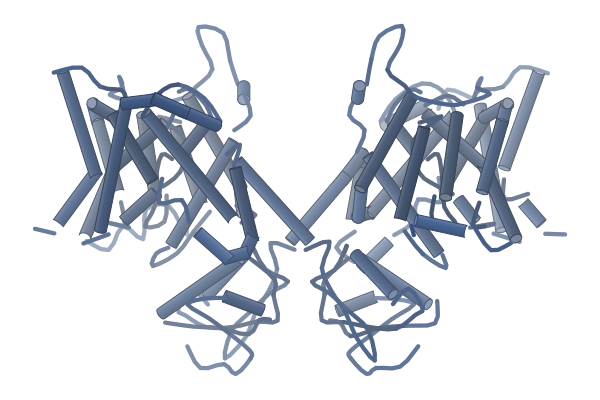
    Human KBAT (SLC26A11)

    KBATの塩化物イオン結合は、E320のプロトン化と関係する

    ヒトSLC26A11の内向き型構造をクライオ電顕で解き、MDでE320の働きとエレベーター型の輸送を調べた

  3. 構造図:プロテインキナーゼA

    Structure-Based Study

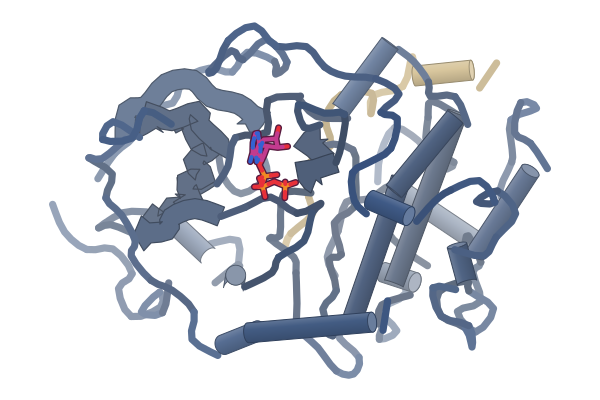
    Protein kinase A catalytic subunit (~43 kDa)

    小さなキナーゼのATP結合部位が、鋳型照合で見えた

    既知の構造を鋳型に粒子の向きを決める2DTMで、公開データから約43 kDaの酵素を再構成した

  4. 構造図:SARS-CoV-2 Mpro

    Structure-Based Study

    SARS-CoV-2 main protease (Mpro)

    エブセレンは、C300への結合でMproの二量体を不安定にする

    ペプチド模倣阻害剤は二量体を安定にする。ネイティブMSとHDX-MSで、阻害のしかたの違いを分けた

Picked up Today’s Structure2026.10.281 Article

ファージのDNA合成酵素は、複製の手前でウラシルを外す

UDGドメインを融合した2種の酵素をクライオ電顕で解析。DNAを締める2つの挿入部も見えた
PaperStructural basis for coupled DNA replication and uracil repair by a family of DNA polymerases from phages with T-modified genomes

First authorSophia Missoury (Université Paris Cité, France)

CorrespondingMarc Delarue (Université Paris Cité, France)

JournalNucleic Acids Research

Published2026.10.01

LicenseCC BY-NC 4.0

構造図:SP15型DNA合成酵素(ファージ)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • DNA合成酵素(phiLo)Putative DNA-directed DNA polymerase I
  • 鋳型DNADNA template
  • プライマーDNADNA primer

Ligands

  • ddCTPDCT2',3'-Dideoxycytidine 5'-Triphosphate
疑問・課題
ウラシルを外す酵素(UDG)を自らに融合したファージのDNA合成酵素が、複製とウラシルの除去をどう両立するかを調べた。
アプローチ
YerA41とphiLoという2つのファージの酵素を、DNAとの複合体でクライオ電顕により解析し、活性も測った。
結果
DNAを挟む2つの大きな挿入部が約30 Å離れて並んでいた。dUを含む鋳型の5′端は、UDGドメインの活性部位の近くに届いていた。
わかったこと
UDGドメインが複製部位の手前でdUを外し、できた脱塩基部位をdAを入れて通り越すことを示した。
残された課題
糖で修飾されたYerA41のDNAを基質にした実験が、まだ必要だとされている。

Highlights

dUを含む鋳型との複合体(3.6 Å)では、鋳型の5′端がUDGドメインの活性部位の入口に届き、dUの塩基が外に出て活性部位の近くに置かれた。ただし、占有率が一部のモデルである。

原文

“allowing the modeling of partially occupied dU base flipped into the active site of the UDG domain”Results

2つの挿入部がDNAを両側から挟み、複製中の酵素をDNAに固定する。位置はT7のチオレドキシンに似ており、複製の処理能力を高める可能性がある。

原文

“Their combined role is clearly to tighten the grip on the DNA”Results

dUは外されたが、5位にC6アミノ基をもつチミジンは外されなかった。この修飾チミジンは複製中に許容され、複製もされた。ファージ自身の修飾DNAは、UDGの基質にならないとみられる。

原文

“SP15-like DNAPs efficiently replicated the modified base, as demonstrated by the full-length primer extension products”Results

Lab Notes

発現系
大腸菌BL21 Star (DE3)で発現した。IPTGで誘導し、YerA41は15℃、phiLoは20℃で一晩培養した。
コンストラクト
N末端に14個のHisタグとTEV切断部位をつけた。構造解析にはエキソヌクレアーゼ活性を欠く変異体(Exo−)を使った。
精製
HisTrapで精製した後、HiTrap Heparinカラムにかけ、1 M NaClで溶出した。
結晶化/グリッド作製
YerA41のExo−酵素とDNA二本鎖を1:2で混ぜ、ゲルろ過で精製した。取り込まれるヌクレオチドを4℃で5分加えてグリッドにした。
データ収集・解析
Glacios(200 kV)で撮影し、CryoSPARCで処理した。YerA41はTitan Krios G4の追加データも使った。
Structure Update2026.10.281 Article

KBATの塩化物イオン結合は、E320のプロトン化と関係する

ヒトSLC26A11の内向き型構造をクライオ電顕で解き、MDでE320の働きとエレベーター型の輸送を調べた

PaperStructure Basis for Chloride Recognition and Transport by Human Kidney Brain Anion Transporter (KBAT)

First authorYurou Wang (Xiamen University)

CorrespondingRenhong Yan (Southern University of Science and Technology), Ximin Chi (Xiamen University)

JournalBiomolecules

Published2026.09.23

LicenseCC BY 4.0

構造図:ヒトKBAT(SLC26A11)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • KBAT(輸送体)Sodium-independent sulfate anion transporter
疑問・課題
KBAT(SLC26A11)が塩化物イオンをどう認識し、どう輸送するのか、その分子の仕組みは不明だった。
アプローチ
全長のヒトKBATをクライオ電顕で解き、分子動力学(MD)シミュレーションで結合と構造変化を調べた。
結果
内向き型の構造で、TM3とTM10の間に塩化物イオンが見えた。MDでは、E320がプロトン化するとS363との接触が67.4%から1.4%に減った。
わかったこと
E320のプロトン化が塩化物イオンを取り込むスイッチになると提案された。輸送はエレベーター型と考えられる。
残された課題
E320がプロトン化しているかどうかは、クライオ電顕の密度からは決められない。

Highlights

塩化物イオンは、S363・Q65・Y69の側鎖と、ほどけかけたTM3・TM10の主鎖のアミドで保持される。イオンの位置は、SLC26ファミリーの他の構造でも共通している。

原文

“The chloride ion is mostly coordinated by side-chains of S363, Q65, and Y69, and mainchain amide nitrogen from F364, G365, A106, and T105”Results

MDでは、E320がプロトン化すると塩化物イオンが結合部位に入り、90 ns以上とどまった。電荷をもつ状態では安定に結合しなかった。いずれもシミュレーション上の結果である。

原文

“a chloride ion from the bulk solution spontaneously entered the binding cavity within the first 5 ns and remained stably coordinated for over 90 ns”Results

AlphaFold3が予測した外向き型では、コアドメインが実験構造より細胞外側へ上がっていた。両方のMDを比べると、ゲートドメインの16残基が、コアドメインの接触相手を切り替えていた。

原文

“This analysis found that 16 Gate residues systematically switch interaction partners in the Core domain”Results

Lab Notes

発現系
全長のヒトSLC26A11を、ヒトの培養細胞(HEK細胞株)で発現した。C末端にFlagタグとStrepタグをつけた。
コンストラクト
cDNAから増幅した全長のコード配列を、pSQベクターに入れた。
精製
1.5% DDMで可溶化して抗Flag樹脂で精製し、0.01% GDN中でSuperose 6 Increaseのゲルろ過にかけた。
結晶化/グリッド作製
約12 mg/mLに濃縮し、Quantifoil Cu R1.2/1.3のグリッドに載せた。3.5秒ブロットし、Vitrobot Mark IVで凍結した。
データ収集・解析
Titan Krios G3(300 kV、K3)で撮影し、cryoSPARC 4.6.2で処理した。AlphaFold 3の予測を初期モデルにして、COOTとPHENIXで精密化した。

Related Articles

Structure-Based Study2026.10.282 Articles

小さなキナーゼのATP結合部位が、鋳型照合で見えた

既知の構造を鋳型に粒子の向きを決める2DTMで、公開データから約43 kDaの酵素を再構成した

PaperImproved cryo-EM reconstruction of sub-50 kDa complexes using 2D template matching

First authorKexin Zhang (University of Massachusetts Chan Medical School, United States)

CorrespondingKexin Zhang, Nikolaus Grigorieff (University of Massachusetts Chan Medical School, United States)

JournaleLife

Published2026.10.26

LicenseCC BY 4.0

構造図:プロテインキナーゼA
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 1ATP(論文が使った既存の構造)

Proteins & Nucleic Acids

  • PKA(キナーゼ)cAMP-DEPENDENT PROTEIN KINASE
  • PKI(阻害ペプチド)PEPTIDE INHIBITOR PKI(5-24)

Ligands

  • ATPAdenosine-5'-Triphosphate
疑問・課題
50 kDa未満の小さな複合体は画像のコントラストが弱く、単粒子クライオ電顕で高分解能の構造を決めにくい。
アプローチ
既知の高分解能構造を鋳型にする2Dテンプレートマッチング(2DTM)で粒子の向きを決め、公開済みのキナーゼのデータを再解析した。
結果
ATPを鋳型から外しても、ATPとMn2+の密度が戻った。2DTMの向きを使った地図は3.1 Åで、RELIONの3.7 Åより明瞭だった。
わかったこと
この方法は、50 kDaを大きく下回る薬剤結合複合体にも広げられると理論解析は予測する。鋳型の精度が結果を左右する。
残された課題
AlphaFold3の鋳型で残基ごとに検証する作業は計算量が大きく、今後の課題とされている。

Highlights

元の報告の地図は約4.3 Å(74,413粒子)で、ATP結合部位が解けなかった。本研究は画像と粒子を厳しく選び、ATPと数残基を鋳型から外したまま、7,353粒子でATPの密度を取り出した。

原文

“In particular, the ATP-binding pocket was not resolved in the map”Results

ATPから3.0 Åと5.5 Å以内の残基まで鋳型から外して試した。ATPの密度は安定して戻ったが、周りの残基は削る範囲が広いほど戻りにくかった。

原文

“In contrast, ATP density was consistently recovered more robustly than nearby residues.”Results

約10残基ずつ外した36通りの鋳型から合成した地図では、タンパク質の各所で密度が戻った。ただし、戻りやすさは場所によって違った。

原文

“Recovery is variable across sites”Results

Lab Notes

データ収集・解析
公開データ(EMPIAR-10252、4809枚)を使った。MotionCor2で補正し、鋳型は1ATPからcisTEMのsimulateで作った。再構成もcisTEMで行った。

Related Articles

エブセレンは、C300への結合でMproの二量体を不安定にする

ペプチド模倣阻害剤は二量体を安定にする。ネイティブMSとHDX-MSで、阻害のしかたの違いを分けた

PaperSARS-CoV-2 main protease inhibition through dimerization promotion by peptidomimetic inhibitors and disruption by ebselen

First authorChengxi Liu (The Hong Kong Polytechnic University, China)

CorrespondingZhong-Ping Yao (The Hong Kong Polytechnic University, China)

JournaleLife

Published2026.10.26

LicenseCC BY 4.0

構造図:SARS-CoV-2 Mpro
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 7BFB(論文が使った既存の構造)

Proteins & Nucleic Acids

  • Mpro(プロテアーゼ)Main Protease

Ligands

  • エブセレン9JTN-phenyl-2-selanylbenzamide
疑問・課題
SARS-CoV-2のMproは活性のある二量体と不活性な単量体の平衡にあり、二量体の界面が薬の標的になりうる。
アプローチ
13C標識を使うネイティブMSとHDX-MSで、複数の阻害剤がMproの二量体化と構造の揺らぎに与える影響を比べた。
結果
ペプチド模倣阻害剤は二量体を増やして界面を硬くし、エブセレンは二量体を減らして界面の揺らぎを増やした。
わかったこと
エブセレンはC300を修飾し、二量体界面の水素結合網を変えて二量体の崩れに寄与する。C300はアロステリックな標的になりうる。
残された課題
AT7519とpelitinibの結合は、HDX-MSの限界のため変化として検出できなかった可能性がある。

Highlights

PF-07321332を結合させると、単量体の割合は5.35%から0.48%に下がり、13C標識体との交換で生じるヘテロ二量体も30分間検出されなかった。二量体が強く固定されたことを示す。

原文

“PF-07321332 markedly reduced the monomer fraction to 0.48±0.06%, consistent with stabilization of the dimeric state.”Results

エブセレンは活性部位のC145ではなく、C44とC300を修飾した。C44への結合は、既存の結晶構造7BFBとも合う。C300は二量体の界面にある。

原文

“Incubation of Mpro with ebselen revealed ebselen-mediated cysteine modifications at C44 and C300”Results

C300をSerに変えると、エブセレンによる阻害は約47%から約22%に下がった。C300Fは主に単量体で、活性は約10%だった。

原文

“C300S retained approximately 70% activity, whereas C300F retained only approximately 10%”Results

Lab Notes

発現系
タグなしの組換えMpro(C300S・C300F・13C標識体を含む)は、Beijing Anbiqi Biotechnology社が調製した。
結晶化/グリッド作製
共有結合性の阻害剤は1:3、アロステリック阻害剤は1:50でMproと混ぜ、室温で30分置いてからHDXを行った。
データ収集・解析
ネイティブMSとHDX-MSはWaters Synapt G2-Siで測り、結合部位はトリプシン消化後にtimsTOF Pro 2で調べた。MDは7ALIを出発点にし、1000 nsを3回行った。

Related Articles