Issue No. 24 · Friday

2026.10.30

10月29日に論文データベースへ登録された論文から

16Articles
約36分Reading time

New Structure2Structure Update12Structure-Based Study2

Today’s Structures

1 / 3
Contents
  1. Human mitochondrial ClpP with OICR18704ClpPを遠くから止める、新しい阻害剤
  2. EIGHT fold knotted proteins (Lachnospiraceae)腸内細菌に、8交差の複雑な結び目をもつタンパク質が見つかった
  3. ChOGRE23 G-quadruplex (chicken β-globin origin)ニワトリの複製起点のDNAは、Cが飛び出したG4を作る
  4. HCMV US28–Gq complex with CX3CL1.44ウイルスGPCRで、Gq活性化の途中の状態を3つ捉えた
  5. VSV L–P–N0 polymerase complexVSVのポリメラーゼは、N0をRNAの出口そばに留める
  6. E. coli FtsEX (with EnvC)対称な大腸菌FtsEXが、非対称なEnvCを受け止める
  7. Human HCN1/HCN2 chimera (HCN112) and HCN1ΔC channelsHCN2の細胞質ドメインを移したチャネルは、縮んだ形をとる
  8. c-di-GMP-II riboswitch variant (B. halodurans)RNAは、cGAMPの異性体を結合の向きで見分ける
  9. HCV E2 core with macaque antibody RM3-26サルの抗体は、ヒトの抗体と似た向きでHCVのE2に結合した
  10. PDB 公開待ちHuman GFRAL D3 with anti-GFRAL Fab (GB2Ab)抗GFRAL抗体は、GFRALの表面を作り替えてRETをふさぐ
  11. Heparin lyase I (B. eggerthii)3-O-硫酸の隣も切れる、腸内細菌のヘパリン酵素
  12. PDB 公開待ちHuman DTX4 RING-DTC domainsDTX4のRINGは、結晶中でドメインを入れ替えた二量体を作る
  13. PKA catalytic subunit α (C. griseus)合成した15化合物のうち5つが、PKAをナノモルで阻害した
  14. PDB 公開待ちHuman PGK1 (phosphoglycerate kinase 1)テラゾシンは、PGK1が閉じるのを妨げて開いた状態に保つ
  15. MbnH (M. trichosporium OB3b)二ヘム酵素の電子は、トリプトファンなしでも運ばれる
  16. 構造図なしHuman cyclophilin A (CypA)19F–19F NOESYで、タンパク質中の約5 Å以内の距離が測れる

Contents

16 Articles
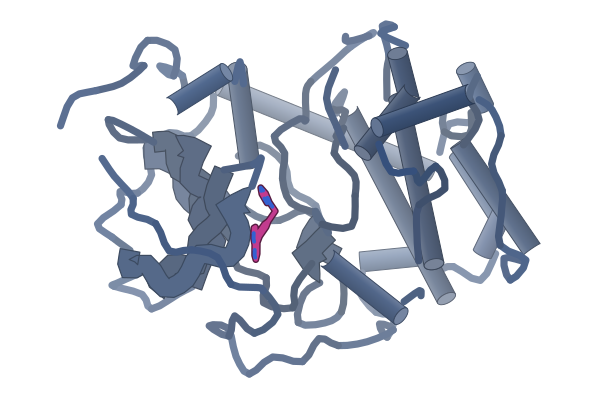
  1. 構造図:ヒトClpP(ミトコンドリア)

    Picked up·Structure Update

    Human mitochondrial ClpP with OICR18704

    ClpPを遠くから止める、新しい阻害剤

    活性部位から約30 Å離れたポケットに結合し、触媒残基の並びをずらして不活性にする
  2. 構造図:EIGHT fold(結び目タンパク質)

    New Structure

    EIGHT fold knotted proteins (Lachnospiraceae)

    腸内細菌に、8交差の複雑な結び目をもつタンパク質が見つかった

    X線構造で結び目を確かめ、変性は6段階で進むと分かった

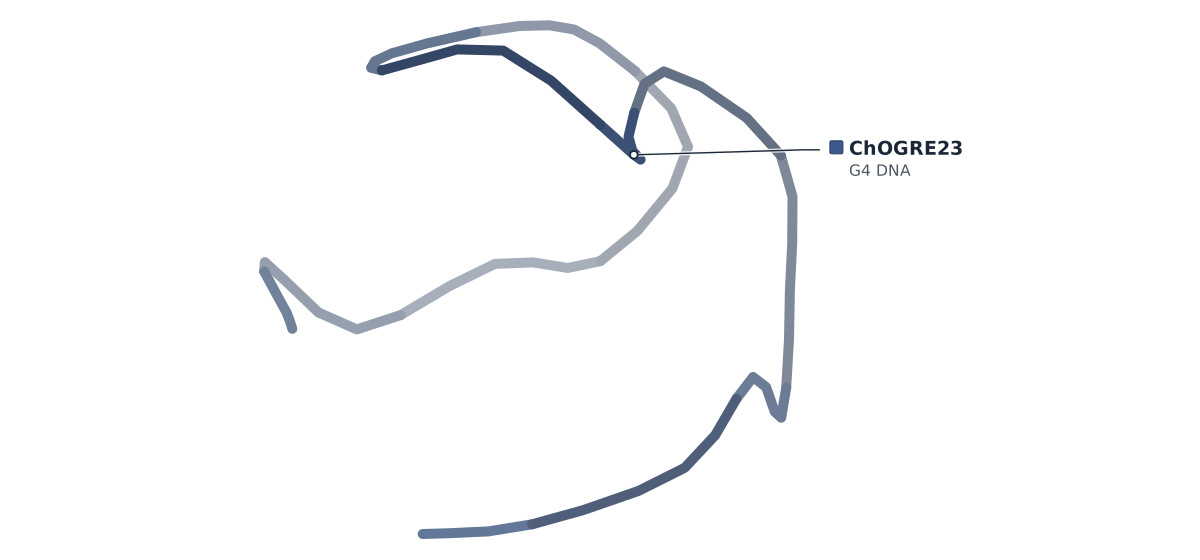
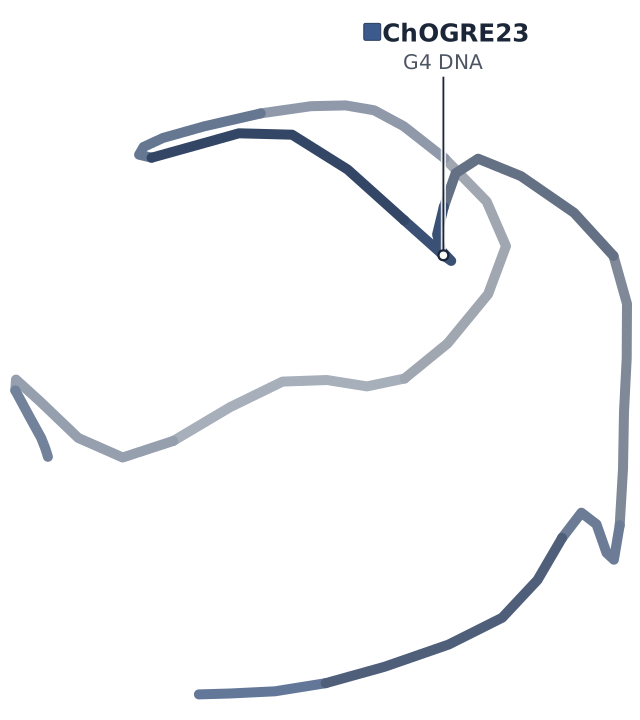
  3. 構造図:ChOGRE23(ニワトリDNA)

    New Structure

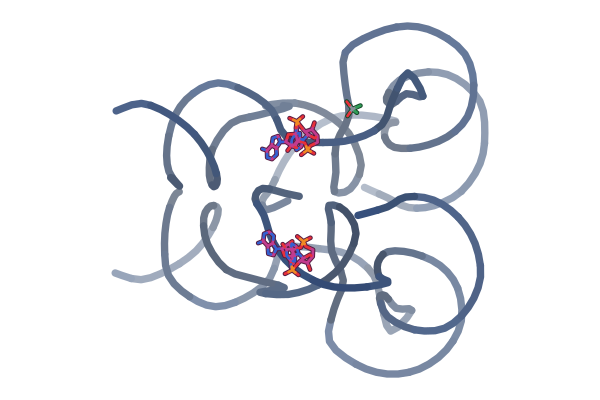
    ChOGRE23 G-quadruplex (chicken β-globin origin)

    ニワトリの複製起点のDNAは、Cが飛び出したG4を作る

    NMRで決めた3層の(3+1)ハイブリッド型で、5'端のGがanti型で外側の層に入る

  4. 構造図:US28–Gq(サイトメガロウイルス)

    Structure Update

    HCMV US28–Gq complex with CX3CL1.44

    ウイルスGPCRで、Gq活性化の途中の状態を3つ捉えた

    クライオ電顕でE・T2C・C状態を解析し、α5の形成が塩橋の切断を介してGDP放出を促すと提案

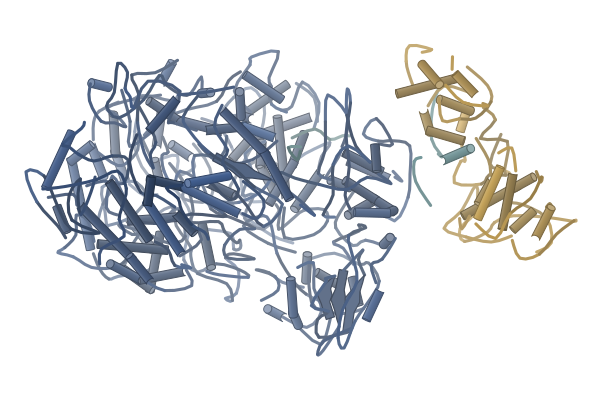
  5. 構造図:VSV L-P-N0複合体

    Structure Update

    VSV L–P–N0 polymerase complex

    VSVのポリメラーゼは、N0をRNAの出口そばに留める

    L-P-N0のクライオ電顕で、N0がLCTD付近を動く様子と3.8 Åの安定な状態を得た

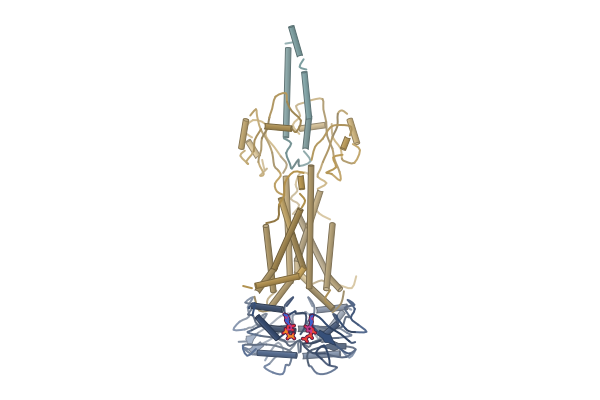
  6. 構造図:FtsEX・EnvC(大腸菌)

    Structure Update

    E. coli FtsEX (with EnvC)

    対称な大腸菌FtsEXが、非対称なEnvCを受け止める

    ATP結合状態の構造をクライオ電顕で解析。柔らかいループが相手の形に合わせて結合する

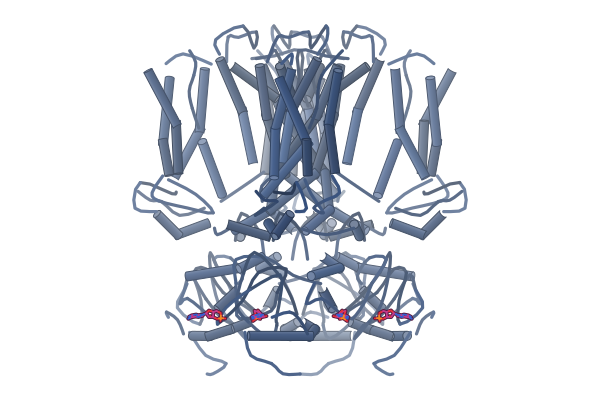
  7. 構造図:HCN112/HCN1ΔC(ヒト)

    Structure Update

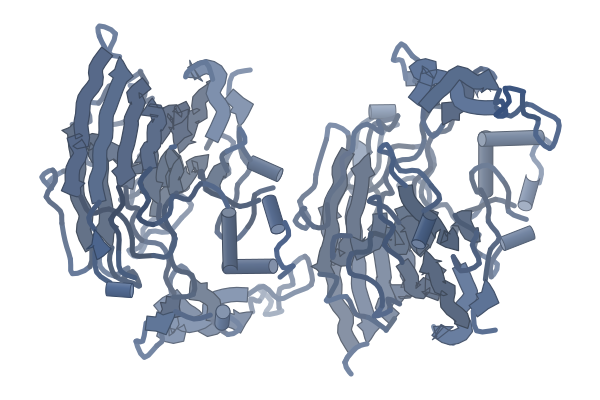
    Human HCN1/HCN2 chimera (HCN112) and HCN1ΔC channels

    HCN2の細胞質ドメインを移したチャネルは、縮んだ形をとる

    キメラとCNBD欠失体の構造から、cAMP応答と自己抑制を調べた

  8. 構造図:c-di-GMP-IIリボスイッチ変異体

    Structure Update

    c-di-GMP-II riboswitch variant (B. halodurans)

    RNAは、cGAMPの異性体を結合の向きで見分ける

    リボスイッチ変異体の結晶構造では、2種のcGAMPで塩基が逆向きに入り、A64・G68との接し方が変わる

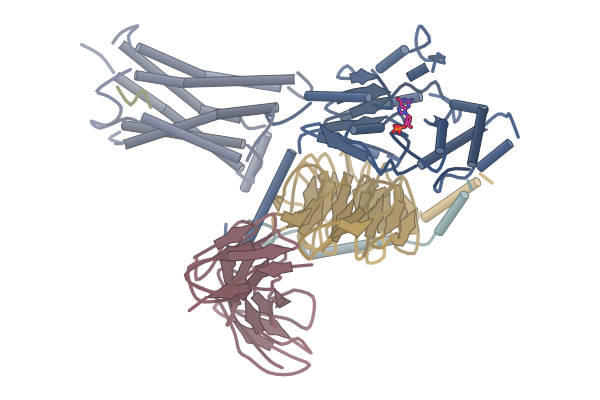
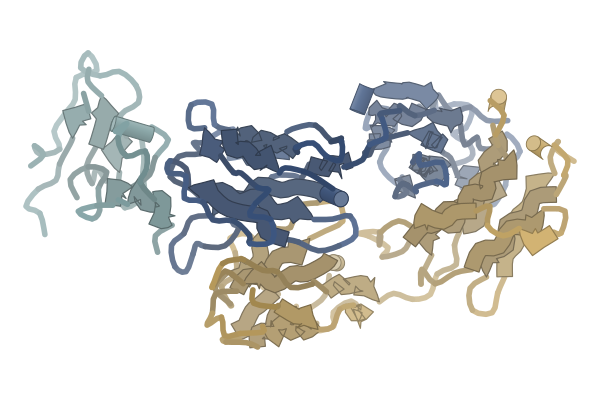
  9. 構造図:HCV E2コア×抗体RM3-26

    Structure Update

    HCV E2 core with macaque antibody RM3-26

    サルの抗体は、ヒトの抗体と似た向きでHCVのE2に結合した

    BD抗体25種を調べ、RM3-26とE2コアの結晶構造を2.24 Åで決めた

  10. Structure Update

    Human GFRAL D3 with anti-GFRAL Fab (GB2Ab)

    抗GFRAL抗体は、GFRALの表面を作り替えてRETをふさぐ

    Fab–GFRAL D3の結晶構造(2.3 Å)が誘導適合を示し、悪液質のマウスで効果を確かめた

  11. 構造図:BeHepI(B. eggerthii)

    Structure Update

    Heparin lyase I (B. eggerthii)

    3-O-硫酸の隣も切れる、腸内細菌のヘパリン酵素

    X線結晶構造で切断後の二糖が活性部位に収まる様子を捉え、LC-MSとNMRの結果を裏づけた

  12. Structure Update

    Human DTX4 RING-DTC domains

    DTX4のRINGは、結晶中でドメインを入れ替えた二量体を作る

    ADP-リボース結合型のRING-DTCを2.8 Åで解析し、ADP-リボースへの結合も測った

  13. 構造図:PKA(ハムスター)

    Structure Update

    PKA catalytic subunit α (C. griseus)

    合成した15化合物のうち5つが、PKAをナノモルで阻害した

    断片をサブポケットごとに成長させる計算法で設計し、最も強い化合物の結晶構造が予測とよく重なった

  14. Structure Update

    Human PGK1 (phosphoglycerate kinase 1)

    テラゾシンは、PGK1が閉じるのを妨げて開いた状態に保つ

    NMR滴定と、NOEだけで決めたNMR²構造が、X線構造と同じ結合部位を溶液中で示した

  15. 構造図:MbnH(メタン酸化菌)

    Structure-Based Study

    MbnH (M. trichosporium OB3b)

    二ヘム酵素の電子は、トリプトファンなしでも運ばれる

    MbnHの変異体解析で、ヘムのプロピオン酸基を通る別の電子の通り道が見えた

  16. Structure-Based Study

    Human cyclophilin A (CypA)

    19F–19F NOESYで、タンパク質中の約5 Å以内の距離が測れる

    シクロフィリンAに入れた二フッ素化トリプトファンで、F–F距離を小分子のX線構造と比べて確かめた

Picked up Today’s Structure2026.10.301 Article

ClpPを遠くから止める、新しい阻害剤

活性部位から約30 Å離れたポケットに結合し、触媒残基の並びをずらして不活性にする
PaperAllosteric inhibition of human mitochondrial ClpP by hijacking the dordaviprone (ONC201) binding site

First authorMonica M. Goncalves (University of Guelph, Canada)

CorrespondingAaron D. Schimmer (Ontario Institute for Cancer Research, Canada), Natalie Zeytuni (McGill University, Canada), Siavash Vahidi (University of Guelph, Canada)

JournalNature Communications

Published2026.09.28

LicenseCC BY-NC-ND 4.0

構造図:ヒトClpP(ミトコンドリア)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • ClpP(プロテアーゼ)ATP-dependent Clp protease proteolytic subunit, mitochondrial

Ligands

  • OICR18704A1CRQ4-[4-({7-chloro-3-[(1S)-1-cyanoethyl]-4-oxo-3,4-dihydroquinazolin-2-yl}methyl)piperazin-1-yl]-2-(trifluoromethyl)benzonitrile
疑問・課題
ClpPの阻害剤は、活性部位に結合すると逆に活性化する現象があり、開発が難しかった。
アプローチ
キナゾリノン系の阻害剤OICR18704と結合したヒトClpPの構造をクライオ電顕で決め、HDX-MSで動きも調べた。
結果
7つのポケットのうち阻害剤が入るのは2つだけで、触媒のHis178を置く取っ手のβシートはどのサブユニットでも消えていた。
わかったこと
結合部位は活性部位から約30 Å離れており、クラスターが壊れると触媒三残基がずれて活性を失う。
残された課題
生体内での効果がClpP阻害によるのか、PRKCIなどによるのかは今後の課題とされる。

Highlights

阻害剤は、活性化剤ドルダビプロン(ONC201)の結合ポケットと一部重なる場所に入る。キナゾリノン部分はドルダビプロンに似た結合をするが、トリフルオロメチルベンゾニトリル基が軸孔側へ伸びて疎水性クラスターをこじ開け、阻害に転じる。

原文

“The disruption of this critical allosteric hotspot at the interface of adjacent ClpP subunits enables OICR18704 to act as an inhibitor rather than an activator.”Results

クラスターを壊すV62A変異体も、非対称なヘプタマー(7量体)で不活性になり、ドルダビプロンで活性が戻る。HDX-MSでも、取っ手ドメインが不安定になることが示された。

原文

“Both the V62A substitution and OICR18704 binding stabilize the inactive heptameric state of ClpP and thereby abolish activity.”Results

活性部位に結合する阻害剤は、低濃度でClpPを活性化してしまう。この化合物群は別の部位を使い、白血病のマウスモデルで経口投与後に腫瘍量を減らした。

原文

“In a xenograft mouse model of leukemia, our lead compound significantly reduced tumor burden following short-term oral administration.”Abstract

Lab Notes

発現系
大腸菌T7 Expressで発現。
コンストラクト
ミトコンドリア標的配列(1–56)を除いた野生型とV62A変異体。切断可能なHis6-SUMOタグ付き。
精製
Niカラム、Ulp1でタグ切断、再度Niカラム、Superdex 200 Increaseでゲル濾過。
結晶化/グリッド作製
ClpP 15 mg/mlに1 mMのOICR18704を加え、0.025%のIGEPAL CA-630を添加。Vitrobot Mark IV(4 °C、湿度100%)で凍結。
データ収集・解析
Titan Krios、K3検出器、SerialEMで収集。cryoSPARC v4で処理。

Related Articles

New Structure2026.10.302 Articles

腸内細菌に、8交差の複雑な結び目をもつタンパク質が見つかった

X線構造で結び目を確かめ、変性は6段階で進むと分かった

PaperUnique features of EIGHT fold—Proteins with the most complex 83 knotted topology

First authorMariusz Mozajew (University of Warsaw, Poland)

CorrespondingSophie E. Jackson (University of Cambridge, United Kingdom), Joanna I. Sulkowska (University of Warsaw, Poland)

JournalProceedings of the National Academy of Sciences of the United States of America

Published2026.10.19

LicenseCC BY-NC-ND 4.0

構造図:EIGHT fold(結び目タンパク質)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • EIGHT fold(結び目)Protein with 8.3 knot
疑問・課題
結び目をもつタンパク質のうち、実験で構造が確かめられた結び目の種類は少なく、交差が8回のものは未確認だった。
アプローチ
AlphaFoldが交差8回の結び目をもつと予測した細菌タンパク質を発現し、X線結晶構造を決め、安定性と変性の速さも測った。
結果
結晶構造3つが結び目を確かめた。変性は少なくとも6段階で進み、半減期は約0.1秒から25時間超に及んだ。
わかったこと
同じ折りたたみは細菌の296タンパク質に見つかった。折りたたみの経路は既知の理論では説明できないと著者は述べる。
残された課題
このタンパク質の機能は分かっていない。

Highlights

タンパク質εとαの結晶構造3つ(2.2〜2.92 Å)が、交差8回の結び目を確かめた。結び目は約470残基のほぼ全長にわたり、全体が1ドメインのα-ヘリックスだけでできている。

原文

“The monomer is a single-domain protein with a purely α-helical structure (20 helices; Fig. 2).”Results

構造決定にはAlphaFold2モデルを使った分子置換を用いたため、モデルの偏りが入る恐れがある。著者は、結び目のないモデルでは解けず結び目のあるモデルでは解けたことを、結び目を支持する独立の証拠としている。

原文

“While molecular replacement with the AlphaFold model carries a risk of bias”Conclusions

構造は、似た2つの半分(ジグザグのヘリックス束・長いヘリックス・二重のHLH領域)からなる。著者は、単純な祖先の重複で生じた可能性を挙げている。

原文

“The similarity between the two halves might be due to the duplication”Results

Lab Notes

コンストラクト
AlphaKnotで8交差の結び目をもつとされたタンパク質から、結晶化しやすそうな6種を選んだ。
データ収集・解析
分子置換(AlphaFold2モデル)で決定した。SeMet置換の結晶は6 Åを超えて回折しなかった。

ニワトリの複製起点のDNAは、Cが飛び出したG4を作る

NMRで決めた3層の(3+1)ハイブリッド型で、5'端のGがanti型で外側の層に入る

PaperA Cytosine‑Bulged (3+1) Hybrid G‑Quadruplex Formed by the Chicken DNA Replication Origin

First authorYingying You (Sun Yat‐sen University, China)

CorrespondingChangdong Liu, Guang Zhu (The Hong Kong University of Science and Technology, China)

JournalChemistry (Weinheim an Der Bergstrasse, Germany)

Published2026.07.15

LicenseCC BY 4.0

構造図:ChOGRE23(ニワトリDNA)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • ChOGRE23(G4 DNA)DNA (5'-D(*GP*GP*GP*AP*AP*CP*GP*CP*GP*GP*CP*AP*TP*CP*AP*GP*GP*GP*TP*GP*GP*GP*G)-3')
疑問・課題
複製起点のG-rich配列(OGRE)がつくるG4の構造は、よく分かっていなかった。
アプローチ
ニワトリβグロビン複製起点の23塩基(ChOGRE23)をK+溶液中でNMR解析し、NOEから構造を計算した。
結果
3枚のG-カルテットが重なる分子内の(3+1)ハイブリッド型G4で、2本目のGの並びを割るC8が外に飛び出していた。Tmは64.6℃だった。
わかったこと
5'端のGがanti型で外側のカルテットに入る並びは、既報の分子内(3+1)型G4にないと論文は述べる。Cのバルジとあわせ独自の表面を作る。
残された課題
ChOGRE23は最小単位で、長い配列や染色体上の起点でも同じG4ができるかは今後の課題だ。

Highlights

ニワトリβグロビン複製起点のOGREがつくるG4として、論文が初めてと述べる高分解能構造。36塩基では複数の構造が混ざったため、均一なスペクトルを示す23塩基に切り詰めて解析した。

原文

“we report the first high‑resolution G4 structure formed by OGRE from the β‐globin replication origin of chicken”Abstract

C8が2本目のGの並び(G7とG9の間)を割ってカルテットの外へ突き出し、バルジをつくる。ループのC6、C11、C14はG-カルテットの上に積み重なり、非対称な分子表面ができる。

原文

“Interestingly, C8 interrupts the second G‐tract between G7 and G9 and is extruded from the G‐quartet core.”Results

グアニンのイミノ陽子は、5%の15N標識を部位ごとに入れた試料で帰属した。H1–H8のNOEから3枚のG-カルテットと、水素結合の向きの違いを決めた。

原文

“were unambiguously assigned by using a site‐specific low‐enrichment (5%) 15N‐labeling strategy”Results

Lab Notes

発現系
DNAは化学合成品(BGI GenomicsとTakara)。部位特異的に5%の15N,13Cで標識したオリゴも用いた。
コンストラクト
ChOGRE23(23塩基)。36塩基のChickOG36を切り詰めたもの。
結晶化/グリッド作製
70 mM KCl・20 mMリン酸カリウム(pH 7.0)で0.1 mMとし、95℃で15分加熱して一晩かけて室温まで徐冷した。
データ収集・解析
Varian INOVA 500・800 MHzで25℃にNOESYなどを測定。XPLOR-NIHで構造を計算し、違反のない低エネルギー10構造を採用した。

Structure Update2026.10.3011 Articles

ウイルスGPCRで、Gq活性化の途中の状態を3つ捉えた

クライオ電顕でE・T2C・C状態を解析し、α5の形成が塩橋の切断を介してGDP放出を促すと提案

PaperStructural basis of stepwise G protein activation by the viral chemokine receptor US28

First authorKevin M. Jude (Stanford University School of Medicine, USA)

CorrespondingCarl-Mikael Suomivuori (Yale School of Medicine, USA), Asuka Inoue (Kyoto University, Japan), K. Christopher Garcia (Stanford University School of Medicine, USA) ほか 1 名

JournalNature Communications

Published2026.09.28

LicenseCC BY 4.0

構造図:US28–Gq(サイトメガロウイルス)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • Gαq(G タンパク質 α)Guanine nucleotide-binding protein G(q) subunit alpha
  • Gβ1(G タンパク質 β)Guanine nucleotide-binding protein G(I)/G(S)/G(T) subunit beta-1
  • Gγ2(G タンパク質 γ)Guanine nucleotide-binding protein G(I)/G(S)/G(O) subunit gamma-2
  • scFv16(抗体断片)Antibody fragment scFv16
  • US28(ウイルス GPCR)G-protein coupled receptor homolog US28
  • CX3CL1.44(改変ケモカイン)N-terminal fragment of the engineered fractalkine CX3CL1.44

Ligands

  • GDPGuanosine-5'-Diphosphate
疑問・課題
GPCRがGタンパク質と出会ってからGDPを放すまでの構造変化は、構造としては捉えにくかった。
アプローチ
ウイルスのGPCRであるUS28と改変ケモカインでGqとの複合体を作り、クライオ電顕に、MDと変異体解析を組み合わせた。
結果
GDP結合のE状態(2.6 Å)、中間体とみられるT2C状態(2.9 Å)、GDPのないC状態(2.6 Å)が得られた。
わかったこと
α5ヘリックスの挿入がP-loopのGlu49とSwitch IのArg183の塩橋を切り、この解錠はAHDが大きく開くより先に起きると提案している。
残された課題
状態の起きる時間的な順序は、リアルタイムの1分子解析などがないと決められない。

Highlights

E状態からT2C状態でα5がほぼ完成すると、TCATモチーフが乱れ、Glu49–Arg183の塩橋が切れる。Glu49はArg247と新しい塩橋を作り、Arg247とGln152(AHD)の結合が切れて、AHDとRHDの界面が不安定になる。

原文

“The transition from the E- to T2C-state triggers a sequence of allosteric rearrangements, initiated as the Gαq α5 helix is almost fully formed (Fig. 5c).”Results

C状態ではα5が完成してα1ヘリックスがずれ、その衝突でGDPが押し出され、AHDも離れる。E状態からC状態までに、GqはUS28に対して約33°回転する。

原文

“Gq rotates by approximately 33° accompanied by a slight translation of less than 2 Å along the αN helix”Results

T2C状態から始めた16本の約2 µsのMDのうち、6本がC状態へ、1本がE状態へ部分的に向かった。GDP放出は見られなかった。変異体R129Aでは、Gq活性化が完全に消えた。

原文

“We did not observe GDP release at the simulated timescales.”Results

Lab Notes

発現系
CX3CL1.44とUS28はBacMam系でHEK293S GnTI−細胞に、GαqiN18とGβ1・Gγ2はTrichoplusia ni細胞に発現させた。
コンストラクト
Gαqの先頭18残基をGαi1の配列に替えたGαqiN18を使い、scFv16が結合できるようにした。
精製
アピラーゼで残ったGDPを分解し、FLAGカラムで余分なGqiN18を除いた。scFv16を加え、Superdex 200のSECで精製した。
結晶化/グリッド作製
試料に0.1% fOMまたは10 mM CHAPSOを加え、Quantifoilグリッドに3 µLを載せ、Leica EM GPで凍結した。
データ収集・解析
Titan Krios(300 kV、K3)で収集し、cryoSPARCで処理した。E状態は193,867粒子で2.6 Åになった。

Related Articles

VSVのポリメラーゼは、N0をRNAの出口そばに留める

L-P-N0のクライオ電顕で、N0がLCTD付近を動く様子と3.8 Åの安定な状態を得た

PaperStructure of vesicular stomatitis virus L-P-N0 complex by cyro-electron microscopy

First authorLouis-Marie Bloyet (Washington University in St. Louis School of Medicine, USA)

CorrespondingLouis-Marie Bloyet, Sean P. J. Whelan (Washington University in St. Louis School of Medicine, USA)

JournalScience Advances

Published2026.10.30

LicenseCC BY 4.0

構造図:VSV L-P-N0複合体
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • P(補助因子)RNA-directed RNA polymerase L
  • N0(核タンパク質)Nucleoprotein
  • L(RNAポリメラーゼ)Phosphoprotein
疑問・課題
複製中のLが、新生RNAを包む可溶性のN0をどう呼び込むかは、答えの出ていない問いだった。
アプローチ
VSVのL-P-N0複合体を精製タンパク質から再構成し、単粒子クライオ電顕で解析した。
結果
N0はLCTD付近を連続的に動いていた。一部(約13%)は出口近くで安定し、3.8 Åの地図でモデルを作れた。
わかったこと
LCTDは複製に特化した足場で、Pに保持されたN0をRNAの出口へ導くと考えられる。
残された課題
RNAがNに渡る瞬間は未観察で、時間分解やRNAを捕えた状態の解析が必要だ。

Highlights

N0を抱えたPの先頭部分(PNTD)がLCTDに近づいて触れる状態が、焦点を絞った3D分類で複数分かれた。3DFlexの解析は、N0が連続した位置をとることを示した。

原文

“This analysis indicates that the N protein is in a dynamic continuum of positions”Results

安定な状態の原子モデル(9T53)では、N0がLCTDの端に置かれ、PNTDがPのLBS1とLCTDの両方に接していた。既知のL-P構造とN0-P構造は、目立った変化なく地図に収まった。

原文

“The model highlights an N0 protomer positioned at the edge of the LCTD platform and contacts between the PNTD and both PLBS1 and LCTD”Results

界面の埋もれ面積を比べると、N0-PとL-Pをつなぐ接触はPによるもの(325 Å2)がN-L間(187 Å2)より大きい。Nの動きはPNTDとLの接点を中心にしており、Pが安定化の中心と著者は読み取る。

原文

“Overall, these results highlight a central role of P in the formation and stabilization of the conformation.”Results

Lab Notes

発現系
N0-P(NとPの1–106)は大腸菌Rosetta 2 (DE3)で、Lは組換えVSVを感染させたBSR-T7細胞から調製した。
コンストラクト
Pは全長ではなくN末端領域(1–106)を使った。LはN末端に8xHis-3Cタグを付けた組換えウイルスから得た。
精製
Ni-NTAビーズ上でLにN0-Pを結合させ、anti-Flagビーズで精製してHRV-3Cでタグを外した。
結晶化/グリッド作製
0.2 mg/mlの複合体3 μLをlacey carbonの銅グリッドに載せ、Vitrobot Mark IVで液体エタンに凍結した。
データ収集・解析
200 keVのGlacios・Falcon IVで10,322本の動画を撮り、CryoSPARC 4.6.0で処理した。3DFlexで3.8 Åの地図を得た。

Related Articles

対称な大腸菌FtsEXが、非対称なEnvCを受け止める

ATP結合状態の構造をクライオ電顕で解析。柔らかいループが相手の形に合わせて結合する

PaperStructural insights into peptidoglycan hydrolysis by the FtsEX system in Escherichia coli during cell division

First authorJianwei Li (National University of Singapore)

CorrespondingMin Luo (National University of Singapore)

JournaleLife

Published2026.10.28

LicenseCC BY 4.0

構造図:FtsEX・EnvC(大腸菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • EnvC(分解の活性化因子)Cell division ATP-binding protein FtsE
  • FtsX(膜貫通・PLD)Cell division protein FtsX
  • FtsE(ATPase)Murein hydrolase activator EnvC

Ligands

  • ATPAdenosine-5'-Triphosphate
疑問・課題
大腸菌でFtsEXとEnvCが細胞壁の分解をどう制御するかは、構造から調べられていなかった。
アプローチ
ATP類似体を結合したFtsEXと、EnvCとの複合体を、ペプチディスクに再構成してクライオ電顕で解析した。
結果
FtsEXは3.7 Å、EnvCとの複合体は3.4 Åの構造が得られた。EnvCが結合しても、2つのPLDは対称のままだった。
わかったこと
柔軟なループと疎水性の接触により、対称なFtsEXが非対称なEnvCに対応すると考えられる。
残された課題
EnvC・AmiBとの全体の複合体は、クライオ電顕で明瞭な密度図が得られなかった。

Highlights

ATPγS、AMP-PNP、ADPでも複合体が安定になり、FtsEの加水分解できないE163Q変異体でも安定だった。安定化にはATPの加水分解でなく結合で足りる。EnvCが加わるとATPase活性は約2.2倍になる。

原文

“it indicates that ATP binding, rather than hydrolysis, is sufficient for complex stabilization”Results

既報の結晶構造(6TPI)ではPLDが非対称で、EnvCのコイルドコイルが開いていた。今回の構造ではコイルドコイルのヘリックス間が24 Åから10 Åに縮み、LytMドメインの密度も見えない。著者はATPの存在下でLytMが放出されると推測している。

原文

“Together, we hypothesize that in the presence of ATP, the LytM domain is released, facilitating AmiB recruitment.”Results

FtsEX・EnvC・AmiBの複合体をネガティブ染色で観察すると、膜から約290 Å伸びた棒状の像が得られた。緑膿菌の系と同様の伸びた形で、活性化状態に近いと著者は考えるが、分解活性は確かめられていない。

原文

“extending about 290 Å into the periplasm, which we attribute to the bound EnvC and AmiB”Results

Lab Notes

発現系
大腸菌BL21(DE3) pLysSで発現し、IPTGで誘導。
コンストラクト
His6タグ付きの全長FtsEXと、ATPを加水分解できないFtsE E163Q変異体。
精製
DDMで膜を可溶化し、TALON樹脂上でペプチディスクに再構成。Superose 6でゲル濾過。精製の全過程で2 mM ATP/MgCl2を維持。
結晶化/グリッド作製
3 mg/mlの試料をQuantifoilグリッドに載せ、ATPγS(FtsEX)またはATP(E163Q/EnvC)とともに37 °Cで8分置いてから凍結。
データ収集・解析
Titan KriosとK3検出器、SerialEMで収集(ピクセル1.06 Å)。cryoSPARCで処理。

Related Articles

HCN2の細胞質ドメインを移したチャネルは、縮んだ形をとる

キメラとCNBD欠失体の構造から、cAMP応答と自己抑制を調べた

PaperStructural basis of isoform-specific cAMP regulation and autoinhibition in hyperpolarization-activated cyclic nucleotide-gated channels

First authorValentina Zorzini (Belgium)

CorrespondingChris Ulens (Belgium)

JournalThe Journal of Biological Chemistry

Published2026.09.23

LicenseCC BY 4.0

構造図:HCN112/HCN1ΔC(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • HCN1/HCN2 キメラ(チャネル)Potassium/sodium hyperpolarization-activated cyclic nucleotide-gated channel 1,Potassium/sodium hyperpolarization-activated cyclic nucleotide-gated channel 2,Potassium/sodium hyperpolarization-activated cyclic nucleotide-gated channel 1,Potassium/sodium hyperpolarization-activated cyclic nucleotide-gated channel 2,HCN112 holo, in complex with cAMP

Ligands

  • cAMPCMPAdenosine-3',5'-Cyclic-Monophosphate
疑問・課題
HCN2はcAMPに強く応答するがHCN1はほとんど応答せず、その構造上の理由は十分に分かっていなかった。
アプローチ
HCN1にHCN2のC-リンカーとcAMP結合ドメイン(CNBD)を移したHCN112と、細胞質側を欠くHCN1ΔCをクライオ電顕で解析した。
結果
HCN112は膜に垂直な方向に約3.5 Å縮み、サブユニット間の結合が増えた。HCN1ΔCはゲートの細孔半径が1 Åから約2.5 Åに広がった。
わかったこと
縮んだ配置がHCN2でcAMPが効きやすい一因かもしれない。細胞質側を欠くと細孔が中間的に開くことから、野生型ではCNBDが開口を抑えると考えられる。
残された課題
構造だけでは縮みとcAMP感受性の因果は示せず、機能実験が必要だと論文は述べる。

Highlights

HCN112では膜貫通ドメインとCNBDが近づき、HCN1にはないサブユニット間の水素結合・塩橋が17個みられた。その大半は、cAMPの結合と開口を結びつけるとされるC-リンカーに集まっていた。

原文

“there are 17 inter-chain H-bonds and salt bridges in the ligand-free form of HCN112”Results

cAMPが結合するとCNBDが回転してC-リンカーから離れ、この17個の大半が切れた。結合による相互作用の解消が開口を助ける可能性を著者は挙げるが、検証は今後の課題だ。

原文

“Most of these interactions are broken in the cAMP-bound state except for three remaining H-bonds”Results

C-リンカーとCNBDを丸ごと欠くHCN1ΔCは、細孔が中間的に開いた形だった。ただし膜貫通部分の分解能は限られ、側鎖の解釈には注意が要ると著者は述べる。

原文

“Notably, the TMD of HCN1ΔC shows limited resolution, making detailed side-chain interpretation difficult”Results

Lab Notes

発現系
HEK293S GnTI−細胞にバキュロウイルス(BacMam)で発現した。
コンストラクト
HCN1EMを土台に、HCN1のMet1–Leu400にHCN2のAsp401–Leu658をつないだHCN112と、Met1–Asp401までのHCN1ΔCを作った。
精製
LMNG+CHSで可溶化し、GFPナノボディ樹脂で捕捉してPreScissionでタグを切り、Superose 6でゲルろ過した。
結晶化/グリッド作製
cAMP結合型は3.5 mg/mlのHCN112に0.4 mMのcAMPを加え、AuFoilグリッドにVitrobot IVで凍結した。
データ収集・解析
Titan Krios(300 keV)で撮影し、cryoSPARCでC4対称を課して精密化した。

Related Articles

RNAは、cGAMPの異性体を結合の向きで見分ける

リボスイッチ変異体の結晶構造では、2種のcGAMPで塩基が逆向きに入り、A64・G68との接し方が変わる

PaperMolecular basis for discrimination of cGAMP linkage isomers by a c-di-GMP-II riboswitch variant

First authorXiaochen Xu (Zhejiang University, China)

CorrespondingDinshaw J. Patel (Memorial Sloan-Kettering Center), Aiming Ren (Zhejiang University, China)

JournalProceedings of the National Academy of Sciences of the United States of America

Published2026.10.20

LicenseCC BY-NC-ND 4.0

構造図:c-di-GMP-IIリボスイッチ変異体
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • c-di-GMP-IIリボスイッチ(RNA)RNA (77-MER)

Ligands

  • 2′,3′-cGAMP1SYcGAMP
  • cacodylate ionCACCacodylate Ion
疑問・課題
RNAは、化学構造のよく似た小分子をどう見分けるのかが問われている。ここでは環状ジヌクレオチドの異性体が題材になった。
アプローチ
c-di-GMP-IIリボスイッチの変異体と2′,3′-cGAMP・3′,3′-cGAMPの結晶構造を決め、変異体のITCで結合を比べた。
結果
2種のリガンドは同じポケットに入るが、塩基の向きが逆になり、A64・G68との相互作用が異なった。
わかったこと
ポケットの構成が同じでも、リガンドの塩基の向きの違いで接し方が変わり、RNAは連結の異なる異性体を見分ける。
残された課題
天然の2′,3′-cGAMP応答リボスイッチは、まだ見つかっていない。

Highlights

2′,3′-cGAMPではGMPが上、AMPが下に入り、GMPはA64と3本の水素結合を作る。3′,3′-cGAMPではAMPが上でA64と2本、GMPが下でG68と直接の水素結合を作る。

原文

“In 2′,3′-cGAMP-bound structure, GMP occupies the upper position, stacking between A56 and A65.”Results

リガンドのリン酸骨格に隣り合うP2のA–U塩基対は、2′,3′-cGAMP結合型では標準のワトソン・クリック対になる。3′,3′-cGAMP結合型では塩基が傾き、水素結合は1本だけになる。

原文

“In contrast, the deflected A and U bases form only one hydrogen bond in 3′,3′-cGAMP-bound state”Results

A–U対をG–C対に替えたA9G/U55C変異体でも、リガンドの向きは変わらない。一方、ITCでは2′,3′-cGAMPの結合が強まり(Kd 460→139 nM)、3′,3′-cGAMPの結合は弱まる(11.1→33.4 nM)。親和性の差は41.8倍から4.2倍に縮まった。

原文

“The orientations of the two bound ligands, 2′,3′-cGAMP and 3′,3′-cGAMP remain unchanged relative to the wild-type (WT) RNA.”Results

Lab Notes

発現系
RNAはすべてin vitro転写で調製した。
結晶化/グリッド作製
リガンドの存在下でRNAを再生し、16 °Cのシッティングドロップ蒸気拡散法で結晶化した。
データ収集・解析
構造は分子置換で決めた。条件の詳細はSI Appendixにある。

サルの抗体は、ヒトの抗体と似た向きでHCVのE2に結合した

BD抗体25種を調べ、RM3-26とE2コアの結晶構造を2.24 Åで決めた

PaperThe conserved bridging domain on HCV E1E2 glycoprotein complex is targeted by neutralizing antibodies from diverse lineages

First authorFang Chen (Department of Immunology and Microbiology and the Scripps Research Institute, USA)

CorrespondingJiang Zhu, Mansun Law (Department of Immunology and Microbiology and the Scripps Research Institute, USA), Ian A. Wilson (The Scripps Research Institute, USA)

JournalCell Reports

Published2026.08.04

LicenseCC BY-NC 4.0

構造図:HCV E2コア×抗体RM3-26
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • HCV E2コア(抗原)RM3-26 fab heavy chain
  • RM3-26 軽鎖(抗体)RM3-26 fab light chain
  • RM3-26 重鎖(抗体)Envelope glycoprotein E2
疑問・課題
C型肝炎ウイルス(HCV)のE1E2にある橋渡しドメイン(BD)を狙う抗体は、まだ十分に理解されていなかった。
アプローチ
感染者とワクチン接種したサルから得たBD抗体25種の配列・エピトープ・中和能を調べ、サルの抗体RM3-26の結晶構造も決めた。
結果
抗体は多様なB細胞系列に由来するが、CDRH3に共通のモチーフが現れ、抗原領域AR4とAR5にまたがるエピトープを認識した。
わかったこと
RM3-26はE2の後ろ層(BL)に結合し、ヒトのhcab40と似た向きをとる。BDはワクチン設計の有望な標的だと論文は述べる。
残された課題
結晶構造はE2コアとのもので、天然のE1E2上のBDは直接見えていない。

Highlights

RM3-26とE2コアの界面は592 Å2と小さく、その97%を重鎖が占める。CDRH1とCDRH3がE2の後ろ層(614〜641番付近)に主に接する。

原文

“The RM3-26-E2c3 interaction is almost entirely mediated by the antibody heavy chain, which accounts for 97% of the buried surface area”Results

RM3-26とヒトのhcab40は結合の角度が約5°しか違わず、CDRH1のSGYモチーフがE2と同じように水素結合する。種の違う抗体が似た解を取っている。

原文

“Both antibodies contain an SGY motif within CDRH1 that mediates hydrogen bonding”Results

BD抗体は、中和面(NF)を狙う抗体と組み合わせると、培養細胞での偽ウイルスの中和が加算的に強まり、一部は相乗的だった。動物での防御効果は未評価だ。

原文

“the protective efficacy of these new antibodies have not been evaluated in vivo”Limitations of the study

Lab Notes

発現系
FabはExpi293F細胞に重鎖・軽鎖のベクターを一過性に共導入して発現した。
コンストラクト
E2c3は可変領域3を除いたE2コアで、412–459、486–568、598–645番の残基からなる。
精製
CaptureSelect CH1-XLでFabを精製し、Superdex 200でゲルろ過した。
結晶化/グリッド作製
H77 E2c3とRM3-26 Fabを1:1.2で混ぜ、ゲルろ過後に蒸気拡散法で結晶化した。
データ収集・解析
APS・SSRL・NSLS-IIのビームラインで収集し、Phaser-MRによる分子置換で決定した。

Related Articles

抗GFRAL抗体は、GFRALの表面を作り替えてRETをふさぐ

Fab–GFRAL D3の結晶構造(2.3 Å)が誘導適合を示し、悪液質のマウスで効果を確かめた

PaperInduced-fit anti-GFRAL antibody ameliorates cancer cachexia and attenuates sympathetic outflow in tumor-bearing mice

First authorSohyun Kim (Korea Advanced Institute of Science and Technology (KAIST), Republic of Korea)

CorrespondingMinho Shong, Ho Min Kim (Korea Advanced Institute of Science and Technology (KAIST), Republic of Korea)

JournalScience Advances

Published2026.10.30

LicenseCC BY-NC 4.0

構造図:GFRAL D3+抗体Fab
疑問・課題
GDF15を標的にした治療はあるが、受容体GFRALを強く阻む拮抗薬は十分に得られていなかった。
アプローチ
GFRAL D3に結合する抗体(GB2Ab)のFabとD3の複合体を結晶構造解析し、ヒト化抗体をがん悪液質のマウスで調べた。
結果
結合でGFRALのヘリックスがループに変わり、疎水ポケットが現れた。KDは46 pM(親のマウス抗体)で、ヒト化抗体は摂食量と体重を回復させた。
わかったこと
抗体が結合面を作り替える誘導適合で、高い親和性、遅い解離、RETとの結合面のブロックが説明されると著者は考える。
残された課題
長期投与での治療域や神経免疫への影響は、今後の研究で調べる必要がある。

Highlights

6つのCDRがすべて、D3のα1・α2・α3・α5にまたがる立体エピトープを認識する。結合でD3の疎水コアを覆う短いヘリックス(D255–T261)がループになり、α3がずれて深い疎水ポケットが露出した。

原文

“thereby exposing a deep hydrophobic pocket otherwise occluded”Results

重鎖CDR3の3つのTyr(Y102–Y104)が、現れたポケットに深く入る。GB2AbはRETのCLD1–CLD2が触れる側を覆い、別の拮抗抗体(CLD2–CLD3の接合部側に結合する)とはエピトープが重ならない。

原文

“they recognize distinct, non-overlapping epitopes to block the GFRAL–RET interface”Results

構造に基づくヒト化として、抗体のCDRを構造が最も近い抗ErbB2抗体(PDB 1L7I)の骨格に移し、配列ベースと比べた。戻し変異で、どちらもKD 0.2 nM台まで親和性が回復した。

原文

“which successfully restored high-affinity binding with KD values of 0.23 nM and 0.25 nM, respectively”Results

Lab Notes

発現系
Fabの重鎖・軽鎖は大腸菌Top10Fのペリプラズムで発現(0.02%アラビノース、28℃)。GFRAL D3はExpi293F細胞で発現した。
コンストラクト
ヒトGFRAL D3は218–351残基。FabはキメラGB2Ab(マウスVH/VLにヒトCH1/CLを連結)。
精製
FabはNi-NTAとSEC(Superdex 200 Increase)で精製した。
結晶化/グリッド作製
FabとD3を1:2で混ぜてSECで複合体を分け、4 mg/mlに濃縮して18℃でハンギングドロップ蒸気拡散法で結晶化した。
データ収集・解析
浦項加速器研究所5CでデータをとりHKL2000で処理。Phaserの分子置換(AlphaFold予測のFabと6Q2J)、COOTとPHENIXで精密化した。

Related Articles

3-O-硫酸の隣も切れる、腸内細菌のヘパリン酵素

X線結晶構造で切断後の二糖が活性部位に収まる様子を捉え、LC-MSとNMRの結果を裏づけた

PaperFunctional characterization of a 3-O-sulfate tolerant heparin lyase from Bacteroides eggerthii

First authorTaran K Kandola (Universiti Sains Malaysia)

CorrespondingMark A Skidmore (Universiti Sains Malaysia), Liang Wu (The Rosalind Franklin Institute, United Kingdom)

JournalGlycobiology

Published2026.10.13

LicenseCC BY 4.0

構造図:BeHepI(B. eggerthii)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • ヘパリンリアーゼI(多糖分解酵素)Heparin lyase I
疑問・課題
ヘパリン分析の酵素は3-O-硫酸をもつ糖の近くをほとんど切れず、この部分の標準品を作りにくかった。
アプローチ
B. eggerthii由来のヘパリンリアーゼI(BeHepI)が五糖フォンダパリヌクスをどう切るかを、LC-MS・NMR・結晶構造で調べた。
結果
BeHepIは3-O-硫酸グルコサミンの手前も含む2か所を切った。従来のPhHepIは1か所だけだった。
わかったこと
BeHepIは、3-O-硫酸をもつ標準品の調製に向くと著者は考えている。
残された課題
ブタ粘膜ヘパリンから3-O-硫酸二糖を直接得られるかは、まだ確かめられていない。

Highlights

フォンダパリヌクスと反応させた結晶には、切断産物の不飽和二糖(GA*)が−1、−2サブサイトに見えた。3-O-硫酸はTyr93とLys99に配位し、切断で生じた二重結合の周りの密度は平面に近かった。

原文

“3-O-sulfate coordinated to Tyr93 and Lys99”Results and discussion

PhHepIの実験構造はなく、AlphaFold予測との比較では、BeHepIのループ2に8残基の伸長があり、活性部位を覆う陽性の蓋になっている。これが活性の差の一因かもしれないという推測にとどまる。

原文

“Loop 2 of BeHepI also contains an eight amino acid extension compared to PhHepI, forming an elongated cationic lid that covers its active site.”Results and discussion

NMRで切断を時間を追って測ると、AGA*↓IAの結合はA↓GA*IAよりずっと速く切れた。3-O-硫酸の隣も切れるが、ほかの部位が優先される。

原文

“Quantitation of ΔUA 1H peaks over time revealed that the AGA*↓IA-OMe site was cleaved substantially more rapidly than A↓GA*IA-OMe”Results and discussion

Lab Notes

発現系
大腸菌C41(DE3) pLysSでpET-22b(+)から発現し、1 mM IPTGで誘導。
コンストラクト
N末端のリーダー配列を除いた残基21–394(WP_004294077.1)。
精製
HisTrap FF、サイズ排除(S75)、陽イオン交換(Resource S)の順。緩衝液に5 mM CaCl2を含む。
結晶化/グリッド作製
2 M硫酸アンモニウム、0.1 M酢酸Na(pH 5.0)で結晶化。複合体はフォンダパリヌクスの粉末を結晶の滴に直接加え、5分後に回収。
データ収集・解析
Diamond Light Sourceで収集。3IKWを探索モデルにMOLREPで位相を決め、REFMAC5で精密化。

DTX4のRINGは、結晶中でドメインを入れ替えた二量体を作る

ADP-リボース結合型のRING-DTCを2.8 Åで解析し、ADP-リボースへの結合も測った

PaperStructural and biophysical studies of human E3 ligase Deltex 4

First authorMilan M. Fowkes (University of Oxford)

CorrespondingMilan M. Fowkes, Jonathan M. Elkins (University of Oxford)

JournalBiochemical Journal

Published2026.10.27

LicenseCC BY 4.0

構造図:DTX4(ヒト)
疑問・課題
E3リガーゼDTX4が基質結合でどう働くかはほとんど分かっておらず、実験で決めた構造もなかった。
アプローチ
DTX4のRING-DTCドメインをADP-リボースとの複合体で結晶化し、DTCドメインの結合を熱量測定で調べた。
結果
RINGドメインの前半が隣の分子と入れ替わった二量体になっていた。DTCドメインはADP-リボースに結合し(KD 44.9 μM)、ADPには結合しなかった。
わかったこと
DTX4のDTCドメインはDTX1・DTX2と同様にADP-リボースを認識する。RINGのドメインスワップが働きに関わるかは未確定だ。
残された課題
二量体が溶液中や細胞内でも生じ、機能を持つのかは分かっていない。

Highlights

DTX4で初めて報告された構造。RINGドメインの前半(383–428)が結晶中の隣のDTX4分子と結合し、亜鉛イオン1個が2つの分子の残基で配位されていた。

原文

“with one Zn2+ ion coordinated by residues from two different DTX4 molecules”Results

入れ替わりは、DTX4のループ(422–428)がDTX1より2残基短いために可能になると著者は述べる。ただしゲルろ過では約32 μMまで単量体で、二量体は結晶化の高濃度で生じた可能性がある。

原文

“The formation of the dimer is made possible by DTX4 possessing a loop (residues 422–428) that is two amino acids shorter than the equivalent loop in DTX1”Results

二量体のRINGをE2~Ub複合体の模型に重ねても、E2の結合面はふさがれない。一方、ADP-リボースの3'OHとユビキチン側の結合との距離は11.0 Åで、DTX2の7.7 Åより長い。結晶中の詰まり方の影響が大きい可能性もある。

原文

“the difference in distance is likely strongly influenced by crystal packing”Results

Lab Notes

発現系
ヒトDTX4のGln383–Asp619を、His6-TEVタグ付きで大腸菌に発現した。
コンストラクト
RING-DTCドメイン(383–619)。複数の切り詰めのうち2つだけがタンパク質を発現した。
精製
Ni-IMACでタグ付きタンパク質を精製し、TEVでタグを外して再びNi-IMACにかけ、Superdex 75のSECで精製した。
結晶化/グリッド作製
10 mg/mlのタンパク質を1.5 mMのADP-リボースと氷上で10分混ぜ、Morpheus fusionスクリーンのH11の条件で結晶を得た。
データ収集・解析
Diamond Light SourceのI03でデータを集め、XDSとAIMLESSで処理し、DTX1の構造を鋳型にPhaserの分子置換、REFMAC5で精密化した。

合成した15化合物のうち5つが、PKAをナノモルで阻害した

断片をサブポケットごとに成長させる計算法で設計し、最も強い化合物の結晶構造が予測とよく重なった

PaperSubpocket-Aware Fragment-Based Docking Pipeline for Kinase Ligand Design: Methodology and a PKA Case Study

First authorKatharina Buchthal (Saarland University, Germany)

CorrespondingWibke E. Diederich (Philipps-Universität Marburg, Germany), Andrea Volkamer (Saarland University, Germany)

JournalJournal of Chemical Information and Modeling

Published2026.10.15

LicenseCC BY 4.0

構造図:PKA(ハムスター)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • PKA(触媒サブユニット)cAMP-dependent protein kinase catalytic subunit alpha

Ligands

  • 化合物30A1JVM4-[3-(1,2,4-triazol-1-ylmethyl)phenyl]-1~{H}-pyrrolo[2,3-b]pyridine
疑問・課題
断片を使うキナーゼ阻害剤の設計は、キナーゼ特有の構造情報を生かしにくい。断片の全組み合わせを調べるのも計算が重い。
アプローチ
キナーゼ向けの断片ライブラリKinFragLibを、サブポケットの情報を使うテンプレートドッキングで段階的に成長させ、PKAに適用した。
結果
33758分子を生成し、合成した15化合物のうち5つのIC50が2〜3桁のナノモルだった。最小は58 nMだった。
わかったこと
最も強い化合物の結晶構造は予測の結合様式とよく重なり、著者は構造に基づく断片設計を拡張できる探索法とみている。
残された課題
キナーゼ選択性は調べておらず、今後キナーゼパネルでの評価が必要だ。

Highlights

ATP結合部位を6つのサブポケットに分け、アデニン結合部位(AP)を核に、FP、GAの順に断片を足していく。各段階で上位の候補だけを残すビーム探索で、128 CPUを使い約17時間で約6万分子を列挙した。

原文

“The total runtime in this setup was approximately 17 h with close to 60000 enumerated molecules.”Results and Discussion

合成した15化合物のうち7つが100 μMでPKA活性を半分以下にし、5つが10 μMで残存活性約25%以下だった。IC50は化合物30の58 nMから39bの940 nMまで。ただし試した化合物は計算上位から人が選んだもので、偏りのない標本ではない。

原文

“therefore do not represent an unbiased sample of the ranked compound set”Results and Discussion

化合物30との共結晶構造(9TEC、1.38 Å)では、リガンドは予測の結合様式とよく重なった。Lys72とThr183の側鎖、Glu121とVal123の主鎖と4本の水素結合を作る。予測にないPhe54とのT字型π–π相互作用も見えた。

原文

“the crystallized ligand matches the predicted docking pose well”Results and Discussion

Lab Notes

発現系
CHO-PKAを大腸菌で発現した。SLB培地で291.15 K、一晩培養した。
コンストラクト
7xHisタグつきのPKAを使い、TEVプロテアーゼでタグを切った。
精製
Ni-NTAカラム、TEV処理後の再カラムの後、Mono Sの陽イオン交換でリン酸化の程度の違うPKAを分けた。
結晶化/グリッド作製
PKA、PKI、リガンドを混ぜ、微小結晶シーディングを併用して277 Kのシッティングドロップ法で結晶化した。
データ収集・解析
DESYのP13で1.38 Åのデータを集め、5N1Fを鋳型に分子置換した。XDSAPPで処理し、Phenixで精密化した。

Related Articles

テラゾシンは、PGK1が閉じるのを妨げて開いた状態に保つ

NMR滴定と、NOEだけで決めたNMR²構造が、X線構造と同じ結合部位を溶液中で示した

PaperTerazosin Activates or Inhibits Human Phosphoglycerate Kinase 1 on a Dose-Dependent Basis: Mechanistic and Structural Insights by NMR

First authorMatthias Bütikofer (Institute for Molecular Physical Science, Switzerland)

CorrespondingRoland Riek (Institute for Molecular Physical Science, Switzerland), Julien Orts (University of Vienna, Austria)

JournalJACS Au

Published2026.09.24

LicenseCC BY 4.0

構造図:PGK1(ヒト)
疑問・課題
テラゾシンは低濃度でPGK1の働きを高め、高濃度で抑えるが、X線構造の結合部位はADPと一部重なっていた。
アプローチ
NMR滴定でPGK1の開閉を追い、リガンドとタンパク質の間のNOEだけで複合体の構造を決めるNMR²法を使った。
結果
テラゾシン(Kd 13 μM)はADPで閉じたPGK1を開く方向へ戻した。NMR²構造はX線構造と同じ結合様式に収束した。
わかったこと
テラゾシンは別の結合部位でなく、通常の活性部位でPGK1の開閉の平衡を変えて働くと、論文は結論している。
残された課題
テラゾシンの中央部(ピペラジン環)には、距離の拘束が直接得られていない。

Highlights

テラゾシンはADPと同じヌクレオチド結合ドメインに結合し、3PG-MgF3−とADPで閉じたPGK1のスペクトルを、開いた状態のパターンへ戻した。低濃度で産物の放出を助け、高濃度で競合阻害する機構と合う。

原文

“indicating that a reversed transition is induced by terazosin addition”Results and Discussion

NMR²は、タンパク質の全共鳴を帰属せず、リガンドとメチル基の間のNOEだけで構造を決める。44.5 kDaのPGK1に使い、Ala・Leu・Ile・Thrの選択的アンラベルで一部のメチル基を帰属して拘束を補った。

原文

“we prepared 13C,15N labeled PGK1 samples with selectively unlabeled residues (alanine, leucine, isoleucine, threonine)”Results and Discussion

NMR²構造(32PI)は、X線構造(4O33)とキナゾリン環・ピペラジン環の配置が近く、フラン環だけ少し傾く。溶液中で強く占有される別の結合部位の証拠はなかった。

原文

“with no evidence for a distinct, well-defined secondary binding site that would have been strongly populated under solution conditions”Results and Discussion

Lab Notes

発現系
hPGK1-pET28aをBL21 star大腸菌のM9最少培地(15Nまたは15N,13C)で発現し、0.5 mM IPTG、25℃で誘導した。
コンストラクト
選択的アンラベルは、培地にLeu・Ile・Thr(1 g/L)またはAla(0.5 g/L)を加えて行った。
精製
ニッケル親和性精製、TEVでHisタグ除去、逆ニッケル親和性の後、PD10でNMR緩衝液に交換した。
結晶化/グリッド作製
フィルターNOESYは、800 μMの13C,15N-hPGK1に1 mMのテラゾシンと1 mMの3PGを加えて測定した。
データ収集・解析
900 MHzでフィルターNOESYを測定。NMR²は4O33を出発構造に計算し、HADDOCK 2.4で水中の精密化を行った。

Structure-Based Study2026.10.302 Articles

二ヘム酵素の電子は、トリプトファンなしでも運ばれる

MbnHの変異体解析で、ヘムのプロピオン酸基を通る別の電子の通り道が見えた

PaperDeciphering Inter-Heme Electron Transfer Pathways in a Diheme Peroxidase from Methane-Oxidizing Bacteria

First authorRiley E. Stein (University of Illinois Urbana Champaign)

JournalJournal of the American Chemical Society

Published2026.10.10

LicenseTDM

構造図:MbnH(メタン酸化菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 6E1C(論文が使った既存の構造)

Proteins & Nucleic Acids

  • Di-heme enzyme

Ligands

  • ヘム cHECHeme C
疑問・課題
二つのヘムの間で電子を運ぶのに、間にあるトリプトファンは欠かせないのかが問われていた。
アプローチ
既存のMbnH結晶構造(6E1C)で電子移動の経路を計算し、Trp113とArg283の変異体を分光と速度論で調べた。
結果
Trp113かArg283の単独変異体はどれも野生型と同じ速度でbis-FeIVを作り、二重変異体W113H/R283Lだけが作れなかった。
わかったこと
MbnHでは、Trp113を通る経路とヘムのプロピオン酸基を通る非共有結合の経路が重なって働き、片方が壊れても電子移動は保たれる。

Highlights

経路計算では、野生型はTrp113を通る経路が最も強く結合した。Trp113を別の残基に替えると、Phe282・Arg283からヘムのプロピオン酸基へ抜ける経路が、同程度の結合の強さで現れた。

原文

“In the WT protein, the intervening tryptophan, Trp113, is calculated to be the most coupled pathway irrespective of an electron tunneling or hopping mechanism”Results

Trp113とArg283の単独変異体はどれもbis-FeIVに特徴的な近赤外の吸収を示した。二重変異体W113H/R283Lだけはこの吸収が出ず、プロピオン酸経路と合わせて両方を壊すとbis-FeIVができなかった。

原文

“In contrast, in the W113H/R283L double mutant, we failed to observe a nIR band under identical conditions”Results

bis-FeIVを作れる変異体だけが基質MbnPを修飾でき、二重変異体で共発現したMbnPの銅の結合は15%未満だった。bis-FeIVが基質修飾の触媒中間体だと示す結果だ。

原文

“Copper-binding measurements corroborate this result.”Results

Lab Notes

発現系
MbnPとMbnHを大腸菌BL21-star (DE3)に共発現し、18°Cで約15時間発現させた。
コンストラクト
Trp113をAla・Ser・His・Tyr・Pheに、Arg283をLys・Leuに置換し、二重変異体W113H/R283Lも作った。
精製
Strep-Tactin 4Flow樹脂で精製し、Superdex 200 pgのゲルろ過で仕上げた。
データ収集・解析
UV-Vis-nIR分光とストップトフローで速度を測り、電子移動の経路計算はHARLEMで行った。

19F–19F NOESYで、タンパク質中の約5 Å以内の距離が測れる

シクロフィリンAに入れた二フッ素化トリプトファンで、F–F距離を小分子のX線構造と比べて確かめた

PaperAssessment of Attainable Distances in Proteins by Through‐Space 19F–19F Couplings

First authorIker Hernández (University of the Basque Country (EHU), Spain)

CorrespondingAngela M. Gronenborn (University of Pittsburgh School of Medicine, USA)

JournalChemistry (Weinheim an Der Bergstrasse, Germany)

Published2026.07.24

LicenseCC BY 4.0

疑問・課題
液体NMRでは、フッ素どうしの空間を通した結合を報告した例がほとんどなかった。
アプローチ
二フッ素化トリプトファン3種をヒトシクロフィリンAに入れ、19F–19F NOESYの積み上がり曲線から交差緩和速度を求めた。
結果
5,6位と4,5位の体では2.63〜2.73 Å、4,6位では4.26〜4.34 Åと求まった。前2者はX線構造の距離と誤差3%以内で合った。
わかったこと
近い距離(2.5〜3.0 Å)は容易に測れ、14.1 Tでの上限は約5 Åだった。タンパク質どうしやリガンドとの相互作用の解析に使える可能性がある。
残された課題
4,6位の体は距離が大きく、NOEは検出限界に近づいた。

Highlights

二フッ素化トリプトファン3種(4,5・4,6・5,6位)を化学合成し、Trpを1つだけもつCypAに部位特異的に入れた。インドール環の上でF–F距離が決まっているので、測定の基準になる。

原文

“We decided to focus on di‐fluoro Trp amino acids since their defined geometry results in fixed fluorine”Results and Discussion

積み上がり曲線の初期の傾きから交差緩和速度を出せば足りた。直線近似と双曲線正接近似で、誤差は同程度だった。

原文

“As can be appreciated, all errors are comparable, suggesting that linear extrapolation of the initial NOE build‐up curves suffices.”Results and Discussion

4,6位の体は交差ピークが現れるまで長い混合時間が要り、1秒を過ぎてやっと頭打ちになった。4,5位の体は2本のシグナルが近く、強度の読み取りが難しかった。

原文

“For the 4,6‐ variant, longer mixing times were required to detect NOE cross peaks, and they plateaued only after 1 s (Figures 2 and S18)”Results and Discussion

Lab Notes

発現系
大腸菌の標準的な発現系で、二フッ素化Trpを入れたCypAを作った。
コンストラクト
二フッ素化Trp(4,5・4,6・5,6位)を化学合成して取り込んだ。
データ収集・解析
25°Cで、リサイクル遅延2.5または2.6秒、1H脱共役なしで19F–19F NOESYを測った。