
構造生物学者のための情報収集サポートサイト
Structure-Based Study
27 Articles既存の構造を使って仕組みの解明や創薬に迫った注目の研究。
2026.11.051
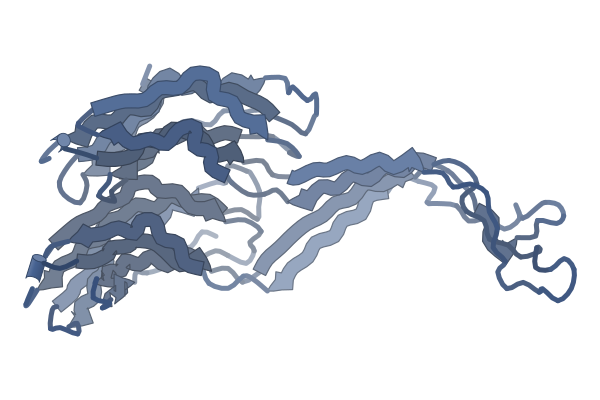
WRAP-MspA (M. smegmatis porin A)
設計タンパク質WRAPで包むと、膜タンパク質が水に溶ける
既存構造をもとに設計し、抗酸菌のポリンMspAを包んだ複合体をクライオ電顕で2.95 Å解析した
2026.11.031
Human GSK3β
GSK3βの結晶構造111件は、8つの状態に分けられる
既存のPDB構造をすべて分類し、リガンドの種類と活性化ループの違いを関連づけた
2026.11.011
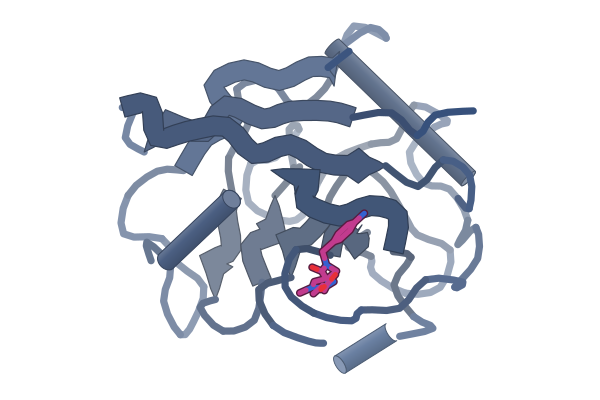
Reactive arginines; cyclophilin A R55
ニンヒドリンが、アルギニンを狙う共有結合の弾頭になる
反応性アルギニンを6,800以上分類し、既存のPDB構造を使ってシクロフィリンAを狙う分子を設計した
2026.10.311
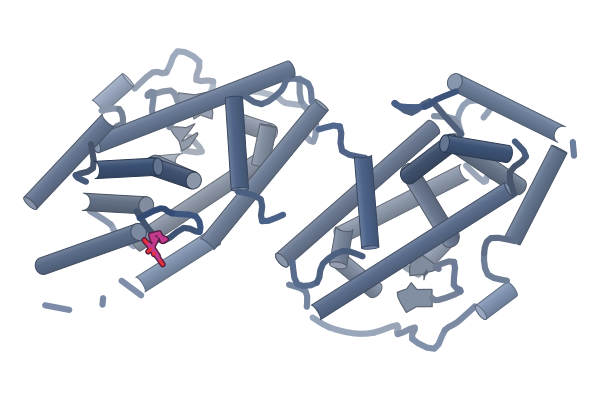
Nur77 (NR4A1) ligand-binding domain
Nur77 のリガンド結合ドメインは、2つの状態で共存している
NMR と変異体解析で、H1–H3 ループ周辺の弱い相互作用網が状態の比率を保つことが分かった
2026.10.302
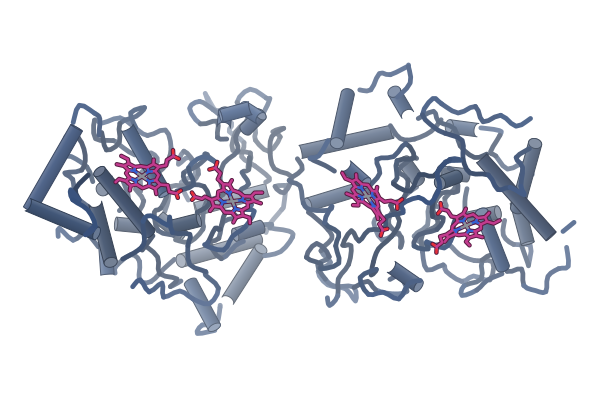
MbnH (M. trichosporium OB3b)
二ヘム酵素の電子は、トリプトファンなしでも運ばれる
MbnHの変異体解析で、ヘムのプロピオン酸基を通る別の電子の通り道が見えた
Human cyclophilin A (CypA)
19F–19F NOESYで、タンパク質中の約5 Å以内の距離が測れる
シクロフィリンAに入れた二フッ素化トリプトファンで、F–F距離を小分子のX線構造と比べて確かめた
2026.10.292
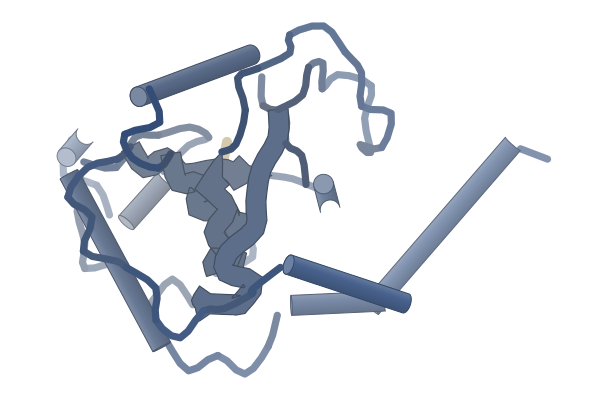
Human YTHDF1 YTH domain (YTHDF1–3)
エラグ酸は、YTHDF3種すべてのm6A認識を妨げる
共結晶構造でm6A結合ポケット隣の結合部位を示し、三陰性乳がんの増殖も抑えた
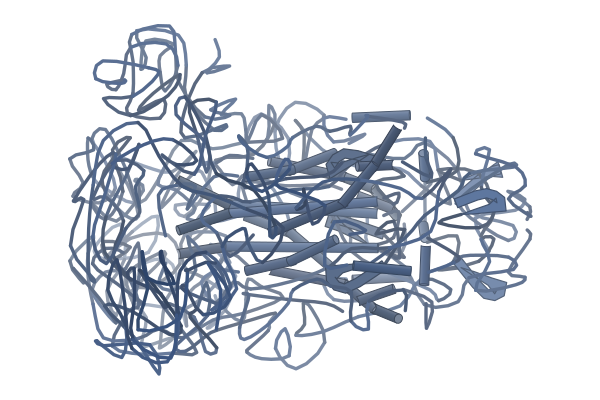
PDCoV spike (porcine deltacoronavirus)
胃酸のpHで、PDCoVのスパイクが受容体に結合しやすくなる
pH 4.0のクライオ電顕構造で、受容体結合ドメインが約14°外へ回っていた
2026.10.282
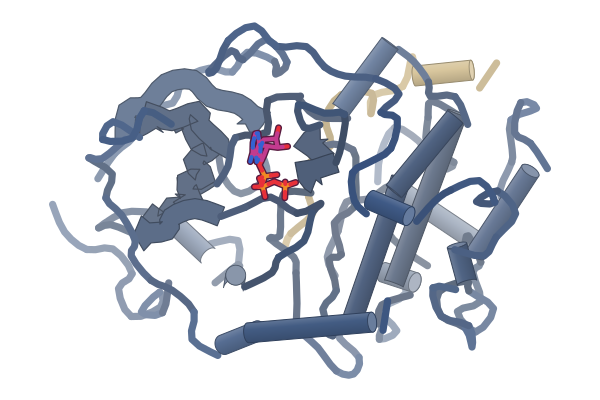
Protein kinase A catalytic subunit (~43 kDa)
小さなキナーゼのATP結合部位が、鋳型照合で見えた
既知の構造を鋳型に粒子の向きを決める2DTMで、公開データから約43 kDaの酵素を再構成した
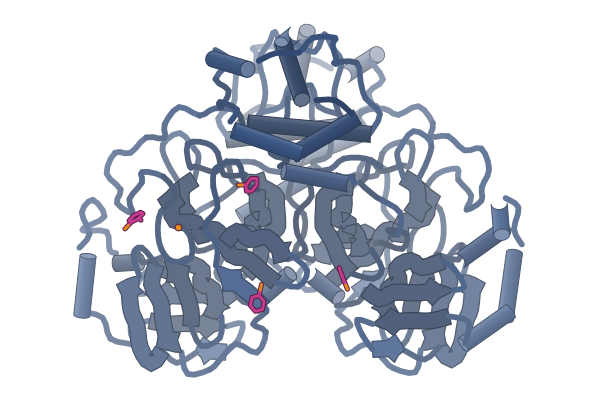
SARS-CoV-2 main protease (Mpro)
エブセレンは、C300への結合でMproの二量体を不安定にする
ペプチド模倣阻害剤は二量体を安定にする。ネイティブMSとHDX-MSで、阻害のしかたの違いを分けた
2026.10.261
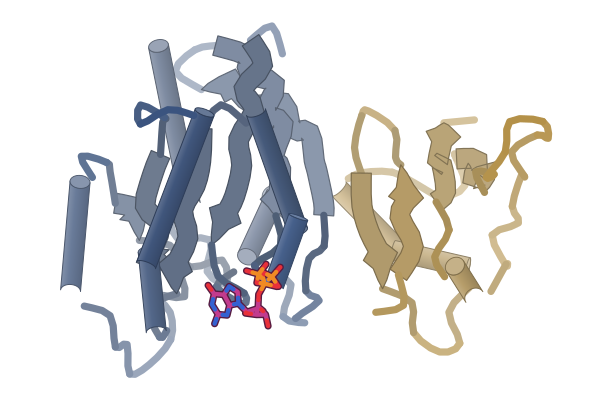
KRAS–CYPA with RAS(ON) inhibitors (human)
RAS阻害剤への耐性は、薬が結ぶ複合体を壊す変異で起こる
患者検体の耐性変異を結晶構造と変異体で解析し、Y64変異にも効く化合物を示した
2026.10.251
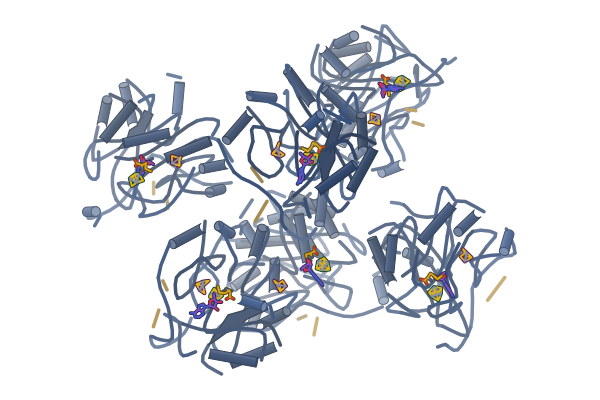
Lipoyl synthase LipA (E. coli)
リポ酸合成酵素は、Ser308が鉄を離すかどうかで反応が分かれる
既存の結晶構造を土台に、変異体の活性と分光で調べた
2026.10.241
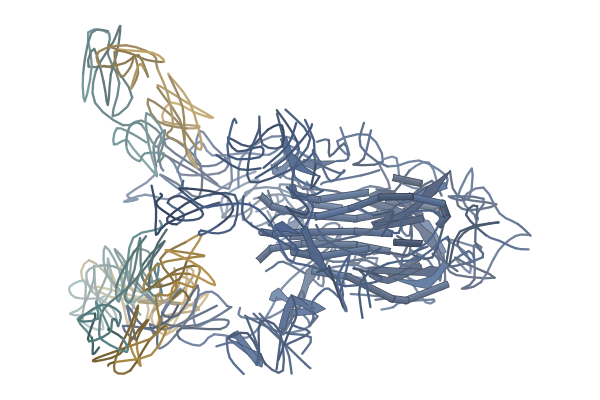
SARS-CoV-2 spike RBD and antibodies
RBDを下に固定する抗体は、マクロファージへの侵入を起こさなかった
公開済みの抗体・スパイク複合体の構造を重ねて立体衝突を数え、偽ウイルスの侵入実験と照らした。
2026.10.233
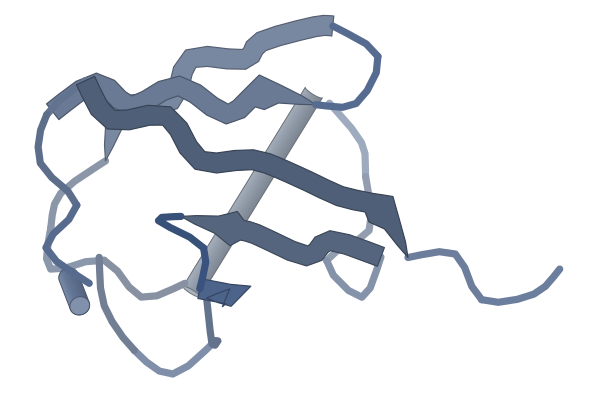
Ubiquitin, CspA, SN and 7 other proteins
高いpHのNMRで、タンパク質の水素結合を見分ける
既存の構造をもつ10種で、残る信号が水素結合と約91%一致した
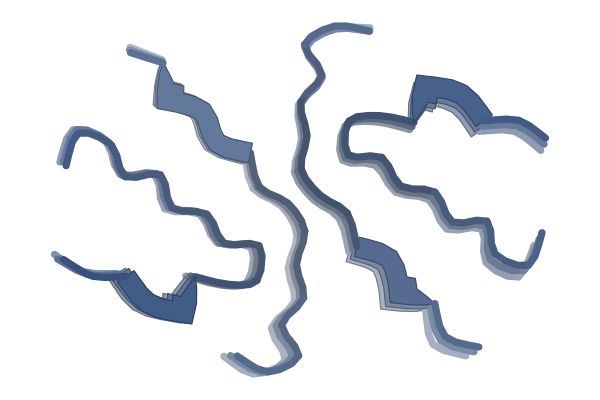
Tau jR2R3-P301L peptide fibril
タウの線維化は、V300付近の1か所から始まる
既存のクライオ電顕構造を使い、NMRとEPRで結合の順を追った
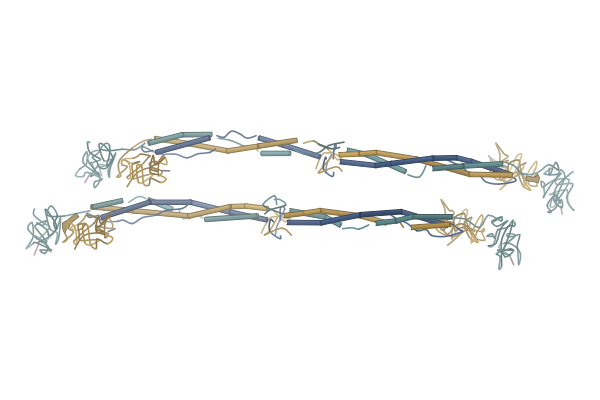
SfbI thioester domain (group A Streptococcus)
細菌の接着ドメインは、pHで共有結合を外す
SfbI-TEDとフィブリノーゲンの結合は、pH6.0で速くほどける
2026.10.221
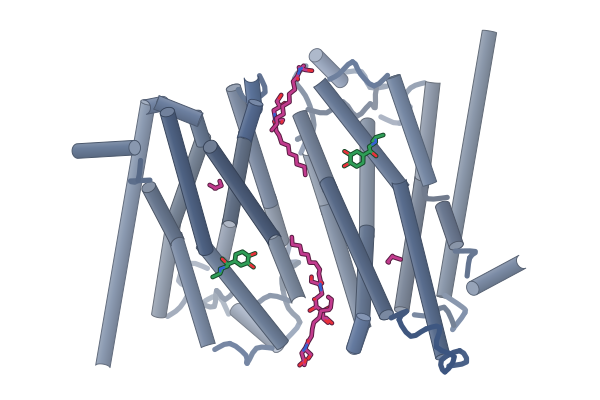
β1-adrenergic receptor (β1AR, turkey)
阻害薬AS408は、βアドレナリン受容体の細胞内側を切り離す
既存の構造を土台に、溶液NMRと変異体で調べた
2026.10.212
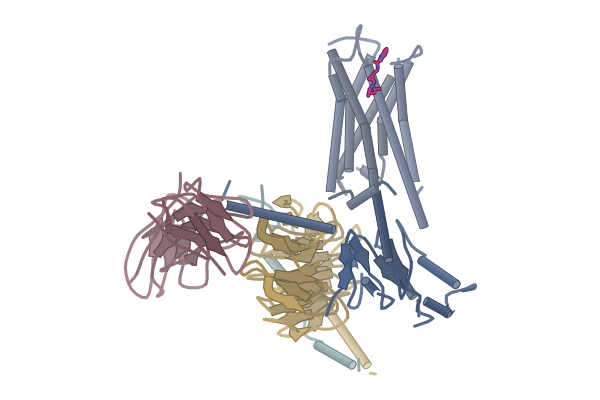
Dopamine D3 receptor (human)
D3受容体はGαiと共役せず、Gαoを選ぶ
キメラと変異体で、Gαのα5ヘリックスとICL2が選択性を決めると示した
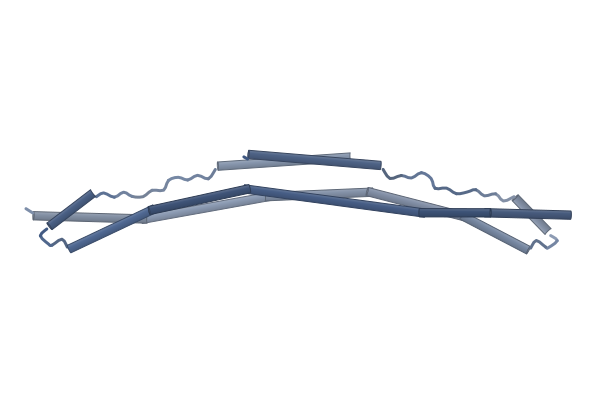
TRIM25 coiled-coil domain
PELDORで、17.3 nmの距離を測れた
重水素化と測定条件の最適化で、TRIM25 の曲がりを溶液で捉えた
2026.10.203
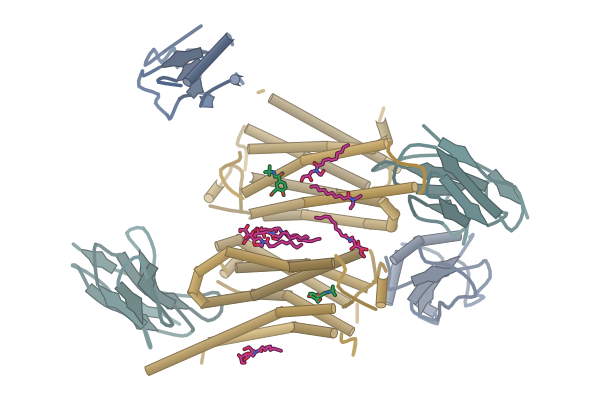
Beta-1 adrenergic receptor (Meleagris gallopavo)
ナノボディで見分ける、β1ARがリガンドごとに取る形
既存のX線構造を手がかりに、ネイティブMSでリガンド特異的な状態を測った
AMPA receptor (brain slice lamella)
Fabに金粒子を固定し、脳切片のAMPA受容体を位置づける
クライオETで、金ナノ粒子付きFabを目印に脱感作時の形をサブナノメートルで調べた
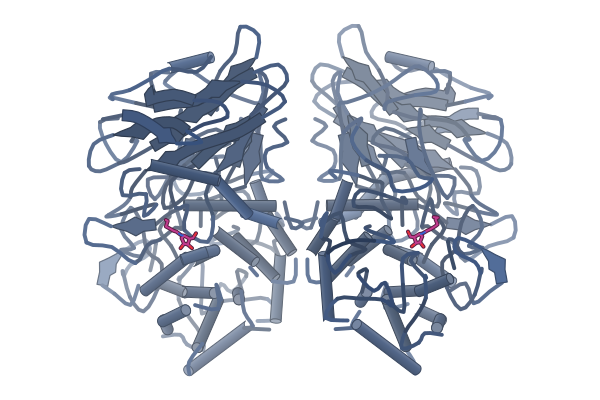
GBA2 (human) / TxGH116 (T. xylanolyticum)
GBA2だけを止める、脳に届く共有結合型阻害剤
N-アルキルアジリジン5はマウス脳のGBA2を阻害し、細菌相同体との結晶構造で共有結合を確かめた
2026.10.191
STV-C8 (AI-designed protein assembly)
AIが設計したタンパク質で、RNA運搬体を作った
設計集合体100種超を試し、STV-C8が運搬効率で既存の運搬体を上回った。構造はクライオETで大きさを確認
2026.10.181
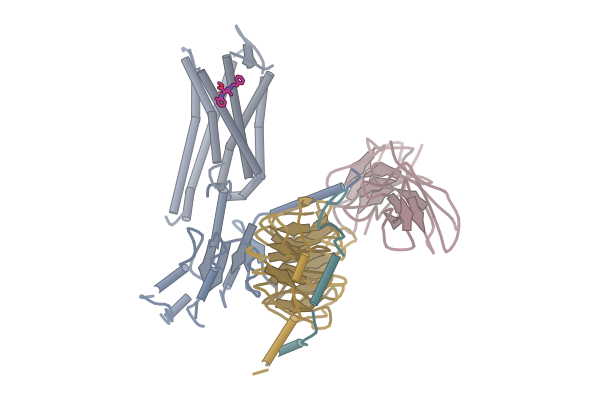
μOR–Gi complex (mouse, human)
オピオイドの効力は、Gαドメインの開きやすさに表れる
既存の構造を使い、一分子FRETでμOR–Gi複合体のAHDの動きを測った。強い作動薬ほど開きが速い
2026.10.171
Human ZBP1 Zα domain
ZBP1は、できあがったZ型RNAにだけ結合する
NMR・CD・ITCで調べると、無修飾のRNAをZ型に変換できなかった
2026.10.122
Mouse CBP NCBD
フルオロプロリンの立体が、NCBDの結合力を左右する
既存のNMR構造2KKJなどと比べ、19F NMRでヘリックスの向きを調べた
Human PD-L1 · avelumab
アベルマブの結合面は、HDX-MSと固体NMRでも結晶構造と一致した
既存の5GRJと比べて確かめ、PD-L1のC末端の保護も見えた