Contents

3 Articles
  1. Picked up·Structure Update

    Gdi-1 CP group II intron (G. diazotrophicus)

    環状RNAを作るリボザイムは、一価イオンを足場に活性部位を組み直す

    8つのクライオ電顕構造が、分岐からバックスプライシングへ移る金属イオンの入れ替わりを示した
  2. Structure Update

    T. denticola NanH sialidase (GH33)

    細菌のシアリダーゼは、補体のシアル酸を外して免疫を逃れる

    T. denticola の NanH を結晶構造と血清殺菌試験で調べ、触媒ドメインの共通性も示した

  3. 構造図:Nur77 LBD(NR4A1)

    Structure-Based Study

    Nur77 (NR4A1) ligand-binding domain

    Nur77 のリガンド結合ドメインは、2つの状態で共存している

    NMR と変異体解析で、H1–H3 ループ周辺の弱い相互作用網が状態の比率を保つことが分かった

Picked up Today’s Structure2026.10.311 Article

環状RNAを作るリボザイムは、一価イオンを足場に活性部位を組み直す

8つのクライオ電顕構造が、分岐からバックスプライシングへ移る金属イオンの入れ替わりを示した

PaperMetal-ion coordination drives active-site remodeling for backsplicing in circularly permuted group II introns

First authorJie Zhang (Inner Mongolia University, China)

CorrespondingJinbiao Ma (Fudan University, China)

JournalNucleic Acids Research

Published2026.10.29

LicenseCC BY-NC 4.0

構造図:Gdi-1 イントロン(酢酸菌)
疑問・課題
分岐反応のあと、バックスプライシングへ移るときに活性部位がどう組み直されるかは、よく分かっていなかった。
アプローチ
Gdi-1 イントロンを K+/Mg2+・K+/Ca2+・Cs+/Mg2+ の3条件に置き、クライオ電顕で8つの状態の構造を決めた。
結果
バックスプライシング直前の構造に、新しい一価イオン結合部位 K3 が見つかった。K+/Ca2+ では K3 も M2 も見えなかった。
わかったこと
K3 が γ–γ′ 相互作用を安定させ、4つの金属イオンからなる触媒の核が再構築されて、第2段階の活性部位ができる。

Highlights

分岐反応の直後に触媒金属イオン M1 が外れ、M2 だけが残る。D6 が下向きに動くと bpA が約20 Å回って G209 が遠ざかり、3′ スプライス部位が活性部位に入る。

原文

“K1 and K2 occupy positions nearly identical to those observed in the pre-branching state, whereas M1 is no longer detected.”Results

K3 は C84・G210・U134 の間にあり、バックスプライシング直前の状態だけで見える。Cs+ に置き換えた構造でも同じ位置に Cs3 が入り、一価イオンという割り当てを支える。

原文

“Located between C84 of the 2-nt bulge, G210 in the 5′SS region, and U134 of the 3′SS, this density resides immediately adjacent to both K1 and M1”Results

γ–γ′ 相互作用を壊す置換は環状RNAの生成を大きく下げ、塩基対を戻す補償変異でほぼ野生型の活性に戻った。この相互作用が第2段階の活性部位に必要だと示す。

原文

“Together, these structural and biochemical data demonstrate that formation of the γ–γ′ interaction is required for productive assembly of the second-step active site, thereby promoting efficient backsplicing.”Results

Lab Notes

精製
in vitro 転写した RNA を変性尿素 PAGE で分け、切り出して溶出・精製した。
結晶化/グリッド作製
RNA を 20 mM の MgCl2 または CaCl2 とともに 37°C で30分置き、約15 µM に濃縮した。Vitrobot Mark IV で凍結した。
データ収集・解析
Krios G4(300 kV)と Falcon 4i で撮影し、cryoSPARC v4 で解析した。モデルは Phenix.real_space_refine で精密化した。
Structure Update2026.10.311 Article

細菌のシアリダーゼは、補体のシアル酸を外して免疫を逃れる

T. denticola の NanH を結晶構造と血清殺菌試験で調べ、触媒ドメインの共通性も示した

PaperBacterial sialidases subvert the complement system through desialylation

First authorKurni Kurniyati (Virginia Commonwealth University, USA)

CorrespondingChunhao Li (Virginia Commonwealth University, USA)

JournalProtein Science : A Publication of the Protein Society

Published2026.10.29

LicenseCC BY 4.0

構造図:NanH(T. denticola)
疑問・課題
細菌のシアリダーゼが補体系にどう影響するかは、よく分かっていなかった。
アプローチ
6種のシアリダーゼで補体タンパク質の脱シアル化を調べ、T. denticola の NanH は結晶構造まで決めた。
結果
6種すべてが補体タンパク質のシアル酸を外した。NanH で前処理した血清では、補体の活性化と菌への沈着が減った。
わかったこと
シアリダーゼは補体因子のシアル酸を外して菌を血清殺菌から守る。この仕組みは5種の病原菌の6酵素に共通していた。

Highlights

NanH は N 末端の β-grasp ドメインと、六枚羽根 β プロペラの触媒ドメインからなる。活性部位には Tyr463・Glu338・Asp165 と、3つの Arg(140・354・423)が並ぶ。

原文

“Td‐NanH comprises two major domains: an N‐terminal domain (N0471; residues 44–121) with an undefined function and a C‐terminal catalytic domain (C0471; residues 122–543) adopting the canonical six‐bladed β‐propeller fold characteristic of GH33 sialidases”Results

Neu5Ac との複合体では、C4 水酸基が Arg159・Asp165・Asp205 と水素結合し、N-アセチル基は疎水性のポケットに入る。DANA は遷移状態アナログの阻害剤で、ほぼ同じ向きに結合する。

原文

“DANA binds in an almost identical pose”Results

D165A 変異体と 3′-シアリルラクトースの複合体(1.81 Å)では、末端のシアル酸が DANA とほぼ同じ形で結合した。結合しても大きな構造変化はなく、活性部位は硬い足場として働く。

原文

“Structural comparisons across unliganded, substrate‐bound, and inhibitor‐bound states reveal a rigid active‐site scaffold”Results

Lab Notes

発現系
Lemo21 (DE3) 大腸菌で発現し、IPTG 1 mM で18°C、16時間誘導した。
コンストラクト
野生型と、触媒活性を弱めた D165A 変異体を作った。
結晶化/グリッド作製
Berkeley Screen の G12 条件(Bis-Tris Propane・クエン酸・CdCl2・PEG400)を最適化し、シーディングで結晶化した。
データ収集・解析
APS の 23-ID-B / 23-ID-D で100 K の回折データを集め、Xia2/DIALS で処理した。AlphaFold2 モデルを使い Phaser で分子置換した。

Structure-Based Study2026.10.311 Article

Nur77 のリガンド結合ドメインは、2つの状態で共存している

NMR と変異体解析で、H1–H3 ループ周辺の弱い相互作用網が状態の比率を保つことが分かった

PaperUncovering a cryptic allosteric hub governing energy landscape plasticity within the Nur77 ligand-binding domain

First authorLang Chen (Chinese Academy of Sciences, China)

CorrespondingLing Jiang, Yixiang Liu (Chinese Academy of Sciences, China)

JournalMagnetic Resonance Letters

Published2026.10.15

LicenseCC BY-NC-ND 4.0

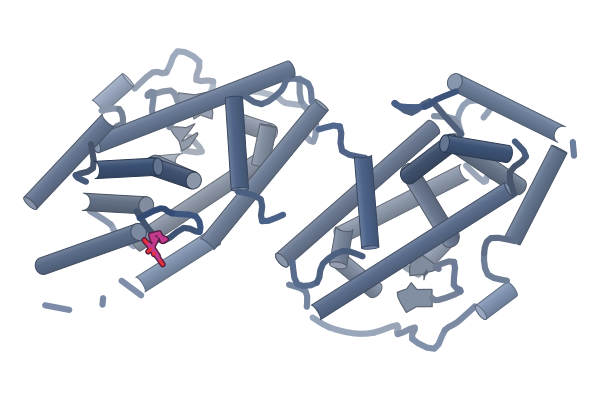
構造図:Nur77 LBD(NR4A1)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 4JGV(論文が使った既存の構造)

Proteins & Nucleic Acids

  • Nur77 LBD(核内受容体)Nuclear receptor subfamily 4 group A member 1

Ligands

  • THPNT941-(3,4,5-trihydroxyphenyl)nonan-1-one
疑問・課題
Nur77 はリガンドの入る空洞が側鎖で埋まっており、アロステリーの仕組みはよく分かっていなかった。
アプローチ
LBD を 1H–15N HSQC と 19F NMR で調べ、既存の結晶構造 4JGV に対応づけた。変異体と THPN の滴定も行った。
結果
apo の LBD は主状態が約56%、副状態が約44%で共存した。副状態は W420 周辺の溶媒への露出が大きかった。
わかったこと
H1–H3 ループと周辺の弱い相互作用網が2状態の比を保つ。THPN には溶媒に開いた副状態のほうが結合しやすい。
残された課題
各状態の高分解能の構造は未解明で、クライオ電顕や溶液構造の決定が必要だと論文は書いている。

Highlights

H1–H3 ループの該当部分を Nurr1 のものに替えると2状態が1つになった。逆に Nurr1 へ Nur77 のループを移しても2状態にならず、ループは必要だが十分ではない。

原文

“These results demonstrate that the H1–H3 loop is a necessary element for the conformational heterogeneity observed in Nur77, as its replacement by the Nurr1 loop completely eliminates the conformational heterogeneity. However, the reciprocal experiment shows that the loop alone is not sufficient to confer the two-state behavior.”Results

H372・G376・P377・S413・C465 の周りの弱い相互作用網に点変異を入れると、どの変異でも2状態は1つになった。P377A は露出した副状態に偏った。

原文

“the HSQC data unambiguously show that the minor state is preferentially stabilized”Results

THPN の滴定では副状態の信号が先に減った。副状態に偏る P377A は、野生型より2.5倍強く THPN に結合した。ただし試した低分子は THPN だけである。

原文

“the P377A mutant exhibited a 2.5-fold higher binding affinity than the wild-type protein”Results

Lab Notes

発現系
大腸菌 BL21 (DE3) で発現し、IPTG 0.5 mM、20°C で20時間誘導した。15N は M9 培地、19F は 5-フルオロインドールで標識した。
コンストラクト
Nur77 LBD は残基351–598(His6 タグつき)。ループ交換キメラと点変異体も作った。
精製
Ni-Sepharose のアフィニティーと PG75 のゲルろ過で精製した。
データ収集・解析
1H–15N HSQC は Bruker 850 MHz、19F NMR は 700・600 MHz で、298 K で測定した。

Related Articles