Issue No. 16 · Thursday

2026.10.22

10月21日に論文データベースへ登録された論文と、同じ日に Nature 系の雑誌で出版された論文から

13Articles
約27分Reading time

New Structure4Structure Update8Structure-Based Study1

Today’s Structures

1 / 3
Contents
  1. Andes virus (ANDV) Gn–Gc spike with human PCDH1ハンタウイルスは棘の中央の穴で受容体を捉える
  2. VZV B- and C-capsids (varicella-zoster virus)VZVのカプシドは、ジスルフィド結合で安定化している
  3. ZIKV NS1–Fab complexes (Zika virus)ジカウイルスNS1の外側の面を覆う抗体が見つかった
  4. RdRp of Jingmen tick virus and Alongshan virus分節型フラビ様ウイルスのRdRpは亜鉛結合部位を欠く
  5. Bat MHC-II (Eptesicus fuscus) with peptidesAlphaFoldでMHC-IIの結合ペプチドを種を超えて予測
  6. Semliki Forest virus with human VLDLRセムリキ森林熱ウイルスは受容体のLA3で捉えられる
  7. PDB 公開待ちRespiratory megacomplex I2III2IV2 (porcine heart)ブタ心臓の呼吸鎖巨大複合体を5つの状態で捉えた
  8. Human leptin–LepR complexレプチン受容体は、非対称な2:2と3:3の複合体をつくる
  9. Etesevimab (CB6) mutant–SARS-CoV-2 RBD効かなくなった抗体を、設計し直して復活させた
  10. RSV prefusion F glycoprotein–RV11 scFvRV11抗体は、RSVのFタンパク質の2つの抗原部位にまたがる
  11. HSV-1 glycoprotein B–D48 FabHSV-1 gBに結合する抗体D48は、ドメインIIの軽鎖側に触れる
  12. HCoV-HKU1A RBD–human TMPRSS2HKU1のRBDは、未切断のTMPRSS2にも結合する
  13. β1-adrenergic receptor (β1AR, turkey)阻害薬AS408は、βアドレナリン受容体の細胞内側を切り離す

Contents

13 Articles
  1. 構造図:ANDV スパイク・PCDH1

    Picked up·Structure Update

    Andes virus (ANDV) Gn–Gc spike with human PCDH1

    ハンタウイルスは棘の中央の穴で受容体を捉える

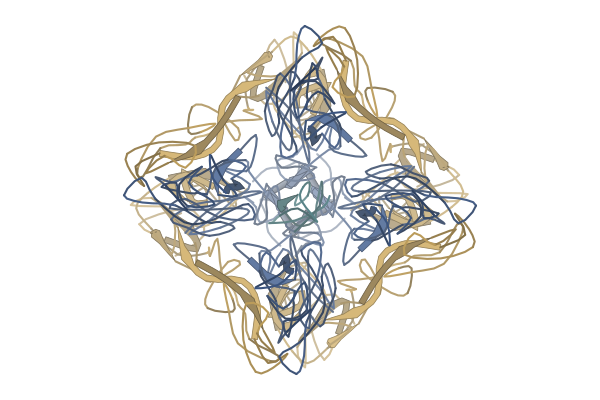
    アンデスウイルスのスパイクとPCDH1の複合体を2.6 Åのクライオ電顕で解いた
  2. 構造図:VZV カプシド

    New Structure

    VZV B- and C-capsids (varicella-zoster virus)

    VZVのカプシドは、ジスルフィド結合で安定化している

    B・Cカプシドをクライオ電顕で3.1 Åまで解き、ポータル頂点の違いも調べた

  3. 構造図:ジカウイルス NS1

    New Structure

    ZIKV NS1–Fab complexes (Zika virus)

    ジカウイルスNS1の外側の面を覆う抗体が見つかった

    5種の抗体との複合体をクライオ電顕で解析し、結合様式を2群に分けた

  4. 構造図:JMTV・ALSV の RdRp

    New Structure

    RdRp of Jingmen tick virus and Alongshan virus

    分節型フラビ様ウイルスのRdRpは亜鉛結合部位を欠く

    JMTVとALSVのRdRpの結晶構造は、典型的なフラビウイルスと似た形だった

  5. 構造図:コウモリ MHC-II(EF)

    New Structure

    Bat MHC-II (Eptesicus fuscus) with peptides

    AlphaFoldでMHC-IIの結合ペプチドを種を超えて予測

    予測ツールAF-predをコウモリMHC-IIの結晶構造と結合実験で検証した

  6. 構造図:SFV・VLDLR(ヒト)

    Structure Update

    Semliki Forest virus with human VLDLR

    セムリキ森林熱ウイルスは受容体のLA3で捉えられる

    VLDLRのLA3がE1のDIIIに結合する様子を3.5 Åのクライオ電顕で示した

  7. Structure Update

    Respiratory megacomplex I2III2IV2 (porcine heart)

    ブタ心臓の呼吸鎖巨大複合体を5つの状態で捉えた

    複合体Iの活性・不活性と複合体IVの位置の対応をクライオ電顕で調べた

  8. 構造図:レプチン–LepR(ヒト)

    Structure Update

    Human leptin–LepR complex

    レプチン受容体は、非対称な2:2と3:3の複合体をつくる

    ヒトのレプチン–LepRをクライオ電顕で3状態解析し、いずれも開いた形だった

  9. 構造図:CB6 抗体・SARS-CoV-2 RBD

    Structure Update

    Etesevimab (CB6) mutant–SARS-CoV-2 RBD

    効かなくなった抗体を、設計し直して復活させた

    etesevimab(CB6)を設計し直し、変異株のRBDとの複合体をクライオ電顕で確かめた

  10. 構造図:RSV Fタンパク質+RV11

    Structure Update

    RSV prefusion F glycoprotein–RV11 scFv

    RV11抗体は、RSVのFタンパク質の2つの抗原部位にまたがる

    融合前のFと抗体scFvの結晶構造から、S443P耐性変異のしくみも説明できた

  11. 構造図:HSV-1 gB+D48 Fab

    Structure Update

    HSV-1 glycoprotein B–D48 Fab

    HSV-1 gBに結合する抗体D48は、ドメインIIの軽鎖側に触れる

    gBとD48 Fabの3.04 Åクライオ電顕構造。DIIは他のヘルペスウイルスでも抗体の標的になる

  12. 構造図:HKU1 RBD・TMPRSS2

    Structure Update

    HCoV-HKU1A RBD–human TMPRSS2

    HKU1のRBDは、未切断のTMPRSS2にも結合する

    2.4 Åの結晶構造で、RBDの向きとβ鎖の形が他の報告と異なっていた

  13. 構造図:β1AR(七面鳥)

    Structure-Based Study

    β1-adrenergic receptor (β1AR, turkey)

    阻害薬AS408は、βアドレナリン受容体の細胞内側を切り離す

    既存の構造を土台に、溶液NMRと変異体で調べた

Picked up Today’s Structure2026.10.221 Article

ハンタウイルスは棘の中央の穴で受容体を捉える

アンデスウイルスのスパイクとPCDH1の複合体を2.6 Åのクライオ電顕で解いた
PaperStructural basis for protocadherin-1 recognition by New World hantaviruses

First authorLeandro Battini (Université Paris Cité, France)

CorrespondingRohit K. Jangra (Louisiana State University Health Sciences Center-Shreveport, USA), Kartik Chandran (Albert Einstein College of Medicine, USA), Pablo Guardado-Calvo (Université Paris Cité, France)

JournalNature

Published2026.10.21

LicenseCC BY-NC-ND

構造図:ANDV スパイク・PCDH1
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • Gn(糖タンパク質)Envelopment polyprotein
  • Gc(糖タンパク質)Envelopment polyprotein
  • PCDH1(受容体)Protocadherin-1
疑問・課題
新世界ハンタウイルスは受容体 PCDH1 で細胞に入るが、その結合の構造的な仕組みは分かっていなかった。
アプローチ
可溶性のスパイク四量体を PCDH1 と共発現して精製し、クライオ電顕で解いた。変異体と深部変異スキャンで結合部位を調べた。
結果
PCDH1 の EC1 ドメインは、Gn 四分子がつくる中央の深い窪みに入り込んでいた。窪みは Fab が入るには狭かった。
わかったこと
PCDH1 はウイルス粒子の上のスパイクだけを認識する。抗体は窪みをふさぐか、かさ高さで受容体の接近を妨げて中和する。

Highlights

1個の受容体が4個のウイルス糖タンパク質と接する結合様式で、論文は、著者の知る限り他の外被ウイルスで見られていないとしている。EC1 は隣り合う2つの Gn と主に接触する。

原文

“This mode of interaction, whereby one receptor molecule interacts with four viral glycoproteins, represents a binding mode that to our knowledge has not been observed in any enveloped virus”PCDH1 binds to a central spike pocket

Gn の3つのループが結合部位をつくる。旧世界ハンタウイルス HTNV のスパイクにこの3ループを移すと、PCDH1 に弱く結合するようになった。

原文

“a chimeric rVSV-HTNV bearing all three receptor-binding loops from ANDV Gn, but not the GnH CD loop alone, could now bind to PCDH1, albeit relatively weakly.”Structural basis of receptor use

中和抗体4種のうち、ANDV-5 と MIB22 は窪みを直接ふさぐ。ADI-65534 と ANDV-34 は窪みに入らず、IgG の定常領域による立体障害で競合すると考えられる。MIB22 と GnH の複合体は X 線で 3.1 Å に解かれた。

原文

“We therefore determined the crystal structure of an antibody fragment of MIB22 in a complex with ANDV GnH at a resolution of 3.1 Å”Mechanistic basis of ANDV neutralization

Lab Notes

発現系
ショウジョウバエ S2 細胞で安定発現し、CdCl2 で誘導。
コンストラクト
Gn・Gc の細胞外領域に人工の四量体化ドメイン HALC4_136 を分割して融合。
精製
Strep-Tactin 親和、TALON、Superose6 のゲル濾過の順。
結晶化/グリッド作製
0.34 mg/ml を UltrAufoil グリッドに 3 μl のせ、Vitrobot Mark IV で凍結。
データ収集・解析
Titan Krios と Falcon 4i、ピクセルサイズ 0.7455 Å。

Related Articles

New Structure2026.10.224 Articles

VZVのカプシドは、ジスルフィド結合で安定化している

B・Cカプシドをクライオ電顕で3.1 Åまで解き、ポータル頂点の違いも調べた

PaperInsights into varicella-zoster virus assembly from the B- and C-capsid at near-atomic resolution structures

First authorLei Cao (Chinese Academy of Sciences, China)

CorrespondingHongrong Liu (Hunan Normal University, China), Hai Hou (Northwestern Polytechnical University, China), Xiangxi Wang (Chinese Academy of Sciences, China)

JournalhLife

Published2023.10.27

LicenseCC BY-NC-ND 4.0

構造図:VZV カプシド
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • MCP(主要カプシド)Major capsid protein
  • MCP(主要カプシド)Major capsid protein
  • MCP(主要カプシド)Major capsid protein
  • SCP(小カプシド)Small capsomere-interacting protein
  • CVC1(頂点)CVC1
  • CVC2(頂点)Capsid vertex component 2
  • CVC2(頂点)Capsid vertex component 2
  • デネディラーゼ(外被)Large tegument protein deneddylase
  • Tri2A(三量体)Tri2A
  • Tri2A(三量体)Tri2A
  • Tri1(三量体)Tri1
疑問・課題
VZV カプシドはサブユニット間の結合が緩いのに熱に強く、その理由は分かっていなかった。
アプローチ
穏やかな条件で精製した B・C カプシドをクライオ電顕で調べ、ブロック単位の再構成と分類でポータル頂点も解いた。
結果
カプソメアは 3.1 Å、ポータル頂点は B で 4.8 Å・C で 4.5 Å。隣り合うヘキソン間に、ジスルフィド結合が見つかった。
わかったこと
ペントン周辺の結合は弱いが、ヘキソン間のジスルフィド結合などが高い熱安定性の理由とみられる。
残された課題
カプシドがポータルを核膜孔にどう結びつけるかは、まだ十分に分かっていない。

Highlights

ヘキソンの N-lasso の Cys と、隣のヘキソンの Cys がジスルフィド結合を作っていた。従来「非共有結合の鎖かたびら」とされていた部分である。

原文

“However, the inter-hexon interaction is not a non-covalent chainmail as reported previously.”Results

ペントン周辺では二量体化の部分が無秩序になり、結合が弱まる。一方で、カプシドの床下にある疎水性のくぼみ3か所が Tri1 の N-archer で埋められ、HSV2 より 675 Å2 広い面積が埋まっている。

原文

“the disorder of dimerization from Pen-MCP and P6 in VZV capsid weakens the hexon–penton interaction”Results

C-カプシドのポータル頂点では、テグメント複合体 PVAT が5つの成分でそろっていた。B-カプシドの PVAT は不完全だった。

原文

“Interestingly, compared to C-capsid PVAT, PVAT of B-capsid shows an incomplete structure.”Results

Lab Notes

発現系
ヒト二倍体の SV-1 細胞に VZV を感染させて増殖。
精製
0.05% NP-40 で処理し、スクロース密度勾配で精製。B・C カプシドは完全には分けられなかった。
結晶化/グリッド作製
3 μL を C-flat CF-2/1–3C に載せ、Vitrobot で 6 秒ブロットして液体エタンで凍結。
データ収集・解析
Titan Krios(300 kV)と K2 検出器。14,431 枚を記録し、RELION でブロック単位の再構成。

Related Articles

ジカウイルスNS1の外側の面を覆う抗体が見つかった

5種の抗体との複合体をクライオ電顕で解析し、結合様式を2群に分けた

PaperStructural insights into the distinct protective mechanisms of human antibodies targeting ZIKV NS1

First authorQi Pan (The Chinese University of Hong Kong, China)

CorrespondingWei Zhao (Southern Medical University, China), Lei Yu (Guangzhou Medical University, China), Hongli Hu (The Chinese University of Hong Kong, China)

JournalhLife

Published2024.05.16

LicenseCC BY-NC-ND 4.0

構造図:ジカウイルス NS1
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • NS1
  • 4B8 重鎖(抗体)the heavy chain of antibody 4B8
  • 4B8 軽鎖(抗体)the light chain of antibody 4B8
疑問・課題
ジカウイルス NS1 に対する抗体 3G2・4B8 は 別の抗体より強く感染を抑えるが、認識する場所は不明だった。
アプローチ
ヒト抗体5種の Fab と NS1 の複合体をクライオ電顕で解き、細胞や内皮細胞を使う実験で効果も調べた。
結果
3G2 と 4B8 は NS1 二量体の外側の面に結合した。残る3種はβラダー領域の末端に結合した。
わかったこと
結合する場所と防御の強さには対応があった。外側の面を覆う 3G2・4B8 は IgG でも Fab でも内皮の透過性亢進を完全に抑えた。
残された課題
分泌型 NS1 の四量体・六量体が病態に果たす役割は、今後の課題だ。

Highlights

3G2 は NS1 二量体の外側で、ウイング領域・コネクタ・βラダーの4か所にまたがって結合し、界面は 1198 Å2 に及ぶ。4B8 もほぼ同じ姿勢で結合する。

原文

“According to calculations, the buried interface area between one 3G2 Fab and the dimeric NS1 is 1198 Å2.”Results

βラダー末端に結合する3種のうち、ウイング領域にも接触する1種は複合体が安定だった。残る2種との複合体では NS1 四量体が崩れた。

原文

“For Fab 2E11 and 14G5, the NS1 tetramer structures are disrupted upon complex formation with these antibodies.”Discussion

3G2 と 4B8 は他のフラビウイルスの NS1 とは交差反応せず、診断への利用が考えられる。Kd は 3G2 が 0.12 nM、4B8 が 0.80 nM だった。

原文

“dissociation constant [Kd] values of 3G2: 0.12±0.02 nM; the Kd values of 4B8: 0.80±0.33 nM”Results

Lab Notes

発現系
全長 NS1(残基 3–352、GZ02 株)を Sf9 細胞のバキュロウイルス系で発現。
コンストラクト
N 末端に gp64 シグナルペプチドと 6×His タグ。
精製
金属アフィニティー、続いて Superdex 200 Increase でゲルろ過。
結晶化/グリッド作製
Fab を NS1 四量体に 5:1 のモル比で氷上 30 分混ぜ、ゲルろ過で複合体を精製。
データ収集・解析
300 kV Titan Krios G3i と K3 検出器。RELION-3.1 で解析。

Related Articles

分節型フラビ様ウイルスのRdRpは亜鉛結合部位を欠く

JMTVとALSVのRdRpの結晶構造は、典型的なフラビウイルスと似た形だった

PaperCrystal structures of RNA-dependent RNA polymerases from Jingmen tick virus and Alongshan virus

First authorZhenyang Liu (Chinese Academy of Sciences, China)

CorrespondingYi Shi (Chinese Academy of Sciences, China)

JournalhLife

Published2023.10.25

LicenseCC BY-NC-ND 4.0

構造図:JMTV・ALSV の RdRp
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • RdRp(RNA合成酵素)RNA polymerase

Ligands

  • selenium atomSESelenium Atom
疑問・課題
分節ゲノムをもつジンメンウイルスの RdRp は、フラビウイルスの NS5 と配列が約25%しか一致せず、構造が分からなかった。
アプローチ
JMTV と ALSV の RdRp ドメインを結晶構造解析し(2.6 Å・3.2 Å)、ゲノム 5′ 末端の RNA 配列の働きも調べた。
結果
3つのサブドメインからなる構造で、触媒モチーフ A–G は保存されていたが、亜鉛結合部位はなかった。
わかったこと
RdRp は典型的なフラビウイルスと似た仕組みで働くとみられる。5′ 末端の保存された8塩基は RdRp との結合と RNA 合成に必要だった。
残された課題
亜鉛結合部位を欠くことの影響は、まだ分かっていない。

Highlights

JMTV と ALSV の RdRp は、指・掌・親指の3つのサブドメインをもつ右手型だった。ALSV の RdRp は、デングウイルスやダニ媒介脳炎ウイルスの RdRp と RMSD 2.4 Å で重なった。

原文

“The RdRp domain displays a canonical right-hand conformation containing the fingers, palm, and thumb subdomains.”Results

典型的なフラビウイルスの RdRp にある2つの亜鉛結合部位が、JMTV と ALSV にはない。デングウイルスで亜鉛を保持する残基は、ALSV では亜鉛を配位できない残基に置き換わっている。

原文

“Those residues in ALSV RdRp could not provide electrons to Zn2+ for coordination.”Results

ゲノム 5′ 末端の stem loop A の先端にある8塩基を変異させると、ALSV の RdRp は RNA を合成できず、RNA にも結合しなかった。野生型の RNA への KD は 0.16 μM だった。

原文

“the ALSV RdRp could bind to the wild-type ALSV-5′-vRNA with a dissociation constant (KD) value of 0.16 μM but could not interact with the mutant ALSV-5′-vRNA”Results

Lab Notes

発現系
大腸菌 BL21(DE3) で発現。Se 置換体は B834(DE3) で発現した。
コンストラクト
ALSV RdRp は 294–914 残基。N 末端に His タグ。
精製
HisTrap HP のあと、HiLoad 16/600 Superdex 200 で精製。
結晶化/グリッド作製
シッティングドロップ蒸気拡散法。ALSV RdRp は 0.2 M クエン酸カリウム(pH 8.3)、20% PEG 3350。
データ収集・解析
SSRF BL17U で測定。JMTV は Se-SAD 法、ALSV は JMTV を鋳型にした分子置換で解いた。

AlphaFoldでMHC-IIの結合ペプチドを種を超えて予測

予測ツールAF-predをコウモリMHC-IIの結晶構造と結合実験で検証した

PaperPan-prediction of major histocompatibility complex class II–restricted epitopes across species via an AlphaFold-based quantification scheme

First authorSuqiu Wang (China Agricultural University)

CorrespondingSheng Wang (Shanghai Zelixir Biotech Company Ltd, China), Shi Xu (Nanjing Chengshi Biomedical Technology (TheraRNA) Co, Ltd, China), Hanchun Yang (China Agricultural University) ほか 1 名

JournalhLife

Published2026.01.09

LicenseCC BY-NC-ND 4.0

構造図:コウモリ MHC-II(EF)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • HLA-DR α鎖(MHC-II)HLA class II histocompatibility antigen, DR alpha chain
  • HLA-DR β鎖(MHC-II)MHC class II histocompatibility antigen, DR-1 beta chain
  • 結合ペプチドASN-ASP-ILE-LEU-SER-ARG-LEU-ASP-PRO-PRO-GLU-ALA-SER
疑問・課題
MHC-II は型が多様で、動物では結合ペプチドのデータも少なく、種をまたぐエピトープ予測は難しかった。
アプローチ
AlphaFold の予測構造をペプチドの保存された結合様式と照合して点数化する AF-pred を作り、結合実験と結晶構造で検証した。
結果
ウシ・ブタ・コウモリの41ペプチドでは、AUC は MixMHC2pred の 0.560 に対し AF2M-pred 0.744、AF3-pred 0.761 だった。
わかったこと
構造にもとづく AF-pred は、結合データが乏しい動物の MHC-II でも配列ベースの手法より予測できると著者らは結論している。
残された課題
AF-pred は、典型的でないペプチドの結合様式を正確に予測できない。

Highlights

コウモリ MHC-II に結合した P1008 ペプチドの結晶には2分子が含まれ、P8–P9 付近で異なる2つの配置(M1・M2)が見えた。AF-pred の予測は M2 に近かった。

原文

“The unit cell of the pBat_EF-NDIL crystal structure contains two molecules (M1 and M2).”Results

予測にもとづいて改変したペプチドの結晶構造で、P9 の E が α76R・β57R の両方と塩橋を作る様子が予測どおりに見えた。二度目の変異では結合の強さが大きく増した。

原文

“Thermodynamic stability measurements of the complexes revealed a significant increase in binding affinity following the second mutation”Results

AF2M 版は同じペプチドの別の結合コア候補も示せたが、AF3 版は一つに収束した。6T3Y のような典型的でない結合様式は、どちらも外した。

原文

“Notably, AF2M-pred can discover two different possible 9-aa-binding core regions in a peptide and rank them correctly (Figures 6 and 7B).”Results

Lab Notes

発現系
大腸菌 BL21(DE3) で発現し、封入体をリフォールディングした。
コンストラクト
MHC-II の α 鎖・β 鎖の細胞外領域。ペプチドをリンカーで β 鎖の 5′ 側につないだ。
精製
ゲルろ過と陰イオン交換で精製。
結晶化/グリッド作製
シッティングドロップ法。PGDS・GASF は 0.2 M 塩化カルシウム、20% PEG 3350、pH 5.1。
データ収集・解析
上海放射光施設 BL18U1/BL19U で測定。

Related Articles

Structure Update2026.10.227 Articles

セムリキ森林熱ウイルスは受容体のLA3で捉えられる

VLDLRのLA3がE1のDIIIに結合する様子を3.5 Åのクライオ電顕で示した

PaperStructural basis of Semliki Forest virus entry using the very-low-density lipoprotein receptor

First authorYing Li (University of Chinese Academy of Sciences, China)

CorrespondingHao Song (Chinese Academy of Sciences, China)

JournalhLife

Published2023.11.15

LicenseCC BY-NC-ND 4.0

構造図:SFV・VLDLR(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • キャプシドCapsid protein
  • E2(外被糖タンパク質)Spike glycoprotein E2
  • E1(外被糖タンパク質)Spike glycoprotein E1
  • VLDLR(受容体)Very low-density lipoprotein receptor
疑問・課題
セムリキ森林熱ウイルス(SFV)と受容体 VLDLR の相互作用の詳しい仕組みは、ほとんど分かっていなかった。
アプローチ
SFV の粒子(VLP)と VLDLR の LA 反復のクライオ電顕構造を解いた。結合は BLI、変異体、他の生物種の受容体でも調べた。
結果
LA3 は E1 の DIII だけに結合し、HRV2 と VLDLR の結合様式に似ていた。LA を5つ連ねた LA33333 は解離が遅かった。
わかったこと
SFV は VLDLR の複数の LA 反復を使って結合を強める。ウマとカの受容体でも、使う LA は種ごとに異なっていた。

Highlights

LA3 の W132、Q126 と Ca2+ を配位する酸性残基群が、E1-DIII の K345・K347・T348 などと結合する。E1-DIII に変異を入れると、結合は約30〜70倍弱まった。

原文

“SFV interacts with LA3 residues Q126, W132, and the acidic cluster involved in Ca2+ coordination, which comprises D135, E137, and D139.”Results

VLDLR は他のアルファウイルスの受容体のようにスパイクの谷(canyon)には入らず、E1-DIII だけに結合する。同じ VLDLR が風邪ウイルスの HRV2 を捉える様式とよく似ている。

原文

“Surprisingly, the binding mode of VLDLR to SFV closely mirrors its interaction pattern with HRV2”Results

LA1 は SFV に結合しないが、R44Q または T47P の1か所の置換で結合するようになった。LA3 の5連結体は、SFV と HRV の両方に使える阻害剤の候補になると論文は述べている。

原文

“However, the R44Q or T47P substitution individually enabled LA1 to bind to E1-DIII.”Results

Lab Notes

発現系
SFV VLP は Expi293F 細胞で発現。LA 反復は MBP 融合で大腸菌に発現。
コンストラクト
ヒト VLDLR LA3(残基 111–151)を mFc タグ付きで使用。
精製
VLP は蔗糖クッションと密度勾配で精製。
結晶化/グリッド作製
Quantifoil R 2/1 グリッドに 3 μl をのせ、Vitrobot Mark IV で凍結。
データ収集・解析
Titan Krios と K3、ブロック再構成で 2 回・5 回軸の領域を高分解能化。

Related Articles

ブタ心臓の呼吸鎖巨大複合体を5つの状態で捉えた

複合体Iの活性・不活性と複合体IVの位置の対応をクライオ電顕で調べた

PaperStructural basis for the regulatory mechanism of mammalian mitochondrial respiratory chain megacomplex-I2III2IV2

First authorLaixing Zhang (Tsinghua University, China)

CorrespondingJinke Gu (Shenzhen University Medical School, China), Maojun Yang (Tsinghua University, China)

JournalhLife

Published2024.03.15

LicenseCC BY-NC-ND 4.0

構造図:MCI2III2IV2(ブタ心臓)
疑問・課題
CI の活性化・不活性化が CIII の構造や CIV の位置にどう影響するかは、ほとんど分かっていなかった。
アプローチ
ブタ心臓から巨大複合体 MCI2III2IV2 を精製し、クライオ電顕で5つの立体配座を解いた。細胞では gSTED 顕微鏡で存在を確かめた。
結果
5状態のうち最高は 3.46 Å。両方の CI が不活性型の State 2 では、CIV が CIII に約 29 Å 近づいて結合した。
わかったこと
CI・CIII・CIV は互いの構造や位置に影響し合い、一つの酵素として働く可能性が強く示された。
残された課題
MCI2III2IV2 が細胞の中で果たす生物学的な役割は、まだよく分かっていない。

Highlights

2つの CI が活性型の State 1 から、不活性型の State 2 へ中間状態を経て移る経路が示された。State 2 では CIV が CIII に3か所で結合し、これまでの超複合体にない位置を取る。

原文

“The position of CIV in State 2 is different from that in any previously reported structures.”Discussion

CI の2か所(NDUFB7 と NDUFB10)が、CIII の Rieske ドメインやシトクロム c の結合部位に働きかける足場になる可能性がある。State 1 から State 2 で、Rieske ドメインは b 状態から c1 状態へ移ると推測された。

原文

“It was thus reasonable to speculate that when MCI2III2IV2 shifts from State 1 to State 2, the Rieske domain of CIII changes from the “b” state to the “c1” state”Results

固定した細胞を gSTED 超解像顕微鏡で観察し、CI と CIV を標識して巨大複合体の粒子を見つけた。精製で壊れやすい複合体が、細胞の中にあることを示す手がかりになる。

原文

“Our gSTED images undoubtedly demonstrate plenty of in situ MCI2III2IV2 particles in rapidly fixed cells mimicking living conditions.”Introduction

Related Articles

レプチン受容体は、非対称な2:2と3:3の複合体をつくる

ヒトのレプチン–LepRをクライオ電顕で3状態解析し、いずれも開いた形だった

PaperStructural plasticity of human leptin binding to its receptor LepR

First authorYufeng Xie (Chinese Academy of Sciences, China)

CorrespondingDefen Lu (Shanxi Agricultural University, China), George Fu Gao (Chinese Academy of Sciences, China)

JournalhLife

Published2023.11.01

LicenseCC BY-NC-ND 4.0

構造図:レプチン–LepR(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • LepR(受容体)Leptin receptor
  • レプチン(ホルモン)Leptin
疑問・課題
レプチンが細胞表面で LepR とどう会合するかは議論が続き、複合体の構造も分かっていなかった。
アプローチ
ヒトのレプチンと LepR の細胞外領域を共発現して精製し、単粒子クライオ電顕で解析した。
結果
2:2 と 3:3 の複合体が同程度の頻度で見つかり、どれも非対称で開いた形だった(分解能 3.58〜3.88 Å)。
わかったこと
LepR は gp130 系の他の受容体と違う非対称な会合をとる。D3–D4 のねじれた硬い界面が原因と著者は推測する。
残された課題
2:2 と 3:3 は強さの違うシグナルを出すかもしれないと著者は提案するにとどまる。

Highlights

3:3 の複合体は、2:2 の二量体に 3 組目のレプチン–LepR が加わった「手をつなぐ」形で、輪は閉じずに隙間が残る。隙間の幅は50.2 Å と 73.2 Å の 2 通りだった。

原文

“The widths of the open gaps of the two distinct leptin–LepR trimer complexes were different (∼50.2 Å and ∼73.2 Å, respectively)”Results

受容体に結合すると、遊離型のレプチンは AB ループなどが動く。αC' の A137 は最大 11 Å ずれ、低親和性の結合面の水素結合と連動していた。

原文

“The position of residue A137 from αC’ in leptin was substantially shifted with a maximum distance of 11 Å after binding to the receptor.”Results

LepR は IL-6 や LIF と似た向きでレプチンを受けるが、D3(IgD)と D4 の向きだけが他の受容体と大きく異なる。この界面の疎水性残基が硬い向きを保つ。

原文

“which shaped the rigid orientation between D3 and D4 of the LepR (Figure 4F, Table S3).”Results

Lab Notes

発現系
HEK293F 細胞で LepR 細胞外領域とレプチンを共発現。
コンストラクト
LepR は 21〜839 残基で C 末端 His タグ付き。レプチンはタグなし。
精製
His-Trap HP とゲルろ過(Superose 6 Increase)。
結晶化/グリッド作製
約 0.5 mg/mL を Cu グリッドに載せ、Vitrobot Mark IV で急速凍結。
データ収集・解析
Titan Krios と K3 で撮影し、cryoSPARC で解析。

Related Articles

効かなくなった抗体を、設計し直して復活させた

etesevimab(CB6)を設計し直し、変異株のRBDとの複合体をクライオ電顕で確かめた

PaperEnabling the immune escaped etesevimab fully-armed against SARS-CoV-2 Omicron subvariants including KP.2

First authorChao Su (City University of Hong Kong, China)

CorrespondingMengsu Yang, George Fu Gao (City University of Hong Kong, China)

JournalhLife

Published2025.01.25

LicenseCC BY-NC-ND 4.0

構造図:CB6 抗体・SARS-CoV-2 RBD
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • S309 重鎖(抗体)S309 fab heavy chain
  • S309 軽鎖(抗体)S309 fab light chain
  • CB6改変 重鎖(抗体)CB6 fab mutant heavy chain
  • CB6改変 軽鎖(抗体)CB6 fab mutant light chain
  • S304 重鎖(抗体)S304 fab heavy chain
  • S304 軽鎖(抗体)S304 fab light chain
  • Spike S1(RBD)Spike protein S1
疑問・課題
抗体 etesevimab(CB6)は、変異株の出現とともに効かなくなり、オミクロン株には効果を完全に失った。
アプローチ
Rosetta で CB6 の CDR を骨格と配列の両面から設計し、変異を1つずつ SPR で確かめてから組み合わせた。
結果
11 個の変異を入れた CB6-IV は KP.2 を含む試験したオミクロン株の RBD に結合し、擬似ウイルスも中和した。
わかったこと
クライオ電顕構造で CB6-IV は元の CB6 と同じエピトープに結合し、設計した変異の多くが RBD との相互作用を強めていた。
残された課題
BAADesign は結合エネルギーの予測に頼るため、全体に効く変異を見逃すことがある。

Highlights

変異で生じる不利を、立体障害と相互作用の低下に分けた。立体障害には、CDR3 の H-Y102 や L-Y92 を欠失させて輪を作り直す骨格設計で対応した。

原文

“Specifically, mutations at N460 (N460K), Q493 (Q493R), and Y505 (Y505H) caused steric hindrance with CB6 heavy chain (H) S56, Y102, and light chain (L) Y92, respectively.”Results

PT 型と XBB.1.5 の RBD との複合体は 3.02 Å と 2.49 Å で、CB6-IV は CB6 と同じ面に結合した。H-Y104 は PT RBD の K417 とわずかに衝突し、CB6-III が PT・Delta に弱かった理由を説明する。

原文

“The Cryo-EM structures of the CB6-IV-PT RBD-S309-S304 and CB6-IV-XBB.1.5 RBD-S309-S304 complexes were resolved to 3.0 and 2.5 Å, respectively”Results

CB6-IV の CDR1・CDR2 の変異は、同じ結合様式をとる BD-604 や CC12.3 などにも移せた。CC12.3 は XBB・EG.5・BA.2.86 の RBD に結合するようになった。

原文

“Importantly, these mutations enabled CC12.3 to bind to the XBB, EG.5, and BA.2.86 RBDs, and BD-604 to EG.5.”Results

Lab Notes

発現系
Fab と RBD は Expi293F 細胞で一過性発現(SPR 用の抗体は HEK293T の上清)。
コンストラクト
RBD は spike 残基 319–541。Fab と RBD の C 末端に His タグ。
精製
HisTrap HP のあと、HiLoad 16/600 Superdex 200PG でゲルろ過。
結晶化/グリッド作製
CB6-IV・S309・S304 の Fab と RBD を氷上で一晩混ぜ、ゲルろ過で精製。0.5 mg/mL を Quantifoil Au 1.2/1.3 に載せ 3 秒ブロット。
データ収集・解析
300 kV Krios と Falcon 4、画素 0.85 Å。CryoSPARC で粒子を選び、最終 205,618 粒子(PT)・282,682 粒子(XBB.1.5)。

Related Articles

RV11抗体は、RSVのFタンパク質の2つの抗原部位にまたがる

融合前のFと抗体scFvの結晶構造から、S443P耐性変異のしくみも説明できた

PaperA protective human antibody against respiratory syncytial virus by targeting a prefusion epitope across sites IV and V of the viral fusion glycoprotein

First authorLianpan Dai (Chinese Academy of Sciences, China)

CorrespondingZhengde Xie (Capital Medical University, China), Jim Zhen Wu (Shanghai Ark Biopharmaceutical Co, Ltd, China), George Fu Gao (Chinese Academy of Sciences, China)

JournalhLife

Published2023.09.28

LicenseCC BY-NC-ND 4.0

構造図:RSV Fタンパク質+RV11
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • RSV F(融合タンパク質)Fusion glycoprotein F0
  • RV11 重鎖(抗体)RV11-H scFv
  • RV11 軽鎖(抗体)RV11-L scFv
疑問・課題
RSV の予防抗体はより強く効き、保存された部位を狙う新世代のものが求められている。
アプローチ
回復した小児の記憶 B 細胞から抗体を単離し、融合前 F との複合体を X 線結晶構造解析した。
結果
RV11 は融合前 F だけに結合し、3 分子の scFv が F 三量体の腰に付く。分解能は 2.9 Å だった。
わかったこと
RV11 は部位 IV と V にまたがる保存されたエピトープを認識する。S443 の水素結合が失われると耐性になる。
残された課題
マウスでの防御効果と耐性変異の探索は、RSV A 亜型でしか調べていない。

Highlights

RV11 は A・B 両亜型を中和し、パリビズマブより臨床分離株で 7.1 倍(A)と 58.0 倍(B)強かった。マウスでも 6.3 倍の効力を示した。

原文

“The EC90 value of RV11 was 1.5 μg/mL (serum level of mAb), which is 6.3-fold more efficacious than palivizumab (9.5 μg/mL)”Results

重鎖は一方の F 分子の部位 IV に、軽鎖は隣の F 分子の部位 V に触れる。隣り合う 2 分子を架橋して、融合前から融合後への構造変化を妨げるのではと著者は考える。

原文

“RV11 recognizes epitope at the junction region of pre-F, with its VH contacting site IV residues from one protomer and its VL mainly contacting site V residues from the neighboring protomer”Results

逃避変異体はいずれも S443P を持つ。S443 は RV11 の CDR3 の D112・Y114 と水素結合を作る残基で、変異でこれが失われると説明される。S443 は報告された配列で 99.0% 以上保存されている。

原文

“Of note, the RV11-escape S443P mutation is not found, and the residue S443 is highly conserved (>99.0%) until May 2023.”Results

Lab Notes

発現系
融合前 F は HEK293T で一過性発現。RV11 scFv は大腸菌の封入体から巻き戻した。
コンストラクト
sc9-10 DS-Cav1(融合ペプチドを GS リンカーに置換)と RV11 scFv(VL-(GGGGS)4-VH)。
精製
ニッケル親和性とゲルろ過。複合体は 1:2 で混ぜてゲルろ過した。
結晶化/グリッド作製
10 または 5 mg/mL を 18℃ のシッティングドロップで結晶化した。
データ収集・解析
SSRF BL19U1 で測定。5K6C を探索モデルに分子置換で解いた。

Related Articles

HSV-1 gBに結合する抗体D48は、ドメインIIの軽鎖側に触れる

gBとD48 Fabの3.04 Åクライオ電顕構造。DIIは他のヘルペスウイルスでも抗体の標的になる

PaperThe structure of HSV-1 gB bound to a potent neutralizing antibody reveals a conservative antigenic domain across herpesviruses

First authorCong Sun (Sun Yat-sen University Cancer Center, China)

CorrespondingCong Sun, Mu-Sheng Zeng (Sun Yat-sen University Cancer Center, China), Zheng Liu (Southern University of Science and Technology, China)

JournalhLife

Published2023.12.22

LicenseCC BY-NC-ND 4.0

構造図:HSV-1 gB+D48 Fab
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • D48 重鎖(抗体)D48 heavy chain
  • D48 軽鎖(抗体)D48 light chain
  • gB(融合タンパク質)Envelope glycoprotein B
疑問・課題
gB の抗体がウイルスをどう中和するのか、構造の基盤は分かっていなかった。
アプローチ
HSV-1 gB の細胞外領域と D48 Fab を HEK293F で発現して複合体を作り、クライオ電顕で解析した。
結果
gB 三量体の各分子に D48 Fab が 1 つずつ付き、主に軽鎖が DII ドメインと極性相互作用していた(3.04 Å)。
わかったこと
HCMV・EBV の gB 抗体も DII に結合し、融合前の gB でも抗体と衝突しない。DII は共通の抗原領域らしい。

Highlights

D48 の軽鎖の LCDR1・LCDR3・FR2 が gB の DII ドメインと水素結合や塩橋を作る。重鎖側には極性の接触がなく、疎水性残基のまとまりが支えると考えられる。

原文

“indicating potential hydrophobic interactions in stabilizing the D48 VH-HSV-1 gB interface (Figure S4).”Abstract

接触残基を個別にアラニンへ置換すると、どの変異体でも D48 Fab への親和性が約 10 分の 1 に下がった。

原文

“we introduced single-residue alanine mutants to disrupt polar contacts, resulting in an approximate 10-fold decrease in binding affinity (KD) across all mutants (Figures 1G and S3).”Abstract

HCMV の SM5-1 と EBV の 3A3 も、gB の DII 表面に結合する。DII の配列には保存された残基があるが、3 種の抗体の接触残基は HSV-1・HCMV・EBV で同一ではなく、交差結合は限られると考えられる。

原文

“We found that D48, SM5-1, and 3A3 each bind and extensively cover the superficial surface of the post-fusion DII domain of gB (Figure 1I).”Abstract

Lab Notes

発現系
HEK293F 細胞で一過性発現(gB、D48 Fab、IgG1)。
コンストラクト
gB は HSV-1 KOS の 31–730 残基で、C 末端に Twin-Strep と 8×His タグ。
精製
gB と D48 Fab は Ni Sepharose、IgG1 は Protein A で精製。
結晶化/グリッド作製
Quantifoil R2/1 の Au グリッドに 4 μL を載せ、Vitrobot Mark IV で凍結。
データ収集・解析
Titan Krios G3i と K3 で撮影し、cryoSPARC で解析(C3 対称)。

Related Articles

HKU1のRBDは、未切断のTMPRSS2にも結合する

2.4 Åの結晶構造で、RBDの向きとβ鎖の形が他の報告と異なっていた

PaperHigh-resolution crystal structure of human coronavirus HKU1 receptor binding domain bound to TMPRSS2 receptor

First authorWei Wang (Nanjing Agricultural University, China)

CorrespondingRong Chen (Jiangsu Academy of Agricultural Sciences, China), Ying Xu, Shuijun Zhang (Nanjing Agricultural University, China)

JournalhLife

Published2024.10.01

LicenseCC BY-NC-ND 4.0

構造図:HKU1 RBD・TMPRSS2
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • TMPRSS2(プロテアーゼ)Transmembrane protease serine 2
  • HKU1 S1(スパイク)Spike protein S1
疑問・課題
TMPRSS2 は HKU1 の受容体として見つかったばかりで、認識の仕組みを構造で調べる必要があった。
アプローチ
自己切断しない R255Q 変異の TMPRSS2 と HKU1A の RBD を昆虫細胞で作り、複合体の結晶構造を解いた。
結果
2.4 Å の構造で、界面は 1737 Å2。RBD の R517 や W515 などが TMPRSS2 のループ 1〜3 と接していた。
わかったこと
他の報告と比べて RBD の向きとβ10–β11 鎖の形が異なり、HKU1 の受容体結合には柔軟さがあると考えられる。

Highlights

RBD の向きは、報告済みの HKU1A–TMPRSS2 のクライオ電顕構造に対して 6.4°、HKU1B の結晶構造に対して 13.7° 回転している。

原文

“HKU1A RBD undergoes rotation by 6.4° and 13.7°, respectively, compared to the Cryo-electron microscopy (Cryo-EM) structure of HKU1A RBD-TMPRSS2 complex (PDB code: 8VGT)”Abstract

TMPRSS2 は未切断型で、ループ 1 の中心が切断型より約 4.6 Å 外側にずれている。このため G432 の主鎖 N と RBD の D529 の水素結合など、切断型では見られない接触が加わった。

原文

“G432 and N433 of cleaved TMPRSS2 have not been observed to interact with HKU1A RBD.”Abstract

R517 は TMPRSS2 の V415 と水素結合し、D417 は RBD の H488 と塩橋を作る。この界面は、ワクチンや抗ウイルス薬の開発に使える情報になると著者は述べている。

原文

“Here, we show that R517 is hydrogen-bonded to TMPRSS2 V415 (Figure 1G).”Abstract

Lab Notes

発現系
RBD(残基 307–677)と TMPRSS2(残基 107–492)を Hi5 昆虫細胞で発現。
コンストラクト
TMPRSS2 は自己切断を防ぐ R255Q 変異体。
精製
Ni-NTA 親和性クロマトグラフィー、続いて Superdex 200 Increase でゲルろ過。
結晶化/グリッド作製
RBD と TMPRSS2 を 1:1 で混ぜ、シッティングドロップ蒸気拡散法、18°C で結晶化。
データ収集・解析
上海放射光 BL18U で回折データを収集し、8S0N と 5GNB を鋳型に分子置換で解いた。

Related Articles

Structure-Based Study2026.10.221 Article

阻害薬AS408は、βアドレナリン受容体の細胞内側を切り離す

既存の構造を土台に、溶液NMRと変異体で調べた

PaperUncoupling of the allosteric signalling network in the β1-adrenergic receptor by a negative allosteric modulator

First authorThomas H Harman (University of Cambridge, UK)

CorrespondingGraham Ladds, Daniel Nietlispach (University of Cambridge, UK)

JournalNature Communications

Published2026.09.18

LicenseCC BY 4.0

構造図:β1AR(七面鳥)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 2Y03(論文が使った既存の構造)

Proteins & Nucleic Acids

  • β1AR(受容体)BETA-1 ADRENERGIC RECEPTOR

Ligands

  • HEGA-102CVHega-10
  • イソプレナリン5FWIsoprenaline
疑問・課題
GPCRのアロステリック修飾薬が、受容体の状態の分布をどう変えるかはまだ十分に分かっていなかった。
アプローチ
既存の構造を土台に、E130の変異体と負のアロステリック修飾薬AS408を、機能測定・MD・溶液NMRで比べた。
結果
E130変異は活性の低い状態へ分布を寄せたが、AS408は細胞内側の面を薬の結合部位から切り離し、G タンパク質と結合しにくい配置にした。
わかったこと
2つは同程度にシグナルを下げても仕組みが異なり、AS408 は Gタンパク質と結合できない細胞内側の配置を作る。

Highlights

E130 を疎水性や芳香族のアミノ酸に替えると、アゴニスト(受容体を活性化する薬)が結合していても活性状態の割合が下がった。活性の下がり方は側鎖の種類で段階的に変わった。

原文

“Unlike β1AR-E, which favours occupation of the active state14, the hydrophobic E130X3.41 variants predominantly occupied the pre-active state as previously observed for isoprenaline-bound β1AR-W26 (Fig. 2c).”Results

AS408 は G タンパク質経路のシグナルを下げる負のアロステリック修飾薬(NAM)と確かめられた。結合の強さは μM 程度で、アゴニストの効き方(効力)に左右されず作用した。

原文

“For AS408, the log(αβ) is −3.2 ± 0.5, thereby confirming AS408 as a NAM at the β1AR.”Results

19F NMR では AS408 を加えると活性状態と前活性状態のシグナルが減り、これまで見られなかった位置に新しいピークが現れた。AS408 は既知のどの状態とも異なる細胞内側の配置を作ると考えられる。

原文

“Interestingly, the position of the signal for the AS408-bound receptor did not match with any previously observed state, including the inactive state, suggesting β1AR adopted an alternative conformation in the presence of AS408.”Results

Lab Notes

発現系
Sf9 昆虫細胞で発現し、LMNG で精製。
コンストラクト
七面鳥 β1AR を熱安定化。N 末端・C 末端・IL3 を欠失。
結晶化/グリッド作製
NMR 試料は 13C メチルメチオニンまたは 19F で標識した受容体 20–60 μM。

Related Articles