基質とATPで構造が切り替わる、結核菌のガラクタン輸送体
3つの状態をクライオ電顕で解析。ゲートヘリックスの動きが輸送のカギを握る
3D を読み込んでいます
Proteins & Nucleic Acids
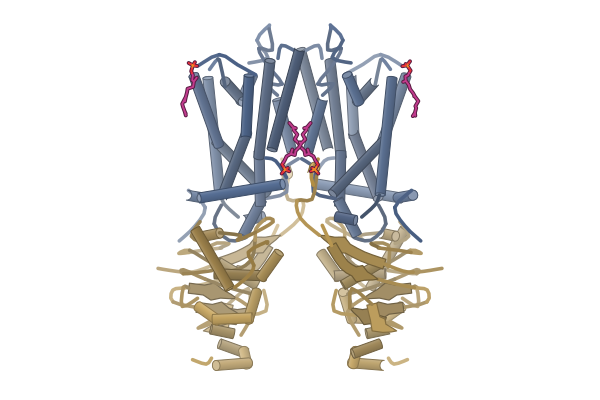
- Wzm(膜貫通)Probable O-antigen/lipopolysaccharide transport integral membrane protein ABC transporter RfbD
- Wzt(ATP 結合)Probable O-antigen/lipopolysaccharide transport ATP-binding protein ABC transporter RfbE
Ligands
- LLG3の脂質(推定)
A1E8P[(2~{Z},6~{E})-3,7,11-trimethyldodeca-2,6,10-trienyl] dihydrogen phosphate
- 疑問・課題
- ABC輸送体のWzmWztは、結核菌の細胞壁の材料になる糖鎖(ガラクタン)を膜の向こう側へ運ぶ。その運び方は未解明だった。
- アプローチ
- 基質とみられる分子が結合した状態、ATPが結合した状態など、WzmWztの3つの姿をクライオ電顕で調べた。
- 結果
- 基質が結合した状態ではゲートヘリックスが上向きに伸び、ATPが結合すると約40 Å下向きに動いて、2つのWztが合わさって二量体になった。
- わかったこと
- 基質が結合するとゲートヘリックスが伸び、二量体になる準備が整う。ATPで二量体になると基質の居場所がつぶれ、基質は膜の通路へ押し出されると考えられる。
- 残された課題
- 界面活性剤DDMが入った中間的な状態が、細胞内でも起こるかは未確認。
Highlights
LLG3と推定した密度は、TMDだけでなくNBDにも接する。ABC輸送体の構造では見られていなかった様式だ。ただし密度から基質の完全な同定はできず、著者は追加の検証が必要だとしている。
原文
“Unexpectedly, each LLG3 is engaged in interactions not only with the two TMDs, but also with the two NBDs”Results
基質結合状態ではNBDのゲートヘリックスが完全に上向きに伸びてTMDと基質に接する。ATPが結合するとゲートヘリックスは約40 Å離れた下向きの状態に移り、NBDが二量化する。TMDのArg48が基質結合部位から外れ、基質が上へ動く足がかりになると推定している。
原文
“The distance between the upward and downward gate helix is ~ 40 Å by measuring the Cα of Ala36”Results
TMD中央の空洞にはDDM分子が2つ入った中間的な状態も捉えた。著者はこの状態が生理的かどうかは未確定とし、LLG3とDDMの結合部位を、立体構造特異的な阻害剤探索の足場になるとしている。ガラクタン経路の阻害剤は報告がない。
原文
“Whether the DDM-bound conformation is physiologically relevant remains to be determined.”Results
Lab Notes
- 発現系
- スメグマ菌(M. smegmatis)で共発現。内在の脂質を複合体ごと回収できる。
- コンストラクト
- Wzt N末端にFLAGタグ。野生型は精製できず、Walker B変異E183Qで精製に成功。
- 精製
- LMNGまたはDDMで可溶化し、抗Flagレジン → サイズ排除クロマトグラフィー(Superose 6)。LMNG試料はGDNに置換。
- 結晶化/グリッド作製
- Quantifoil R0.6/1 Cu 300メッシュ、Vitrobot Mark IV 4°C・湿度100%、ブロット3秒。
- データ収集・解析
- Titan Krios+Gatan K3、ピクセルサイズ0.832 Å、総線量60 e⁻/Ų。cryoSPARCで処理。
Related Articles
- 10.20 · 01Cdr1は、ATPの加水分解後にCヘリックスをピストン状に引き込む同じファミリー(Pfam):ABC_tran、ABC2_membrane
- 11.04 · 01PAβNは、MexBの空洞で3通りの姿をとる同じ種類:トランスポーター
- 10.30 · 06対称な大腸菌FtsEXが、非対称なEnvCを受け止める同じ種類:トランスポーター