Contents

3 Articles
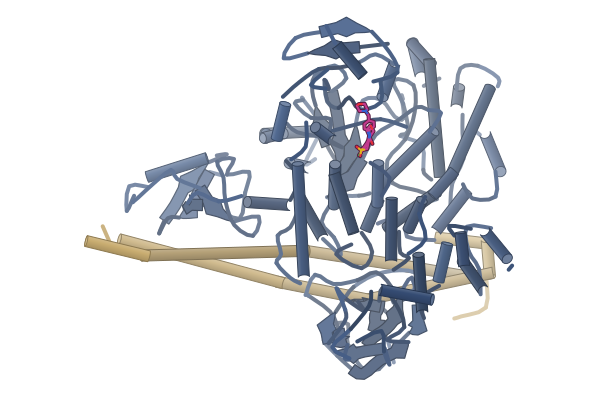
  1. 構造図:ヒトPI3Kδ(p110δ)

    Picked up·Structure Update

    Human PI3Kδ (p110δ)

    ロギノリシブは、PI3Kδ末端のヘリックスを安定化して阻害する

    結晶構造ではkα12は見えず、MDとHDX-MSでイデラリシブとの違いが現れた
  2. 構造図:CBPのNCBD(マウス)

    Structure-Based Study

    Mouse CBP NCBD

    フルオロプロリンの立体が、NCBDの結合力を左右する

    既存のNMR構造2KKJなどと比べ、19F NMRでヘリックスの向きを調べた

  3. 構造図:PD-L1・アベルマブ(ヒト)

    Structure-Based Study

    Human PD-L1 · avelumab

    アベルマブの結合面は、HDX-MSと固体NMRでも結晶構造と一致した

    既存の5GRJと比べて確かめ、PD-L1のC末端の保護も見えた

Picked up Today’s Structure2026.10.121 Article

ロギノリシブは、PI3Kδ末端のヘリックスを安定化して阻害する

結晶構造ではkα12は見えず、MDとHDX-MSでイデラリシブとの違いが現れた
PaperPI3Kδ is selectively inhibited by roginolisib by stabilizing the C-terminal helix kα12

First authorOscar Vadas (University of Geneva, Switzerland)

CorrespondingGerhard Hummer (Max Planck Institute of Biophysics, Germany)

JournalNature Communications

Published2026.10.09

LicenseCC BY 4.0

構造図:ヒトPI3Kδ(p110δ)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • p110δ(触媒サブユニット)Phosphatidylinositol 4,5-bisphosphate 3-kinase catalytic subunit delta isoform
  • p85α(調節サブユニット)Phosphatidylinositol 3-kinase regulatory subunit alpha

Ligands

  • ロギノリシブQGU[6-fluoranyl-1-[4-(morpholin-4-ylmethyl)phenyl]-5,5-bis(oxidanylidene)-4H-thiochromeno[4,3-c]pyrazol-3-yl]-morpholin-4-yl-methanone
疑問・課題
PI3Kのアイソフォームは触媒部位が似ていて選択的に阻害しにくく、ロギノリシブの結合様式がイデラリシブと違うかが課題だった。
アプローチ
ロギノリシブとの結晶構造(2.75 Å)に、分子動力学(MD)と水素重水素交換質量分析(HDX-MS)を組み合わせた。
結果
結晶ではkα12の電子密度が得られなかった。HDX-MSでkα12が交換から守られたのは、ロギノリシブ結合時だけだった。
わかったこと
ロギノリシブはkα12の塩基性残基との相互作用で不活性型を安定化し、δ型への選択性にも関わると著者は考えている。
残された課題
結晶構造ではkα12の電子密度が得られず、その姿はAlphaFoldモデルに基づくMDとHDX-MSから推定している。

Highlights

ロギノリシブは、ヒンジのVal828と水素結合し、Trp760とπ-π相互作用する。イデラリシブが使う特異性ポケットには入らず、DFGモチーフのAsp911は約90°違う向きになる。

原文

“The binding of roginolisib pushes Asp911 into a DFG-in-like configuration. By contrast, idelalisib leaves the residue in a rotated (by 90°) orientation resembling the DFG-out aspartate conformation.”Results

MDでは、ロギノリシブ結合時だけkα12が活性部位側へ倒れ、HDX-MSでもkα12が交換から守られた。p85αのcSH2による阻害を外したY685A変異体では守られず、不活性な酵素を選んで結合するとみられる。

原文

“The situation differs for roginolisib, where protection of the kα12 helix (1022–1044) was only seen for the WT enzyme (Figs. 4a, 5d).”Results

CLL患者の細胞をex vivoで処理すると、ロギノリシブは高用量・2時間でイデラリシブよりPIP3を下げた。ただし解析した患者数は3〜5人と少ない。

原文

“Data are shown as individual patient values, with each symbol representing a single patient (a, b: n = 5; c, d: n = 4; e, f: n = 3).”Figure legends

Lab Notes

発現系
ヒトp110δ(1–1044)とウシp85(431–600)を、別々のウイルスでSf9細胞に共発現(26℃、感染48時間後に回収)。
コンストラクト
p110δはN末端に切断可能なHisタグ付き、p85はタグなし。
精製
Ni Sepharose HPで捕捉 → TEVプロテアーゼでHisタグを除去 → Superdex 200 26/60(Tris/NaCl/DTT)。
結晶化/グリッド作製
5 mg/mLのタンパク質に化合物(10 mM DMSO)を加え、12–14% PEG 6000・MES/NaOH pH 5.75のハンギングドロップ蒸気拡散(20℃)。2〜3日で結晶化。
データ収集・解析
Swiss Light Source、100 K。autoPROC/AIMLESSで処理し、PDB 6PYRを探索モデルに分子置換、BUSTERで精密化。
Related Articles

Structure-Based Study2026.10.122 Articles

フルオロプロリンの立体が、NCBDの結合力を左右する

既存のNMR構造2KKJなどと比べ、19F NMRでヘリックスの向きを調べた

PaperDistinct Molten‐Globule Conformations in an Interacting Protein Domain Resolved by 19F NMR of Fluoroproline Residues

First authorAbir Ben Bouzayene (University of Strasbourg, France)

CorrespondingVladimir Torbeev, Bruno Kieffer (University of Strasbourg, France)

JournalAngewandte Chemie (International Ed. in English)

Published2026.08.22

LicenseCC BY-NC-ND 4.0

構造図:CBPのNCBD(マウス)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 2KKJ(論文が使った既存の構造)

Proteins & Nucleic Acids

  • NCBD(CBPの結合領域)CREB-binding protein
疑問・課題
モルテングロビュール(折りたたみが緩く揺らぐ状態)のNCBDは、構造の詳細を調べにくい。
アプローチ
ループの2か所のプロリンを、立体が逆の4-フルオロプロリン(4R・4S)に置き換え、19F NMRなどで調べた。
結果
NOEによる構造計算で3本のヘリックスの向きが変種ごとに異なり、AD-ACTRとの結合力も変わった。
わかったこと
炭素4位の立体の反転だけで、ヘリックスの向きと結合力が変わった。プロリンは離れた部位の動きの連動を調節しうる。
残された課題
構造計算は単一の立体配座を仮定しており、各変種が取る構造の広がりを定量的には表せない。

Highlights

立体が逆のフルオロプロリンで、3本のヘリックスの向きが変わった。4R体のP13だけが、既存の2KKJ(単独)と1KBH(AD-ACTRとの複合体)に近い向きで、他の3変種は別の角度の組み合わせをとった。

原文

“The three other variants sample helical orientations resulting from different combinations of previously observed α1/α2 and α2/α3 interhelical angles.”Discussion

ITCでは、P13の4R体の方が4S体より強く結合した(KDは277 nMと402 nM)。フッ素は結合界面になくても、19F NMRの信号は結合の有無を反映した。著者はこれを、複合体に近い形に偏った状態が選ばれる機構と考える。

原文

“Our results are consistent with these data with KD of 277 nM for P13(4R) NCBD and 402 nM for P13(4S) NCBD variants at 25 °C, respectively.”Discussion

P30の4R体だけが、中性のpHでアミロイドを作った。この変種のモデルでは第1ヘリックスの向きが他と180°違い、著者は、凝集しやすい部位が溶媒に出る可能性を挙げている。

原文

“Strikingly, for only one variant with 4‐(R)‐Pro at position 30 we observed the self‐assembly into amyloids at neutral pH”Conclusion

Lab Notes

発現系
発現ではなく、固相ペプチド合成で作成した。
コンストラクト
CBPの2066〜2112(47残基)。2077位(P13)か2094位(P30)をフルオロプロリンに置換。
精製
HPLCで精製し、20 mMリン酸緩衝液 pH 7.2に溶かした。
データ収集・解析
1H-1H NOESYを304 K、700・900 MHzで測定し、ARIAで構造計算。19F NMRは565 MHz。

Related Articles

アベルマブの結合面は、HDX-MSと固体NMRでも結晶構造と一致した

既存の5GRJと比べて確かめ、PD-L1のC末端の保護も見えた

PaperCharacterization of Full‐Length Antibody Complexes Through HDX‐Mass Spectrometry Coupled With NMR Spectroscopy: New Insight Into Avelumab/PD‐L1 Interaction

First authorFrancesca Sacco (University of Florence, Italy)

CorrespondingJulian Langer (Max Planck Institute of Biophysics, Germany), Marco Fragai (University of Florence, Italy)

JournalAngewandte Chemie (International Ed. in English)

Published2026.08.22

LicenseCC BY 4.0

構造図:PD-L1・アベルマブ(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 5GRJ(論文が使った既存の構造)

Proteins & Nucleic Acids

  • PD-L1(標的の免疫チェックポイント)avelumab H chain
  • アベルマブ軽鎖(抗体)avelumab L chain
  • アベルマブ重鎖(抗体)Programmed cell death 1 ligand 1
疑問・課題
抗体は大きく柔らかいため、標的との複合体の高分解能の構造は得にくい。
アプローチ
全長のアベルマブとPD-L1の複合体を、HDX-MS(重水素の取り込みの測定)と固体NMRで調べ、既存の5GRJと比べた。
結果
HDX-MSと固体NMRは、5GRJの結合面と一致した。HDX-MSでは、PD-L1のC末端にも強い保護が見られた。
わかったこと
アベルマブと融合タンパク質は同じ結合面でPD-L1に結合する。C末端の保護は、一過性の効果か構築物に特有の挙動かもしれない。
残された課題
PD-L1のC末端と軽鎖の相互作用は、存在も意義も仮説にとどまる。

Highlights

既存の5GRJはscFv(抗体の断片)との複合体だった。この研究は全長のアベルマブを使い、HDX-MSで抗体側の結合部位(パラトープ)を、HDX-MSと固体NMRでPD-L1側の結合部位(エピトープ)を調べた。

原文

“Therefore, these studies typically rely upon fragments of the selected antibodies (such as single‐chain variable fragments, or scFvs) in complex with their targets [23, 24].”Introduction

結合面のCDR3(重鎖)では重水素の取り込みが48〜51%減った。一方、定常領域のCH1ループでは取り込みが増えた。著者はCH1ループの再配置と考え、この付近の改変には慎重さが要ると述べる。

原文

“indicate that any modifications in this region should be approached with caution, given the potential impact on complex formation”Results and Discussion

PD-L1のC末端(K124〜Y134)の強い保護は、HDX-MSだけが示した。5GRJでは見えず、固体NMRでも裏づけられない。ドッキングモデルは軽鎖との相互作用を示すが、著者は一過性か、単離ドメイン由来の見かけとみる。

原文

“It may merely be an artifact related to the use of the isolated V‐set domain, which has a very flexible C‐terminus.”Results and Discussion

Lab Notes

発現系
PD-L1は[U-2H,13C,15N]標識。アベルマブは天然存在比の抗体。
コンストラクト
PD-L1はN末端ドメイン(V-setドメイン)。
データ収集・解析
固体NMRは再水和した凍結乾燥試料を800 MHz、MAS 60 kHz、約290 Kで測定。HDX-MSはPD-L1と複合体(1:2)を比較。

Related Articles

Not Covered