Contents

5 Articles
  1. 構造図:RyR1(ウサギ骨格筋)

    Picked up·Structure Update

    RyR1 (rabbit skeletal muscle)

    ダントロレンは、ATPやADPと積み重なってRyR1に結合する

    RY12ドメインがATP:ADP比のセンサーとして働く可能性がある(実証は今後)
  2. 構造図:DNA-PK–ヌクレオソーム複合体

    New Structure

    DNA-PK–nucleosome complex

    Kuはヌクレオソームの末端で、約2巻き分のDNAをほどく

    DNA-PKcsがKuを内側へ押し込む中間状態も、クライオ電顕で捉えた

  3. 構造図:GPR84–Gi(ヒト)

    Structure Update

    Human GPR84–Gi

    CF3基が2つの残基を押しのけ、β-アレスチンの動員を抑える

    GPR84–Gi複合体の構造。Leu336AlaとPhe187Alaの変異で動員が回復した

  4. 構造図:大腸菌MscL(WT・G22S)

    Structure Update

    E. coli MscL (WT, G22S)

    G22S変異体でもMscLは閉じたままで、違いは動態に現れた

    ナノディスク中の大腸菌MscLを、クライオ電顕(3.5〜3.7 Å)とNMRで解析した

  5. 構造図:赤痢菌IpaD–抗体Fab

    Structure Update

    Shigella IpaD–antibody Fab

    IpaDへの結合部位で、抗体の溶血への効果が分かれる

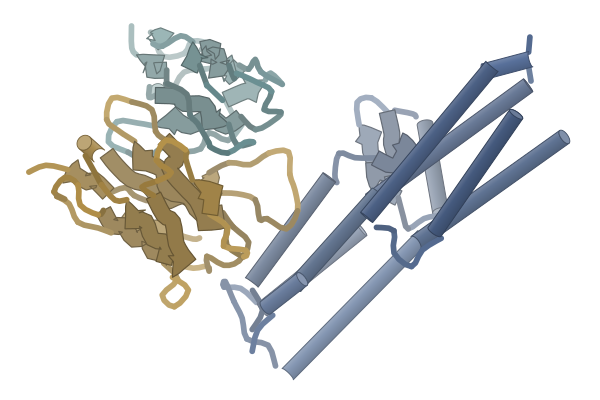
    赤痢菌IpaDと抗体Fabの複合体。遠位ドメインに結合すると溶血を抑え、N末端ドメインでは高めた

Picked up Today’s Structure2026.10.091 Article

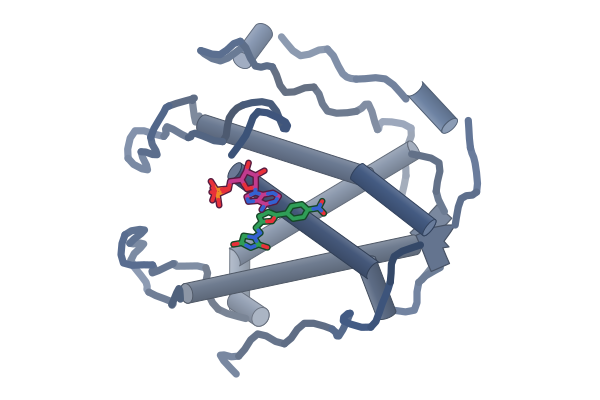
ダントロレンは、ATPやADPと積み重なってRyR1に結合する

RY12ドメインがATP:ADP比のセンサーとして働く可能性がある(実証は今後)
PaperStructural identification of the RY12 domain of RyR1 as an ADP sensor and the target of the malignant hyperthermia therapeutic dantrolene

First authorKookjoo Kim (Columbia University Irving Medical Center, USA)

CorrespondingOliver B Clarke (Columbia University Irving Medical Center, USA)

JournalNature Communications

Published2026.01.01

LicenseCC BY-NC-ND 4.0

構造図:RyR1(ウサギ骨格筋)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • RyR1(リアノジン受容体 1)Ryanodine receptor 1

Ligands

  • ADPAdenosine-5'-Diphosphate
  • ダントロレンU1CDantrolene
疑問・課題
ダントロレンと悪性高熱症の誘発物質が、RyR1のどこにどう結合するかは不明だった。
アプローチ
ダントロレンや4CmCを結合したRyR1をクライオ電顕で解析し、機能も測った。
結果
ダントロレンはRY12ドメインでATPまたはADPと積み重なって結合し、4CmCは4か所に結合した。
わかったこと
RY12ドメインは、ATP/ADP比や小分子を感知するセンサーとして働く可能性がある。
残された課題
4CmCの補助的な3つの結合部位に機能があるのかは、まだ分かっていない。

Highlights

ダントロレンはRY12ドメインのクランプ内で、W996がヒダントイン部分、W882がヌクレオチドのアデニンと積み重なる三元複合体として結合する。ヌクレオチドがないとダントロレンの結合もRY12の閉じも見えなかった。

原文

“in which we can see no evidence of dantrolene binding or RY12 closure (Supplementary Fig. 3)”Results

ATP:ADP比が6:1の条件でも、RY12にはMg2+で架橋された2分子のADPが結合し、ATPは見えなかった。著者はRY12がATP:ADP比のセンサーとして働く可能性を挙げる。機能の実証は今後の課題とされている。

原文

“This raises the intriguing possibility that the RY12 domain functions as a sensor for the ATP:ADP ratio in muscle”Results

MH誘発物質4CmCはコアソレノイド中心の隠れたポケットでQ4020と直接相互作用する。溶媒から入る経路がなく、リガンド結合にはドメインの構造変化が必要と考えられる。補助的な結合部位も3つ見つかった。

原文

“The primary 4CmC molecule, bound to Q4020, is buried in a cryptic pocket without a direct access pathway from the solvent, implying that a conformational change in the CSol domain is required for ligand binding.”Results

Lab Notes

発現系
ウサギ骨格筋から精製。W882A変異体はHEK293T細胞で発現。
コンストラクト
RyR1に過剰量のCaMとcalstabin2(Cs2)を加え、RyR1–Cs2–CaM複合体を形成。
精製
CHAPS可溶化、HiTrap Q陰イオン交換、TSKgel G4SWXLのサイズ排除クロマトグラフィー。
結晶化/グリッド作製
UltrAuFoil R0.6/1 金グリッド、リガンドを加えた試料3 µL、Vitrobot Mark IV 4°C・湿度100%、ブロット4.5〜5.5秒。
データ収集・解析
Titan Krios(K2/K3)、C4対称で対称展開後、RY12をマスクした局所精密化とサブ粒子の3D分類。

Related Articles

New Structure2026.10.091 Article

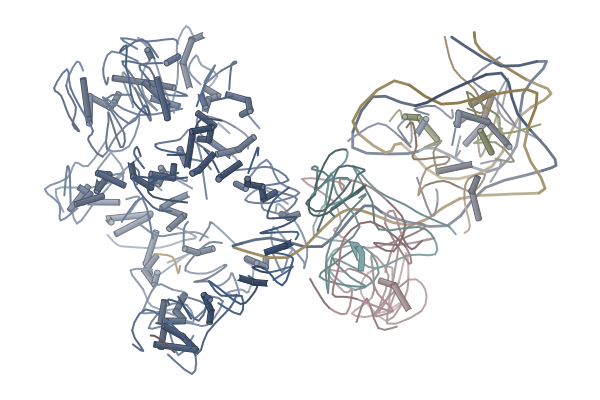
Kuはヌクレオソームの末端で、約2巻き分のDNAをほどく

DNA-PKcsがKuを内側へ押し込む中間状態も、クライオ電顕で捉えた

PaperDNA-PK driven nucleosome unwrapping enables NHEJ in chromatin

First authorWeifeng Lu (Johns Hopkins University, USA)

CorrespondingYuan He (Johns Hopkins University, USA)

JournalNature Communications

Published2026.01.01

LicenseCC BY 4.0

構造図:DNA-PK–ヌクレオソーム複合体
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • DNA-PKcs(PRKDC)DNA-dependent protein kinase catalytic subunit
  • 未同定のペプチドUnknown peptide
  • Ku70(XRCC6)X-ray repair cross-complementing protein 6
  • Ku80(XRCC5)DNA repair protein Ku80
  • ヒストン H3Histone H3
  • ヒストン H4Histone H4
  • ヒストン H2AHistone H2A
  • ヒストン H2BHistone H2B
  • DNA 鎖 1DNA (154-MER)
  • DNA 鎖 2DNA (154-MER)
疑問・課題
Ku・DNA-PKcsは約28 bpの遊離DNAを要するが、クロマチンでは得にくい。DNA-PKcsの役割は不明だった。
アプローチ
ヌクレオソーム上での連結反応を測り、Ku・DNA-PKcsとの複合体をクライオ電顕で解析した。
結果
DNA-PKcsは、DNAに余裕のないヌクレオソーム上でもNHEJを促した。
わかったこと
Kuはヌクレオソームの障壁をDNA-PKcsの助けで越え、段階的にDNAに沿って進むと考えられる。
残された課題
続くNHEJの段階、特にヌクレオソーム上のシナプス複合体の形成は、今後の研究が必要とされる。

Highlights

Ku70のC末端側の領域(ヒストンブリッジ)が、ほどけたH3・H2A面に結合する。この領域を欠いたKuは連結効率が約1/7に落ちた。

原文

“The KuΔ521-528-containing reaction displayed only approximately one-seventh of the ligation efficiency observed with KuWT (Fig. 1f)”Results

DNA-PKcsはリンカーが短い基質で連結を促進した(N-12で約7倍、N0で約3倍)。N7ではDNA-PKcsが5 bpだけ結合した途中状態と、11 bpが収まった完成状態の2状態が見えた。

原文

“In contrast, state 2 shows a fully assembled DNA-PK with an 11 bp DNA-PKcs footprint.”Results

ヌクレオソームを目印にしてDNAリンカーを精密にモデル化し、N20基質では20 bp中17 bpしか密度に入らなかった。DNA末端が部分的に融解している可能性を示す(著者の解釈)。

原文

“However, only 17 bp of the 20 bp linker could be built into the density map with the DNA termini positions right at the location of the DEB helix in an activated DNA-PK”Results

Lab Notes

発現系
KuとDNA-PKcsはHeLa核から精製。LigIV-XRCC4はバキュロウイルス/昆虫細胞で発現。
コンストラクト
ヌクレオソームはXenopusヒストンとWidom 601配列、リンカー長が異なる基質(N-12, N0, N7, N20)。
精製
ストレプトアビジンビーズで複合体を引き下げて溶出し、グルタルアルデヒドで架橋。
結晶化/グリッド作製
自作の酸化グラフェン支持膜グリッド、Vitrobot Mark IV 4°C・湿度100%、サンプル3 µLを7分静置後ブロット。
データ収集・解析
Titan Krios G3(300 kV)、K3またはFalcon 4i+Selectris、CryoSPARC v4.6で解析。

Related Articles

Structure Update2026.10.093 Articles

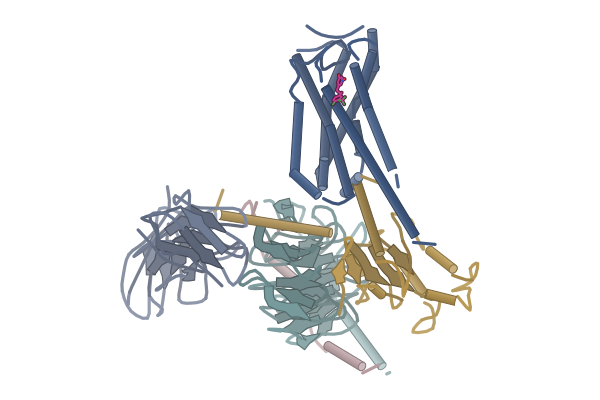
CF3基が2つの残基を押しのけ、β-アレスチンの動員を抑える

GPR84–Gi複合体の構造。Leu336AlaとPhe187Alaの変異で動員が回復した

PaperSteric control of signaling bias in the immunometabolic receptor GPR84

First authorPinqi Wang (University of Oxford, UK)

CorrespondingGraeme Milligan (University of Glasgow, UK), Cheng Zhang (University of Pittsburgh, USA), Irina G. Tikhonova (Queen’s University Belfast, UK) ほか 1 名

JournalNature Communications

Published2026.01.01

LicenseCC BY 4.0

構造図:GPR84–Gi(ヒト)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • GPR84(受容体)G-protein coupled receptor 84
  • Gαi1(G タンパク質 α)Guanine nucleotide-binding protein G(i) subunit alpha-1
  • Gβ1(G タンパク質 β)Guanine nucleotide-binding protein G(I)/G(S)/G(T) subunit beta-1
  • Gγ2(G タンパク質 γ)Guanine nucleotide-binding protein G(I)/G(S)/G(O) subunit gamma-2
  • scFv16(抗体断片)scFv16

Ligands

  • OX04529A1CKT5-[3-[4-chloranyl-3-(trifluoromethyl)phenyl]propyl]-1-oxidanyl-pyridin-3-ol
疑問・課題
GPCRのバイアスアゴニストを合理的に設計するには、機構の理解が足りなかった。
アプローチ
OX04529とGPR84–Gi複合体のクライオ電顕構造を決め、MDと変異体で検証した。
結果
OX04529の置換基がLeu336とPhe187に干渉し、β-アレスチン動員に必要な極性ネットワークを乱す。
わかったこと
置換基の立体的な大きさに基づく、バイアス型アゴニストの設計モデルを示した。
残された課題
GPR84とβ-アレスチンの相互作用が貪食作用を高めるか抑えるかは、分かっていない。

Highlights

OX04529は既知の6-OAUとほぼ同じ姿勢で結合するが、CF3基がTM5/TM6側を向き、Leu336とPhe187の側鎖配置が変わる。既報の他のGPR84–Gi構造では見られない配置だった。

原文

“indicated the altered positioning of Phe1875.47 and Leu3366.52 was only produced by OX04529”Results

Leu336AlaとPhe187Ala変異は、OX04529によるβ-アレスチン動員を回復させつつ、Gi活性化は保った。この立体障害がバイアスの原因という仮説に実験的な支持を与える。

原文

“Remarkably, although as noted earlier, OX04529 was a weak partial agonist at wild type GPR84, this ligand became a potent (Supplementary Table 4), full agonist in promoting interactions with both β-arrestin-1 and β-arrestin-2 in HEK293T cells at Leu3366.52Ala GPR84”Results

3位の置換基を変えた類縁体ライブラリーで、β-アレスチン-2の最大効力はファンデルワールス体積と負の相関を示した。電子的性質や疎水性は主因ではないと著者は結論する。

原文

“this strongly suggests that steric factors, rather than electronic effects or lipophilicity are dominant in determining β-arrestin-2 recruitment and hence the extent of ligand bias.”Results

Lab Notes

発現系
GPR84、DNGαi1、Gβ1γ2をSf9細胞にBac-to-Bacで共発現。
コンストラクト
GPR84のC末端にNanoBiTのLgBiTを15残基リンカーで融合。Flag/His8タグ付き。
精製
LMNG/CHSで可溶化し、Niアフィニティ、抗Flag M1、scFv16を加えてSuperdex 200 Increase。全工程でOX04529を1 µM維持。
結晶化/グリッド作製
プラズマ処理した1.2/1.3 UltrAuFoil 300メッシュ、試料3 µL、Vitrobot Mark IV。
データ収集・解析
Titan Krios(K3、スーパー解像度)、8,671ムービー、cryoSPARCで解析。

Related Articles

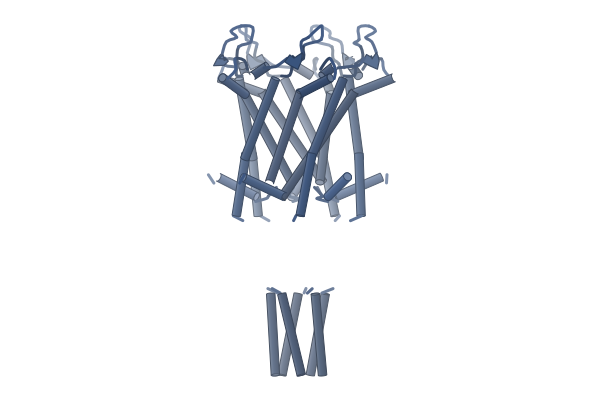
G22S変異体でもMscLは閉じたままで、違いは動態に現れた

ナノディスク中の大腸菌MscLを、クライオ電顕(3.5〜3.7 Å)とNMRで解析した

PaperAtomic structure and dynamics of the mechanosensitive channel MscL from Escherichia coli by cryo-EM and solid-state NMR

First authorTaoran Xiao (Leibniz-Forschungsinstitut für Molekulare Pharmakologie (FMP), Germany)

CorrespondingAdam Lange (Leibniz-Forschungsinstitut für Molekulare Pharmakologie (FMP), Germany)

JournalScience Advances

Published2026.10.09

LicenseCC BY-NC 4.0

構造図:大腸菌MscL(WT・G22S)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • MscL(機械受容チャネル)Large-conductance mechanosensitive channel
疑問・課題
大腸菌MscLの全体構造は未決定で、ゲート開閉の仕組みも不完全にしか分かっていなかった。
アプローチ
野生型とG22S変異体をナノディスク中でクライオ電顕解析し、リポソーム中のNMRで動態を調べた。
結果
クライオ電顕ではどちらも閉じた構造だった。G22SではNMRで広い範囲の構造変化が見えた。
わかったこと
変異体は動態が大きく、閉状態から開状態への初期の移行が見えているとされる。
残された課題
開状態の構造を実験で決めることが、今後の課題とされる。

Highlights

大腸菌MscLの全長構造は未報告で、著者はMSPナノディスク中のWTを3.7 Å、G22Sを3.5 Åで決定したと述べる。分解能が低く、モデルは主にAlphaFold3予測を密度に当てはめて作られている。

原文

“Here, we present the first high-resolution cryo-EM structure of WT EcMscL in MSP-based nanodiscs (3.7 Å; Fig. 2A).”Discussion

低閾値のG22S変異体でも構造は閉状態のままで、K31–D84の塩橋も保たれた。機能差は静的構造ではなく動態にあることを示唆する。G22Sでは脂質尾部の密度がTM2の疎水ポケット(F83、L86、F90)に見えた。

原文

“The preservation of this salt bridge in the G22S mutant indicates minimal conformational changes in the periplasmic region.”Results

リポソーム中のssNMRを併用し、G22Sでは周辺質ループ(59–61、64–72)の信号が消え、張力センサーとされるF78には新しいピークが現れた。クライオ電顕で見えない動態を補う組み合わせだ。

原文

“new peaks emerge in the G22S spectra (purple), particularly F78, a residue previously identified as a key tension sensor critical for channel gating (58)”Results

Lab Notes

発現系
pET21aベクターで大腸菌BL21(DE3)に発現。NMR用は13C/15N均一標識(M9培地)。
コンストラクト
全長のWTとG22S変異体。足場はMSP1E3D1(TEV切断可能な7×Hisタグ)。
結晶化/グリッド作製
MscL:MSP1E3D1:大腸菌脂質を1:4:240でナノディスクに再構成。グリッドは300メッシュR1.2/1.3金、4 µL(0.4 mg/ml)、Vitrobot 4°C・湿度95%、ブロット2または4秒。
データ収集・解析
Titan Krios G3i+K3、BioQuantumフィルター、cryoSPARC v4.6.2とRelion 5.1で解析。

Related Articles

IpaDへの結合部位で、抗体の溶血への効果が分かれる

赤痢菌IpaDと抗体Fabの複合体。遠位ドメインに結合すると溶血を抑え、N末端ドメインでは高めた

PaperMultifunctional antibody responses from a primate Shigella outbreak inform vaccine design

First authorRobert M. Gallant (IAVI Neutralizing Antibody Center, USA)

CorrespondingSaverio V. Capuano (University of Wisconsin-Madison, USA), Hayden R. Schmidt (IAVI Neutralizing Antibody Center, USA)

JournalScience Translational Medicine

Published2026.09.02

LicenseCC BY 4.0

構造図:赤痢菌IpaD–抗体Fab
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • IpaD(赤痢菌)Invasin IpaD
  • D13r-34 抗体 Fab(重鎖)D13r-34 antibody fragment heavy chain
  • D13r-34 抗体 Fab(軽鎖)D13r-34 antibody fragment light chain
疑問・課題
赤痢菌のワクチンは未承認で、免疫の構造的・分子的な決め手が分かっていなかった。
アプローチ
サルの赤痢集団感染の検体から抗体を単離し、IpaDとの複合体をクライオ電顕で解析した。
結果
溶血を抑える抗体はIpaDの遠位ドメインに、溶血を高める抗体はN末端ドメインに結合した。
わかったこと
結合する場所で抗体の働きが分かれる。防御に働く応答を選ぶ抗原設計に役立つとされる。
残された課題
再設計したIpaDが防御的な抗体応答を起こすかは、今後の検証が必要とされる。

Highlights

IpaDへの結合部位が機能を分ける。溶血を抑えるD13r.34とD02-F2は遠位ドメインに、溶血を高めるD02-E4はN末端ドメインのα1とα2に結合する。D02-F2とD02-E4は既報のIpaD抗体が認識しない領域に結合する。

原文

“In contrast, D02-F2 and D02-E4 bound regions of IpaD not recognized by previously reported IpaD mAbs (51, 54).”Results

エピトープ内に変異を入れたIpaDで結合が消えることを確認した。著者は、有害な抗体応答だけを除き防御的な応答を残すIpaD抗原を設計できる可能性を挙げるが、予備的な結果と位置づけている。

原文

“our preliminary epitope-specific IpaD mutagenesis suggests that rational design of IpaD variants may enable selective ablation of disease-enhancing antibody responses while preserving those that lead to inhibition of hemolysis”Results

Related Articles