Contents

4 Articles
  1. 構造図:QatBC(大腸菌 QatABCD)

    Picked up·Structure Update

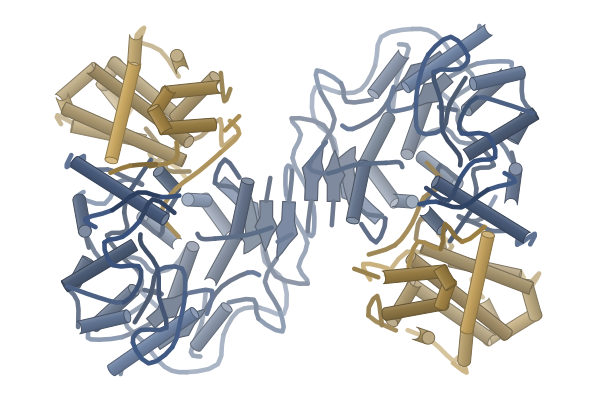
    QatBC (E. coli QatABCD)

    QatBのN末端が、QatCの活性部位に入り込んでいた

    抗ファージ防御系QatBCの結晶構造。挿入部に変異を入れると防御が弱まった
  2. 構造図:FlhAC A489E(サルモネラ)

    Structure Update

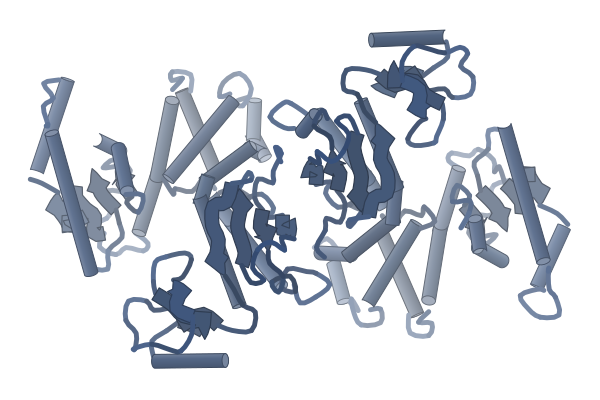
    FlhAC A489E (Salmonella)

    A489Eは塩橋網を組み換え、基質切り替えを助ける可能性がある

    サルモネラのFlhAC A489E抑制変異体の結晶構造。Arg-386周辺の塩橋網が変わっていた

  3. 構造図:HIV-1プロテアーゼ PRp51

    Structure Update

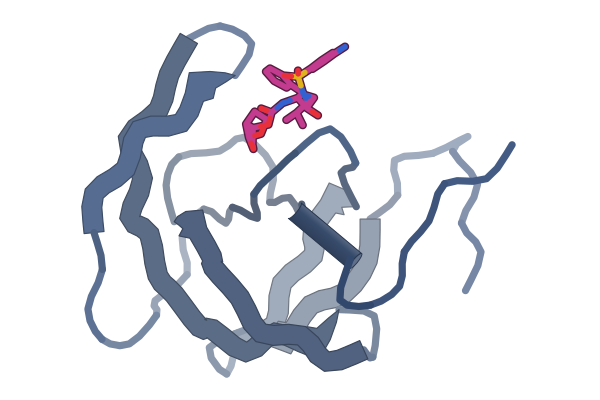
    HIV-1 protease PRp51

    HIVプロテアーゼでは、離れた置換が活性部位を広げる可能性がある

    14置換のPRp51とダルナビルの結晶構造では差が小さく、違いはMDで現れた

  4. Structure Update

    Firefly luciferase (during translation)

    ホタルルシフェラーゼは、翻訳されながら少しずつ折りたたまれる

    力プロファイル解析とクライオ電顕(平均2.3 Å)で、リボソーム上の新生鎖を追った

Picked up Today’s Structure2026.10.081 Article

QatBのN末端が、QatCの活性部位に入り込んでいた

抗ファージ防御系QatBCの結晶構造。挿入部に変異を入れると防御が弱まった
PaperStructural and functional insights into QueC-family protein in QatABCD anti-phage system

First authorZirui Gao (Beijing University of Chemical Technology, China)

CorrespondingYi Zhang (Beijing University of Chemical Technology, China)

JournalNature Communications

Published2026.01.01

LicenseCC BY-NC-ND 4.0

構造図:QatBC(大腸菌 QatABCD)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • QatC(QueC 型タンパク質)7-cyano-7-deazaguanine synthase
  • QatBDUF5610 domain-containing protein
疑問・課題
QatABCDの作用機構と、特徴的な構成要素QatCの機能は不明だった。
アプローチ
QatBC複合体のapo型とATP結合型を結晶構造解析し、変異体の抗ファージ活性を調べた。
結果
QatBのN末端ループがQatCの触媒中心に入り込む。この部分や触媒残基は防御に必須だった。
わかったこと
QatCはCap9と同様に、タンパク質を修飾する酵素とみられる。
残された課題
QatCが実際にどんな反応を触媒するかは、いまも分かっていない。

Highlights

QatBのN末端ループがQatCの推定活性部位に挿入され、CBASSのCap9–CdnDと同様の配置をとる。QatBがQatCの基質である可能性を示唆し、ペプチド解析ではQatB N末端のNDG修飾も検出された(修飾効率は低いとみられる)。

原文

“identified an NDG-modified N-terminal peptide (GTSKAY) from QatB”Results

ATP結合型(2.66 Å)ではF235がアデニンとπ–πスタッキングし、SXGXDSモチーフがβ・γリン酸を配位する。CDGの密度はなく、ATPピロホスファターゼ活性も検出できず、QatCの本来の基質は未解明のままだ。

原文

“EcQatC does not exhibit obvious ATP pyrophosphatase activity either in the presence or absence of CDG”Results

QatBのN末端を天然のまま得るため、Gly2のコドンをUlp1切断部位に直結した。N末端へのHisタグ付加は防御活性を著しく下げることが分かっており、この工夫が必要な理由になる。

原文

“adding an N-terminal His-tag before QatB M1 all severely decreased the anti-phage activity of the Qat system”Results

Lab Notes

発現系
大腸菌BL21(DE3)。OD600 0.8で0.2 mM IPTG、18 ℃で12時間誘導
コンストラクト
N末端His6-SUMO融合(Ulp1切断)。QatBはGly2から始まる天然のN末端を再現
精製
Ni-NTAでUlp1切断後、Superdex 200 increase 10/300 GLでゲルろ過
結晶化/グリッド作製
15 mg/mL、シッティングドロップ蒸気拡散、18 ℃。ATP型は1 mM ATP・1 mM CDG・2 mM MgCl2を氷上1時間プレインキュベート
データ収集・解析
SSRF BL02U1、0.979 Å、EIGER2 X 9M。AlphaFold2予測モデルで分子置換、PHENIXで精密化

Related Articles

Structure Update2026.10.083 Articles

A489Eは塩橋網を組み換え、基質切り替えを助ける可能性がある

サルモネラのFlhAC A489E抑制変異体の結晶構造。Arg-386周辺の塩橋網が変わっていた

PaperStructural basis for substrate specificity switching revealed by the FlhA(A489E) suppressor mutation

First authorMotoshi Sakai (The University of Osaka, Japan)

CorrespondingTohru Minamino (The University of Osaka, Japan)

JournalBiophysics and Physicobiology

Published2026.01.01

LicenseCC BY-NC-SA 4.0

構造図:FlhAC A489E(サルモネラ)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • FlhAC(A489E 変異体)Flagellar biosynthesis protein FlhA
疑問・課題
鞭毛のIII型分泌装置が基質特異性を切り替える構造的な仕組みは不明だった。
アプローチ
FlhAC(A489E)を結晶構造解析し、FlhBとの結合をAlphaFold3で予測した。
結果
A489EはArg-386とGlu-483周辺の塩橋網を組み換え、α2ヘリックスの位置が少しずれた。
わかったこと
この変化が、基質特異性の切り替えに伴う構造変化の障壁を下げる可能性がある。

Highlights

野生型ではArg-386がGlu-483と塩橋を作る。A489Eの半閉型ではArg-386がGlu-489側に引かれてGlu-483から離れ、開型ではGlu-489とGlu-483の両方と塩橋を作る。野生型にない静電ネットワークが現れた。

原文

“These interactions generate an alternative electrostatic network that is not observed in the wild-type structure”Results

AlphaFold3の5モデルすべてで、FlhBのC末端尾部がFlhA D1ドメインのα2–β2の溝に置かれた。この溝はフィラメント型リングでの隣接サブユニットのリンカー結合部位と重なる。ただし結合は予測であり、実験では示していない。

原文

“the α2–β2 groove overlaps with the binding site for the flexible linker region of FlhAC”Results

Arg-386をAlaに置換した変異体は、FliH・FliIがあれば運動性と分泌が正常だが、FliH・FliIを欠くと両方が阻害された。ATPase複合体が働かない条件でこの塩橋網が重要になることを示唆する。

原文

“the flhA(R386A) substitution inhibited both motility (Figure 5A, middle panel) and protein export (Figure 5B, middle panel) in the absence of FliH and FliI.”Results

Lab Notes

発現系
大腸菌BL21(DE3)、LB培地、30 ℃で一晩培養
コンストラクト
N末端His-tag付きFlhAC(A489E)(pYI104-SP3)
精製
HisTrap HP 5 mL、続いてSuperdex 75 10/300 GL。10 mg/mLに濃縮
結晶化/グリッド作製
シッティングドロップ蒸気拡散。形態1はPEG 3000・リン酸pH 6.2・グリセロール、形態2はPEG 3000・HEPES pH 7.5・NaCl、いずれも20 ℃
データ収集・解析
SPring-8 BL41XU・BL45XU。MOSFLM・AIMLESSで処理し、6AI0と3A5Iを鋳型に分子置換

Related Articles

HIVプロテアーゼでは、離れた置換が活性部位を広げる可能性がある

14置換のPRp51とダルナビルの結晶構造では差が小さく、違いはMDで現れた

PaperDistal amino-acid substitutions contribute to HIV protease inhibitor resistance as directly as proximal amino-acid substitutions

First authorDebananda Das (National Institutes of Health, USA)

CorrespondingDebananda Das, Hiroaki Mitsuya (National Institutes of Health, USA)

JournalScientific Reports

Published2026.01.01

LicenseCC BY 4.0

構造図:HIV-1プロテアーゼ PRp51
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • HIV-1 プロテアーゼProtease

Ligands

  • ダルナビル017(3R,3As,6Ar)-Hexahydrofuro[2,3-B]Furan-3-Yl(1S,2R)-3-[[(4-Aminophenyl)Sulfonyl](Isobutyl)Amino]-1-Benzyl-2-Hydroxypropylcarbamate
疑問・課題
耐性置換は主要と副次に分けられるが、この二分類に明確な定義はなかった。
アプローチ
14置換のPRp51とダルナビルの複合体を結晶構造解析し、分子動力学(MD)で調べた。
結果
野生型との差は、残基間距離も活性部位の容積も、ダルナビル複合体の方がGRL142複合体より大きかった。
わかったこと
近い置換と離れた置換が協調して働く。主要・副次の二分類は単純すぎる可能性がある。

Highlights

PRp51はダルナビルに対しKiで大きく低下するが、GRL142では低下が小さい。抗ウイルス活性(EC50)の低下はダルナビルが353倍、GRL142が88倍だった。構造に基づく設計で耐性変異に強い阻害剤を作れる余地を示す。

原文

“GRL142 maintained good potency and had much smaller fold reductions in its Ki and EC50 values”Results

結晶構造だけでは耐性を説明できなかった。14置換のうち活性部位に直接接するのは主にVal82とIle84で、残り11個は直接結合しない。MDで初めて、フラップの開閉と活性部位容積の差として違いが現れた。

原文

“The other eleven residues that underwent substitutions did not have a direct binding interaction with DRV.”Results

MDでは、活性部位容積が結晶構造の値から100 Å3以内に収まる集団がダルナビル–PRwtで61%、ダルナビル–PRp51で29%だった。GRL142では84%と61%。著者は離れた置換が拡張に寄与すると解釈している。

原文

“only 29% of the DRV-PRp51 population has an active site volume within 100 Å3 of the DRV- PRwt active site volume”Results

Lab Notes

発現系
大腸菌Rosetta (DE3) pLysS、ZYM-5052系の自己誘導培地、37 ℃で20〜22時間。封入体として回収
精製
封入体を尿素で洗浄後、ギ酸で変性。逆相クロマトグラフィー(RESOURCE RPC)後に脱塩し、中和バッファーでリフォールド
結晶化/グリッド作製
ハンギングドロップ蒸気拡散。ダルナビル複合体は0.15 M 硫酸アンモニウム、0.1 M HEPES pH 7.0、20% PEG 4000。30%グリセロールで凍結保護
データ収集・解析
ダルナビル複合体はSPring-8 BL44XU(0.9 Å)。既報の別のプロテアーゼ構造を探索モデルに分子置換、Refmacで精密化

Related Articles

ホタルルシフェラーゼは、翻訳されながら少しずつ折りたたまれる

力プロファイル解析とクライオ電顕(平均2.3 Å)で、リボソーム上の新生鎖を追った

PaperQuasi-continuous cotranslational compaction and folding of a multidomain protein

First authorSpyridoula Mitsikosta (Stockholm University, Sweden)

CorrespondingGunnar von Heijne, Ane Metola (Stockholm University, Sweden)

JournalNature Communications

Published2026.01.01

LicenseCC BY 4.0

構造図:ホタルルシフェラーゼ(翻訳中)
疑問・課題
共翻訳フォールディングの研究は、小さな単一ドメインのタンパク質に偏っていた。
アプローチ
力プロファイル解析で、550残基のホタルルシフェラーゼの折りたたみを追った。
結果
中程度の力を生む圧縮・折りたたみが連なり、RF-2ドメインの折りたたみで大きな力が出た。
わかったこと
折りたたみは、少数の協同的な段階が順に進むだけの単純な過程ではなかった。

Highlights

共翻訳フォールディングは、はっきりした少数の折りたたみ転移の連続ではなく、準連続的な圧縮・折りたたみの連なりだった。RF-2ドメインの折りたたみが突出した大きな力のイベントを生み、低い力の数か所は別々の折りたたみ中間体の形成を示すと考えられる。

原文

“Our analysis uncovers a cotranslational compaction/folding process that is rich in detail and not just a simple succession of a few distinct, cooperative folding transitions.”Abstract

力プロファイルの初期ピークに対応する3つの新生鎖(N=110, 130, 190残基)をクライオ電顕(平均2.3 Å)で見ると、出口トンネル内に大きな折りたたみドメインは見えなかった。初期のピークはトンネル内での安定な部分構造の形成ではなく、リボソームの外での新生鎖の圧縮を表す。

原文

“structures were determined at an average resolution of 2.3 Å. For all three constructs, stalled NCs were readily apparent in the ET but with only small compact densities evident near the uL24 loop in the exit port”Results

シャペロンTrigger Factorは、RF-2ドメインの中央部とC末端ドメインの初期が合成されるタイミングで新生鎖と広く相互作用する。折りたたみのどの段階でシャペロンが働くかを、力プロファイルの変化として残基解像度で捉えている。

原文

“Trigger Factor interacts extensively with the nascent chain when the central part of RF-2 and the early parts of the CTD are synthesized.”Abstract

Lab Notes

発現系
クライオ電顕用はN末端に6xHisタグを付けたFLucをpET19bから、E. coli BL21(DE3)で1 mM IPTG誘導。SecM(3W)の強い翻訳停止配列で新生鎖を停止させた。
コンストラクト
N=110, 130, 190残基の3つの停止コンストラクト。
精製
停止させたリボソーム–新生鎖複合体(RNC)を精製。
結晶化/グリッド作製
Vitrobotでプランジ凍結(ブロット3秒・待機15秒、湿度100%、4°C)。
データ収集・解析
Krios G3i(300 kV)+Gatan K3、ピクセルサイズ0.825 Å、総線量40 e–/Ų。CryoSPARC 4.3.0で処理(P-site tRNAを持つ粒子を選別)。

Related Articles