Contents

4 Articles
  1. 構造図:Hda–DnaN(大腸菌)

    Picked up·New Structure

    Hda–β clamp (DnaN) complex (E. coli)

    Hda–βクランプ複合体は、濃度に応じて組み合わせを変える

    クライオ電顕で4つの状態を解析。八量体では活性中心のアルギニンが埋まる
  2. 構造図:CFAT(C. ochracea)

    New Structure

    COCFAT (Capnocytophaga ochracea)

    システイン酸を選ぶ酵素は、二量体の境目に結合ポケットを持つ

    細菌のスルホ脂質をつくるCFATの結晶構造。基質結合型は2.46 Å

  3. Structure Update

    CorA KS-AT didomain (Corallococcus exiguus)

    ループ状のふたが、CorAに多様な基質を受け入れさせる

    NRPS-PKS融合酵素CorAのKS-ATをクライオ電顕で解析。12種の産物ができる

  4. 構造図:LipA(大腸菌)

    Structure-Based Study

    Lipoyl synthase LipA (E. coli)

    リポ酸合成酵素は、Ser308が鉄を離すかどうかで反応が分かれる

    既存の結晶構造を土台に、変異体の活性と分光で調べた

Picked up Today’s Structure2026.10.251 Article

Hda–βクランプ複合体は、濃度に応じて組み合わせを変える

クライオ電顕で4つの状態を解析。八量体では活性中心のアルギニンが埋まる
PaperReversible autoinhibition of the bacterial replication-licensing Hda–β clamp complex

First authorXuguang Jiang (The University of Tokyo, Japan)

CorrespondingMasahide Kikkawa (The University of Tokyo, Japan)

JournalNucleic Acids Research

Published2026.10.23

LicenseCC BY 4.0

構造図:Hda–DnaN(大腸菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • DnaN(βクランプ)Beta sliding clamp
  • Hda(調節因子)DnaA regulatory inactivator Hda

Ligands

  • ADPAdenosine-5'-Diphosphate
疑問・課題
DNA複製の再開始を防ぐ Hda–DnaN 複合体が、不活性な八量体からどう活性な形に切り替わるかは不明だった。
アプローチ
クライオ電顕と質量フォトメトリーで、濃度を変えながら複合体の分子量と構造を調べた。
結果
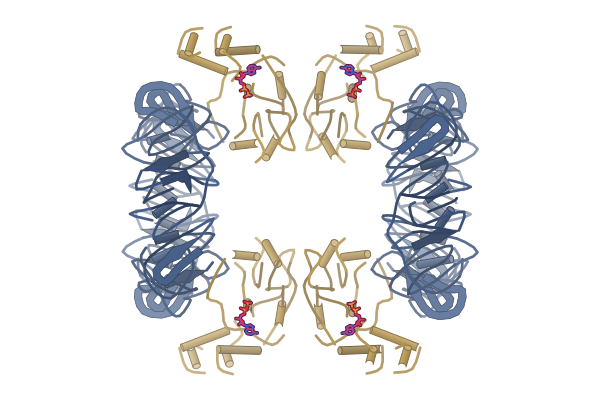
濃度で割合が変わる複数の集合状態があり、八量体・六量体・三量体の構造を3.12〜3.43 Åで得た。
わかったこと
八量体ではArg153が界面に埋まり、三量体では露出する。濃度が下がると活性な形が増えるという制御が考えられる。
残された課題
生きた細胞でこれらの状態がどれだけ存在するかは、今後の確認が必要である。

Highlights

八量体のクライオ電顕構造は、以前の結晶構造とよく重なった(RMSD 約 1.8 Å)。DnaA の ATP 加水分解に必要な Arg153 は、Hda どうしの界面に埋まっていた。

原文

“Notably, the catalytic Arg153 is buried within this interface, consistent with an autoinhibited state that prevents interaction with DnaA.”Results

八量体から Hda の二量体が1つ外れた六量体では、Hda どうしの界面だけが大きく変形し、Hda と DnaN の界面はほぼ保たれた。この中間状態は、八量体と三量体をつなぐ分解の経路を示すと著者は考えている。

原文

“Our interface comparison shows that the HD interface remains largely unchanged, whereas the HH interface undergoes distortion, particularly in helices α7 and α9 (Fig. 4c), consistent with the reduced binding energy (Fig. 2d, right panel).”Results

ゲルろ過では状態を分けられなかったが、質量フォトメトリーは濃度を下げるごとに低分子量側へ移る複数の集団を直接捉えた。単粒子の分類と組み合わせて、共存する状態を構造と結びつけた。

原文

“In contrast, MP directly detected multiple coexisting species in solution, while cryo-EM provided structural snapshots of these assemblies.”Discussion

Lab Notes

発現系
Hda と His タグ付き DnaN を大腸菌 BL21 (DE3) で共発現。0.3 mM IPTG、16 ℃ で 20 時間。
コンストラクト
大腸菌の DnaN は N 末端 His6 タグ付きで pET-28a、Hda はタグなしで pET-21b に入れた。
精製
Ni–NTA アフィニティのあと Superdex 200 Increase でゲルろ過。約 10 mg/ml に濃縮した。
結晶化/グリッド作製
1.5 mg/ml(約 6 μM)の複合体 3 μl を Quantifoil R1.2/1.3 に載せ、Vitrobot Mark IV で急速凍結した。
データ収集・解析
JEOL CRYO ARM 200(200 kV)と Gatan K3 で 12 396 本の動画を収集。ピクセルサイズ 0.571 Å。cryoSPARC で処理。

Related Articles

New Structure2026.10.251 Article

システイン酸を選ぶ酵素は、二量体の境目に結合ポケットを持つ

細菌のスルホ脂質をつくるCFATの結晶構造。基質結合型は2.46 Å

PaperStructural and Functional Characterization of Cysteate Fatty Acyltransferases Involved in Bacterial Sulfonolipid Biosynthesis

First authorCuiping Pang (Shenzhen University Medical School, China)

CorrespondingJiahai Zhou (Chinese Academy of Sciences, China), Xiaoyu Tang (Institute of Chemical Biology, China)

JournalACS Bio & Med Chem Au

Published2026.10.24

LicenseCC BY-NC-ND 4.0

構造図:CFAT(C. ochracea)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • CFAT(アシル転移酵素)Cysteate-C-fatty acyltransferase

Ligands

  • PLP–システイン酸A1FBS(2~{R})-2-[(~{E})-[2-methyl-3-oxidanyl-5-(phosphonooxymethyl)pyridin-4-yl]methylideneamino]-3-sulfo-propanoic acid
疑問・課題
細菌のスルホ脂質(スルホ基を持つ脂質)の材料になるシステイン酸を、合成酵素がどう受け止めるかは未解明だった。
アプローチ
系統解析、6種の酵素の活性測定、X線結晶構造解析、構造をもとにした変異体解析を組み合わせた。
結果
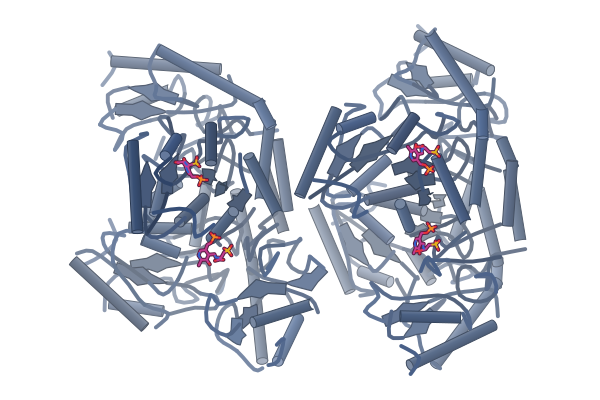
二量体の境目にポケットがあり、触媒の骨格はSPTと同じで、基質結合ポケットだけが作り替えられていた。
わかったこと
セリンを使うSPTと触媒の骨格は共通で、二量体の境目での基質結合部位の作り替えが、基質の違いに関わる可能性がある。
残された課題
SPT型の残基に置き換えても、セリンを使う活性は生まれなかった。

Highlights

基質のシステイン酸は、補因子 PLP(ビタミン B6 由来)と結びついた中間体の形で見えた。スルホ基には Asn52・His139・Lys250 が水素結合し、隣のサブユニットの残基もポケットをつくる。

原文

“Several residues directly contact the cysteate moiety: Asn52, His139 and Lys250 form hydrogen bonds with the sulfonate group (Figures B and S5), whereas Gly81, Ala82, Met277 and Phe278 from the neighboring protomer contribute to the steric environment around the cysteate side chain (Figures B and S5).”Results and Discussion

セリンを使う通常の SPT(セリン パルミトイル転移酵素)と比べると、PLP まわりの触媒の配置はほぼ同じで、違いは基質の側鎖を受ける環境に集中していた。

原文

“Together, these observations indicate that CFAT and SPT retain a highly conserved PLP-dependent catalytic framework but differ substantially in the architecture of the substrate-binding pocket.”Results and Discussion

ポケットの周りをSPT型の残基に置き換えても、セリンを使う活性は出なかった。19 か所を置換した変異体は正しく折りたたまれなかった。両者の配列の一致は約 30% で、基質の選び方は局所の置換だけでは変えにくいらしい。

原文

“The most extensively redesigned COCFAT variant, containing 19 substitutions, was not properly folded, limiting the extent to which the pocket could be rewired within the native protein scaffold.”Results and Discussion

Lab Notes

発現系
大腸菌で発現。N 末端に His6 タグ。16 ℃ で 22 時間培養。
コンストラクト
C. ochracea の COCFAT など 6 種の遺伝子を大腸菌用にコドン最適化し、pET28a(+) に組み込んだ。
精製
Ni 親和性カラムのあと、PLP 0.2 mM を含む緩衝液で Superdex 200 のゲルろ過。
結晶化/グリッド作製
10–12 mg/mL に濃縮し、シッティングドロップ蒸気拡散法で 16 ℃ で結晶化。基質結合型はシステイン酸との共結晶化。
データ収集・解析
上海放射光施設(SSRF)の BL19U1 で回折データを収集。AlphaFold の予測モデルを検索モデルに分子置換で解いた。

Related Articles

Structure Update2026.10.251 Article

ループ状のふたが、CorAに多様な基質を受け入れさせる

NRPS-PKS融合酵素CorAのKS-ATをクライオ電顕で解析。12種の産物ができる

PaperInsights into pyrazinone biosynthesis from biochemical and cryo-EM studies of the hybrid NRPS-PKS enzyme CorA

First authorQingyu Yang (Shandong University, China)

CorrespondingHang Zhang, Wei Zhang (Shandong University, China)

JournalEngineering Microbiology

Published2026.10.08

LicenseCC BY 4.0

構造図:CorA KS-AT(粘液細菌)
疑問・課題
ペプチド合成とポリケチド合成の融合酵素 CorA が、多様な基質をどう受け入れるのかは未解明だった。
アプローチ
全長 CorA の試験管内反応、KS-AT 二ドメインのクライオ電顕、変異体、ドッキングで調べた。
結果
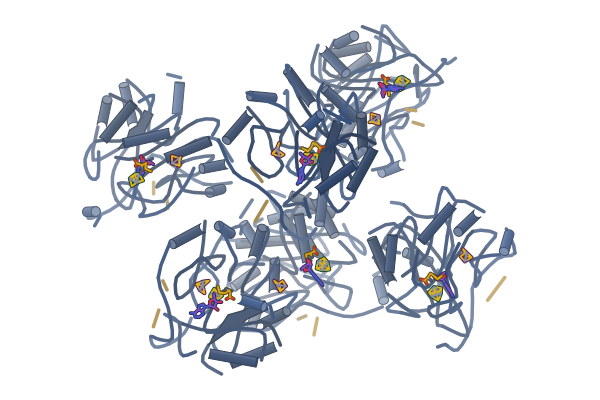
全長 CorA は12種の産物をつくった。KS-AT 二量体は3.13 Åで、KS のふたがらせんでなくループだった。
わかったこと
KS のふたがループであることが大きな基質の受け入れを支え、AT の SGFH モチーフが2種の伸長基質を受け入れるらしい。
残された課題
解けたのは KS-AT 二ドメインだけで、NRPS 側の領域は見えなかった。

Highlights

ふつうの PKS の KS ドメインでは、活性部位のふたがらせんをつくる。CorA ではこれが柔らかいループに置き換わり、アミノ酸由来の大きな中間体が入る内側のポケットが広く開いていた。

原文

“Specifically, the inner acyl pockets of CorA-KS domain and other NRPS-PKS hybrid KS domains are substantially more spacious and open than those of canonical type I PKSs (Figure S23).”Results and discussion

CorA の KS のふたを DEBS モジュール 5 のらせん型に置き換えた変異体では、6 つの産物のうち 5 つが完全に消え、残る1つもごく微量になった。ふたがループであることが、基質の幅広さに必要だった。

原文

“The chimeric enzyme produced only trace amounts of product 2 (Ile-Leu-M-CoA), whereas the formation of the other five products was completely abolished (Fig. 4d).”Results and discussion

AT ドメインの基質認識モチーフは、ふつうと違う SGFH 配列だった。M-CoA 用の HAFH や MM-CoA 用の YASH に近づけた変異体でも、基質の好みはほとんど変わらなかった。

原文

“Notably, none of these variants displayed a significant shift in substrate selectivity (Fig. 3d), suggesting that residues outside the conserved SGFH motif also contribute to substrate recognition and binding.”Results and discussion

Lab Notes

発現系
大腸菌 BAP1 で発現。
コンストラクト
全長 corA を pET28a(+) に組み込んだ。Strep-tag II を持つ。
精製
Ni-NTA、Strep-Tactin、Superdex 200 ゲルろ過の順に精製。
結晶化/グリッド作製
2 mg/mL の CorA 3 μL を Quantifoil R1.2/1.3 金グリッドに載せ、Vitrobot Mark IV で急速凍結した。
データ収集・解析
Glacios G2(200 kV)と Falcon 4i で 5,816 本の動画を収集。cryoSPARC で処理し、AlphaFold3 の予測モデルを土台にモデルを作った。

Structure-Based Study2026.10.251 Article

リポ酸合成酵素は、Ser308が鉄を離すかどうかで反応が分かれる

既存の結晶構造を土台に、変異体の活性と分光で調べた

PaperAmino Acids in the RSSY Motif of Lipoyl Synthase Control Substrate Binding and Reactivity

First authorVivian Robert Jeyachandran (The Pennsylvania State University, United States)

CorrespondingCarsten Krebs, Squire J. Booker (The Pennsylvania State University, United States)

JournalACS Bio & Med Chem Au

Published2026.10.24

LicenseCC BY 4.0

構造図:LipA(大腸菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

PDB 5EXK(論文が使った既存の構造)

Proteins & Nucleic Acids

  • LipA(リポ酸合成酵素)Lipoyl synthase
  • 基質ペプチド(Hタンパク質)Octanoylated peptide from M. tuberculosis H protein

Ligands

  • 補助クラスター(鉄3個)F3SFe3-S4 Cluster
  • [4Fe-4S](RS)SF4Iron/Sulfur Cluster
  • 5'-dA5AD5'-Deoxyadenosine
  • MetMETMethionine
疑問・課題
補助クラスターの鉄に配位する Ser308 を含む RSSY モチーフが、反応にどう関わるかを調べる課題があった。
アプローチ
大腸菌 LipA の変異体を作り、活性・ITC・Mössbauer と EPR 分光で調べ、結核菌 LipA の結晶構造で解釈した。
結果
R306K は基質にほぼ結合しなかった。S308C は鉄3個の中間体の代わりに、S = 7/2 の中間体と 6-オクテノイル産物を生んだ。
わかったこと
Ser308 が鉄を離すかどうかが、硫黄の付加へ進むか別の産物へ向かうかを分けると、著者は考えている。

Highlights

Arg306 を Lys に替えた変異体では、基質タンパク質の結合による熱がITCで検出されなかった。Arg306 が基質のオクタノイル基への結合に必要だと考えられる。

原文

“No detectable heat of binding was observed in the ITC experiment, suggesting that the binding affinity is drastically decreased for the variant (Figure C).”Results

Ser308 を Cys に替えると、リポ酸の代わりに 6-オクテノイル産物が増えた(30 μM の酵素で約 8.6 μM、野生型は約 1.6 μM)。Cys は Ser より鉄に強く配位するため鉄が離れず、補助クラスターが壊れないらしい。

原文

“Cysteine, being a stronger ligand than serine, is more likely to coordinate with the unique iron.”Results

S308C の反応では、EPR と Mössbauer 分光で S = 7/2 の短命な中間体が見えた。著者はこれを、オクタノイル基のラジカルが補助クラスターの硫黄を攻撃して生じた [4Fe-4S]+ 様の状態と帰属している。

原文

“We assign the species with the S = 7/2 ground state to a reduced [4Fe-4S]+-like auxiliary cluster, which we propose is formed by the attack of the octano-6-yl radical on one of the μ3-sulfides of the [4Fe-4S]2+ auxiliary cluster”Results

Lab Notes

発現系
大腸菌 BL21(DE3) で発現。N 末端に His6 タグ。
結晶化/グリッド作製
Fe–S クラスターは塩化鉄・硫化ナトリウム・DTT で化学的に再構成した。
データ収集・解析
活性測定は嫌気チャンバー内で室温。ITC は VP-ITC を使い、23 ℃ で測定した。

Not Covered