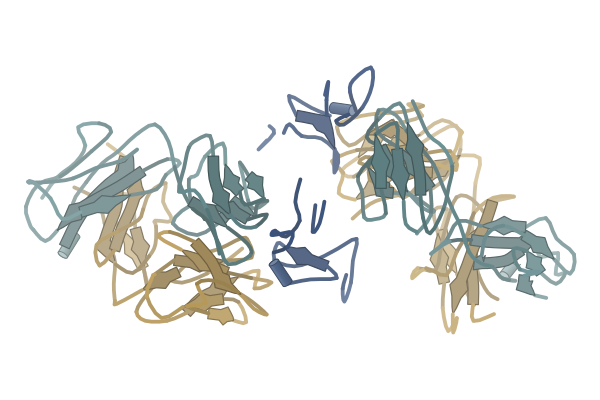
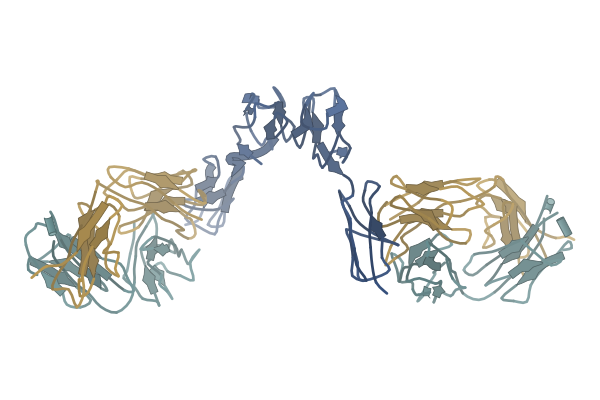
増殖を抑える抗体は、マラリア原虫PfRIPRの尾部を折り曲げる
抗体4種との複合体を解析し、折れ曲がりを起こさない抗体は増殖を抑えなかった
3D を読み込んでいます
Proteins & Nucleic Acids
- PfRIPR(抗体の標的)Immunoglobulin gamma-1 heavy chain,Rh5-interacting protein
- RP.012(重鎖)RP.012 heavy chain
- RP.012(軽鎖)RP.012 light chain
- 疑問・課題
- 赤血球への侵入に必須な複合体の中心因子PfRIPRに、抗体がどう結合して侵入を防ぐのかは、構造がなく不明だった。
- アプローチ
- ヒト由来3種とマウス由来1種の抗体とPfRIPR断片の複合体を、X線結晶構造とクライオ電顕で解析した。
- 結果
- 増殖阻害抗体RP.012は、EGF6とEGF7の間で尾部を曲げていた。非阻害のMAD8-739では曲がらなかった。
- わかったこと
- PfRIPRの尾部が侵入の際に形を変える必要があり、RP.012はその動きを妨げる可能性がある。
- 残された課題
- 抗体を組み合わせたときに相乗効果が生じる仕組みは、まだ明らかでない。
Highlights
RP.012との結晶構造(2.20 Å)では、EGF6とEGF7の向きが78°ずれていた。AlphaFoldの直線的な予測と比べると、EGF7が74°回転した曲がりがある。以前から尾部の柔らかさが指摘された位置にあたる。
原文
“RP.012 binds at the interface between EGF-like domains 6 and 7, such that lines through the two domains lie at 78° to one another”Results
EGF5-8を蛍光タンパク質で挟んだFRETプローブでは、RP.012だけがFRET効率を上げた。EGF6-7をジスルフィド結合で伸びた形に固定すると、RP.012は結合できなくなった。
原文
“RP.012 increased FRET efficiency of the probe significantly (Fig. 2f), while MAD8-2 and MAD8-739 decreased FRET efficiency (Fig. 2f).”Results
MAD8-2はRP.012の阻害を打ち消し(約16%、RP.012単独は46%)、C末端ドメインに結合するMAD8-66との併用では約93%に上がった。ワクチン抗原にはEGF5-8以外も要る可能性がある。
原文
“the best immunogen may require discontinuous regions of PfRIPR, from both EGF5-8 and the CTD.”Discussion
Lab Notes
- 発現系
- PfRIPR 断片や抗体は Expi293F 細胞で発現。抗体の Fab・scFv も同じ細胞。
- コンストラクト
- RP.012 はマウス抗体を、ヒト IgG1 定常領域のキメラとして発現。scFv は VH-(GGGGS)3-VL。
- 精製
- Protein G、ニッケル樹脂などでアフィニティー精製し、S200・S75 でゲル濾過。
- 結晶化/グリッド作製
- 結晶は18 °C のシッティングドロップ蒸気拡散(RP.012 複合体は 14.7 mg/mL)。クライオ電顕は C-flat 1.2/1.3、Vitrobot Mark IV。
- データ収集・解析
- 結晶は Diamond Light Source(I04、I24)。クライオ電顕は Titan Krios+K3、28,491 ムービー。
Related Articles
- 10.28 · 03小さなキナーゼのATP結合部位が、鋳型照合で見えた同じファミリー(Pfam):C1-set、V-set
- 10.24 · 13RBDを下に固定する抗体は、マクロファージへの侵入を起こさなかった同じファミリー(Pfam):V-set
- 10.24 · 03同じβ鎖でも、α鎖が違うとT細胞受容体の抱き方が変わる同じファミリー(Pfam):C1-set