
Issue No. 31 · Friday

2026.11.06

11月5日に論文データベースへ登録された論文から

13Articles
約24分Reading time

New Structure3Structure Update7Structure-Based Study3

Today’s Structures

1 / 3
Contents
  1. Rhesus rotavirus (RRV)ロタウイルスは、VP7が開けた孔から細胞質へ出る
  2. Chy400_4166 (C. aurantiacus)細菌の糖輸送体は、環状グルカンをぐるりと抱え込む
  3. Gut microbial sialidases (GH33)腸内細菌のシアリダーゼは、活性部位の外側で効きが決まる
  4. EcXyl43 (Enterobacter cloacae)補助ドメインのループが、EcXyl43の活性を左右する
  5. Human TrkB–ZEB85 antibody and TrkB–BDNFZEB85抗体は、TrkB上の硫酸化チロシンを認識する
  6. Designed PET hydrolases from T. fusca TfCut246個変異したPET分解酵素も、元の構造を保つ
  7. Human TPST1–PAP–CCR5 peptide complexCCR5の末端ペプチドは、硫酸化酵素とβシートをつくる
  8. HCoV-229E spike (S) on virionsスパイクは温度で形を変え、受容体で活性化が進む
  9. PDB 公開待ちHuman UGGT1UGGT1は、開いた型と閉じた型を行き来する
  10. HIV-1 clade C Env 330 SOSIP.664–44m Fab小児エリートの HIV-1 Env は、抗体 44m と結びつく
  11. 構造図なしC9orf72 RAN translation initiation complexC9orf72のRNAリピートは、リボソームRNAと直接結合する
  12. 構造図なしPRC2.1 with MTF2 and EPOP or PALI1異なる補因子が、PRC2の全体の形を大きく変える
  13. 構造図なしRv0097 isonitrile synthaseT92が、鉄に結合した酸素種の向きを決める

Contents

13 Articles
  1. 構造図:ロタウイルス(アカゲザル株)

    Picked up·Structure Update

    Rhesus rotavirus (RRV)

    ロタウイルスは、VP7が開けた孔から細胞質へ出る

    感染中の細胞をクライオ電子線トモグラフィーで撮り、人工膜の実験でVP7の孔あけを確かめた
  2. 構造図:Chy400_4166(緑色糸状菌)

    New Structure

    Chy400_4166 (C. aurantiacus)

    細菌の糖輸送体は、環状グルカンをぐるりと抱え込む

    X線結晶構造とITCで、10個のグルコース単位が共通して認識されると分かった

  3. 構造図:腸内細菌のシアリダーゼ(GH33)

    New Structure

    Gut microbial sialidases (GH33)

    腸内細菌のシアリダーゼは、活性部位の外側で効きが決まる

    3種の結晶構造と変異体の解析で、母乳オリゴ糖の分解力の差を説明した

  4. 構造図:EcXyl43(Enterobacter)

    New Structure

    EcXyl43 (Enterobacter cloacae)

    補助ドメインのループが、EcXyl43の活性を左右する

    クライオ電顕で四量体を解き、F507A変異体では入口が狭いと示した

  5. 構造図:TrkB・ZEB85抗体・BDNF

    Structure Update

    Human TrkB–ZEB85 antibody and TrkB–BDNF

    ZEB85抗体は、TrkB上の硫酸化チロシンを認識する

    ZEB85断片とTrkB–BDNF複合体を結晶構造で解析。BDNFも同じ膜近傍領域に結合する

  6. 構造図:TfCut2設計PET分解酵素

    Structure Update

    Designed PET hydrolases from T. fusca TfCut2

    46個変異したPET分解酵素も、元の構造を保つ

    TfCut2由来の設計酵素2種の結晶構造を解析。603設計のうち400以上がPETを分解した

  7. 構造図:hTPST1・CCR5ペプチド

    Structure Update

    Human TPST1–PAP–CCR5 peptide complex

    CCR5の末端ペプチドは、硫酸化酵素とβシートをつくる

    hTPST1・PAP・CCR5ペプチドの結晶構造(3.2 Å)で、Y3の認識にM1・D2・Y3が主に働いていた

  8. 構造図:ヒトコロナウイルスのスパイク

    Structure Update

    HCoV-229E spike (S) on virions

    スパイクは温度で形を変え、受容体で活性化が進む

    ウイルス粒子上のアルファコロナウイルスのスパイクをクライオ電子線トモグラフィーで撮り、S2の2状態を見分けた

  9. Structure Update

    Human UGGT1

    UGGT1は、開いた型と閉じた型を行き来する

    ヒトUGGT1をクライオ電顕で解析し、基質結合とみられる密度や二量体の形も見つかった

  10. 構造図:HIV-1 Env 330・抗体 44m

    Structure Update

    HIV-1 clade C Env 330 SOSIP.664–44m Fab

    小児エリートの HIV-1 Env は、抗体 44m と結びつく

    クライオ電顕 5.1 Å で複合体を解析。GDIR モチーフの R327 と N332 糖鎖が中和に効く

  11. Structure-Based Study

    C9orf72 RAN translation initiation complex

    C9orf72のRNAリピートは、リボソームRNAと直接結合する

    RAN翻訳の開始複合体をクライオ電顕で解析し、結合を断つ分子が翻訳を減らすことも示した

  12. Structure-Based Study

    PRC2.1 with MTF2 and EPOP or PALI1

    異なる補因子が、PRC2の全体の形を大きく変える

    クライオ電顕で解析。補因子が標的化ローブを数十Å動かしても、触媒機構は保たれる

  13. Structure-Based Study

    Rv0097 isonitrile synthase

    T92が、鉄に結合した酸素種の向きを決める

    結晶構造の比較から、T92がαKGの配置とループの形も制御する可能性を示した

Picked up Today’s Structure1 Article

ロタウイルスは、VP7が開けた孔から細胞質へ出る

感染中の細胞をクライオ電子線トモグラフィーで撮り、人工膜の実験でVP7の孔あけを確かめた
PaperMechanism of membrane perforation in rotavirus cell entry

First authorMarilina de Sautu (Harvard Medical School, United States of America)

CorrespondingCorresp. authorSimon Jenni, Stephen C. Harrison (Harvard Medical School, United States of America)

JournalScience (New York, N.Y.)

Published2026.09.10

LicenseTDM

構造図:ロタウイルス(アカゲザル株)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

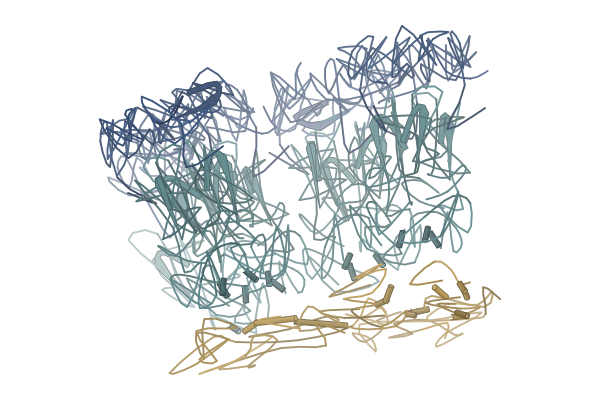
  • VP7(外殻)Outer capsid glycoprotein VP7
  • VP2(内殻)Inner capsid protein VP2
  • VP6(中間殻)Intermediate capsid protein VP6
疑問・課題
外殻のVP7が外れたあと、内殻粒子(DLP)がどう細胞質へ送り込まれるのかを調べた。
アプローチ
細胞に入るロタウイルスをクライオ電子線トモグラフィーで撮影し、人工膜(リポソーム)でもVP7の働きを調べた。
結果
取り込まれた小胞の膜には大きな孔が1つだけ開いていた。Ca2+のない単量体VP7も、リポソームに大きな孔を1つ開けた。
わかったこと
VP7だけで、観察された孔を作るのに足りる。Ca2+を失って外れたVP7が、DLPを細胞質へ出す孔の主役とみられる。
残された課題
VP5*が孔の形成に加わった可能性は、細胞のトモグラフィーだけでは除けないと論文は書く。

Highlights

小胞に取り込まれるとCa2+が抜け、VP7が粒子から外れる。外れ始めるのは膜と密着した面の反対側で、密着した面のVP5*がVP7の層を安定化しているらしい。

原文

“uncoating initiated away from the site of attachment”Results

VP7のC末端側の残基292〜312は、まっすぐ伸びると長さ約30 Åの両親媒性ヘリックスになると考えられる。この部分だけの合成ペプチドも、全長の単量体VP7とよく似た孔をリポソームに開けた。

原文

“If straightened, W292–K312, would form a perfectly amphipathic, ~30 Å-long α helix.”Results

7回の実験で838枚のトモグラフィー像を撮り、吸着から取り込み、孔あけ、DLPの放出までを6段階に整理した。細胞は薄く削らずにそのまま観察できた。

原文

“We could describe the entry pathway in six steps”Results

Lab Notes

結晶化/グリッド作製
BSC-1細胞に、これまでの生細胞観察より多めのウイルス粒子を加えて撮影した。
データ収集・解析
838枚のトモグラフィー像(7回の実験)。

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Related Articles

New Structure3 Articles

細菌の糖輸送体は、環状グルカンをぐるりと抱え込む

X線結晶構造とITCで、10個のグルコース単位が共通して認識されると分かった

PaperStructural and thermodynamic analyses of a novel β-1,2-glucan binding mode in the ABC transporter solute-binding protein Chy400_4166 from Chloroflexus aurantiacus

First authorKazuya Kato (Tokyo University of Science, Japan)

CorrespondingCorresp. authorHidetaka Torigoe, Masahiro Nakajima (Tokyo University of Science, Japan)

JournalThe Febs Journal

Published2026.05.10

LicenseCC BY 4.0

構造図:Chy400_4166(緑色糸状菌)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

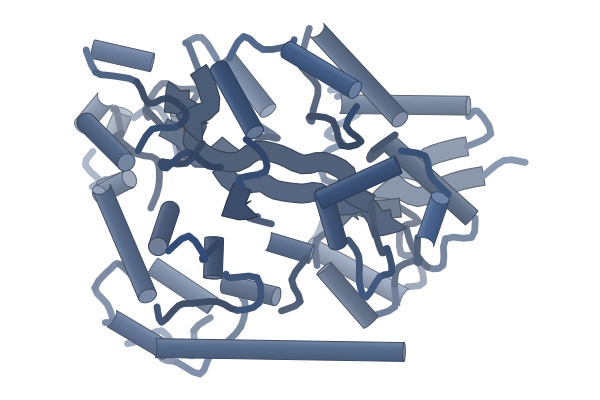
  • 糖結合タンパク質Extracellular solute-binding protein family 1
疑問・課題
β-1,2-グルカンを取り込む輸送体は、これまでほとんど調べられていなかった。
アプローチ
光合成細菌の結合タンパク質 Chy400_4166 を、ゲルシフト・ITC・X線結晶構造解析で調べた。
結果
直鎖・環状どちらにも強く結合し、グルコース10個(A〜J)はどの複合体でも共通して認識されていた。
わかったこと
単位Gは W74・W308・D336 が認識する。結合様式は、同じ結合の糖を狙う LiSO-BP と大きく異なる。

Highlights

ABC 輸送体(type I)の結合タンパク質として、β-1,2-グルカンに結合するものが初めて見つかった。複合体構造は直鎖1種と環状4種で得られた。

原文

“This is the first found β-1,2-glucan binding protein of type I ABC transporter.”Discussion

基質が結合すると2つのドメインが閉じる。その回転角は8.5°で、LiSO-BP の24.5°より小さい。結合の熱力学では ΔH が負で結合を進め、ΔS は不利になった。

原文

“This difference is attributed to the domain-closure motion induced by substrate binding.”Results

W292 の側鎖が反転して、長さの違う環状グルカンを受け入れると考えられる。基質は鎖の途中で結合する endo 型で、LiSO-BP の末端認識とは異なる。

原文

“These observations have indicated that the binding mode of Chy400_4166 is endo-type.”Discussion

Lab Notes

発現系
大腸菌 Rosetta2(DE3) で発現
コンストラクト
シグナル配列を除き、C 末端に His6 タグを付けた
結晶化/グリッド作製
直鎖または環状β-1,2-グルカンを加え、約2.0 M 硫酸アンモニウム・bis-Tris pH 5.6 でハンギングドロップ蒸気拡散法
データ収集・解析
100 K で測定。AlphaFold2 予測モデルを使った分子置換で位相を決めた

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Related Articles

腸内細菌のシアリダーゼは、活性部位の外側で効きが決まる

3種の結晶構造と変異体の解析で、母乳オリゴ糖の分解力の差を説明した

PaperHuman milk oligosaccharides are distinctly processed by early life gut microbial sialidases

First authorOlivia L. Plisko (University of North Carolina, USA)

CorrespondingCorresp. authorMatthew R Redinbo (University of North Carolina, USA)

JournalGut Microbes

Published2026.10.29

LicenseCC BY 4.0

構造図:腸内細菌のシアリダーゼ(GH33)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • NanH(シアリダーゼ)exo-alpha-sialidase

Ligands

  • シアル酸SIAN-acetyl-alpha-neuraminic acid
疑問・課題
母乳と粉ミルクで乳児の腸内細菌が違う理由は、分子の仕組みまでは十分に分かっていなかった。
アプローチ
メタゲノムから選んだ11種のシアリダーゼの活性を測り、3種の結晶構造と変異体で違いを調べた。
結果
Pm5 は活性部位に入り込む W169 があり活性が低い。Ad は W361 を含むループがあり、W361A にすると活性が落ちた。
わかったこと
シアル酸の結合部位だけでなく、活性部位に隣り合うループも、基質をどれだけ分解できるかに影響する。
残された課題
どのシアリダーゼがどの細菌の差に効くかは、今後の研究で特定する必要があると論文は書く。

Highlights

活性がほとんどない Pm5 では、W169 のトリプトファンがシアル酸の結合部位に入り込む。フェニルアラニンに替えた Pm5 W169F は、小さな合成基質では活性が上がったが、母乳オリゴ糖には活性を示さなかった。

原文

“However, there was no quantifiable activity with 3’SL and 6’SL, indicating that alternative active site regions also contribute to the inability of Pm5 to efficiently turnover sialylated HMOs.”Results

最も活性が高い Ad では、W361 を含むループがシアル酸以外の糖の近くにある。W361 をアラニンにすると、活性は他の酵素と同程度まで下がった。

原文

“The loop is unique in Ad because it contains a tryptophan (W361) not present in the other enzymes characterized.”Results

乳児のメタゲノムでは、シアリダーゼをもつ細菌の構成が母乳と粉ミルクの乳児で異なっていた。論文は 3’SL を粉ミルクへ加える候補と提案している。

原文

“Based on our data, we suggest that 3’SL is an optimal candidate for formula supplementation to promote infant gut microbiome health.”Discussion

Lab Notes

発現系
大腸菌 BL21(DE3) の TB 培地で、IPTG 誘導後に 18 °C で一晩発現
コンストラクト
シグナルペプチドを除き、Rl と Pt2 は余分な末端ドメインも除いた
精製
HisTrap FF のあと Superdex 200 のゲルろ過
結晶化/グリッド作製
Ad は 1 mM の遊離シアル酸と共結晶化。シッティングドロップ法で 20 °C
データ収集・解析
NSLS-II の 17-ID-1 と 17-ID-2。AlphaFold モデルで分子置換

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

補助ドメインのループが、EcXyl43の活性を左右する

クライオ電顕で四量体を解き、F507A変異体では入口が狭いと示した

PaperCryo-EM structure of GH43 β-Xylosidase from Enterobacter cloacae provides insights into substrate specificity and the role of an auxiliary domain in enzymatic activity

First authorLorenzo Briganti (University of São Paulo, Brazil)

CorrespondingCorresp. authorIgor Polikarpov (University of São Paulo, Brazil)

JournalThe Febs Journal

Published2026.05.18

LicenseCC BY 4.0

構造図:EcXyl43(Enterobacter)
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • β-キシロシダーゼBeta-xylosidase
疑問・課題
EcXyl43 が長いキシロオリゴ糖を好む構造上の理由と、補助ドメインの役割を調べる必要があった。
アプローチ
野生型をクライオ電顕、活性のない F507A 変異体を X 線結晶構造解析で調べ、ドッキングと MD も加えた。
結果
野生型は D2 対称の四量体で、補助ドメインの502〜510番ループが活性部位の入口に伸びていた。
わかったこと
このループの F507 を A にすると入口が狭くなり、基質が近づけなくなって活性が失われるらしい。

Highlights

Enterobacter 属のβ-キシロシダーゼとして、X 線とクライオ電顕の両方で構造が示された。結晶化できなかった野生型は、クライオ電顕で2.65 Åに達した。

原文

“Despite extensive efforts, we were unable to obtain crystals of WT EcXyl43.”Results and Discussion

F507A では F506 が活性部位側に2.1 Å動き、触媒残基 E186 との距離が6.5 Åに縮まる。入口の最も狭い所の半径は、GsXyl の3.43 Åに対して1.88 Åだった。

原文

“In comparison with the WT, the mutant F507A shows a dislocation of 2.1 Å of F506 toward the catalytic tunnel (Fig. 6).”Results and Discussion

ドッキングと MD では、キシロヘキサオース(X6)が酵素表面に沿って曲がり、追加の相互作用で安定化する。これが長いオリゴ糖を好む理由だと論文は考える。この部分は計算の結果である。

原文

“This stabilization likely explains why EcXyl43 preferentially acts on longer XOS, such as X6, as compared to shorter oligosaccharides (Fig. 6).”Results and Discussion

Lab Notes

発現系
大腸菌 Rosetta で発現し、Ni 親和性クロマトグラフィーで精製
結晶化/グリッド作製
0.25 mg/mL を Quantifoil R2/2 グリッドに3 µL滴下し、Vitrobot Mark IV で凍結
データ収集・解析
Titan Krios と Falcon 3EC で10,176枚を撮影。CryoSPARC で D2 対称を課して精密化

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Structure Update6 Articles

ZEB85抗体は、TrkB上の硫酸化チロシンを認識する

ZEB85断片とTrkB–BDNF複合体を結晶構造で解析。BDNFも同じ膜近傍領域に結合する

PaperA sulfotyrosine motif in the human TrkB extracellular domain is required for activation by the agonist antibody ZEB85

First authorDavid C. Briggs (The Francis Crick Institute, United Kingdom)

CorrespondingCorresp. authorNeil Q. McDonald (The Francis Crick Institute, United Kingdom)

JournalProceedings of the National Academy of Sciences of the United States of America

Published2026.10.29

LicenseCC BY 4.0

構造図:TrkB・ZEB85抗体・BDNF
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • ZEB85(抗体)ZEB85
  • TrkB(受容体)BDNF/NT-3 growth factors receptor
疑問・課題
BDNFとほぼ同じ働きをするTrkB作動抗体ZEB85が、なぜそこまで似た活性化を起こせるのかは分かっていなかった。
アプローチ
TrkBのエピトープを絞り込み、ZEB85断片とTrkB–BDNF複合体の結晶構造を解き、SPRと細胞アッセイで確かめた。
結果
ZEB85はTrkBのTyr400が硫酸化された配列(397〜401番)を認識し、Y400F変異体はZEB85では活性化されなかった。
わかったこと
BDNFも同じ膜近傍領域に結合するが硫酸化は要らず、ZEB85とBDNFが競合する理由と考えられる。
残された課題
TrkBのこの硫酸化チロシンが生体内で果たす役割は、まだ明らかでない。

Highlights

硫酸化されたTyr400の側鎖は、ZEB85のCDRH1とCDRH3がつくる深いポケットに入り込む。ポケットの底のArg76とAsn61が硫酸基と静電的に相互作用し、正電荷が1つだけなので、リン酸化チロシンとは区別される。

原文

“This binding pocket contains a single positive charge to bind to the sulfo-moiety, thus explaining the selectivity between sulfo- and phosphotyrosine containing peptides.”Results

論文はTrkB細胞外領域とBDNFの複合体構造の初の報告だと書いている。構造をもとにD298R/H299E/M379Rの3重変異を入れると、BDNFには応答せずZEB85には応答するTrkBができた。

原文

“We determined ZEB85 and BDNF structures bound to their respective TrkB binding epitopes including the first report of the structure of a TrkB extracellular domain-BDNF complex.”Introduction

ZEB85を完全なIgGの形にすると活性は数桁落ちた。結合部位の間隔がBDNFで約30 Å、ZEB85断片で約50 Åなのに対しIgGは約130 Åで、間隔が活性化の効率を左右すると考えられる。

原文

“However, when ZEB85 is reformatted as a full two-chain IgG antibody (ZIG85), its potency drops by several orders of magnitude”Results

Lab Notes

発現系
Expi293またはExpi293 GntI-細胞でPEI法により一過性発現し、培地へ分泌させた。
コンストラクト
TrkB 1-383をヒトBDNFと1:1のモル比で混ぜて結晶化した。
結晶化/グリッド作製
ZAB85(5 mg/mL)に10倍モル過剰のsY400ペプチドを溶かし込み、シッティングドロップ蒸気拡散法(293 K)で結晶化した。
データ収集・解析
Diamond Light SourceのI04(ZAB85、TrkB–BDNF)またはI24(ZAB85–sYペプチド)で回折データを収集した。

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Related Articles

46個変異したPET分解酵素も、元の構造を保つ

TfCut2由来の設計酵素2種の結晶構造を解析。603設計のうち400以上がPETを分解した

PaperIterative computational and rational design generates diverse PET hydrolases for plastic depolymerization

First authorBrenna Norton-Baker (Renewable Resources and Enabling Sciences Center, USA)

CorrespondingCorresp. authorGregg T. Beckham (Renewable Resources and Enabling Sciences Center, USA), Nicholas P. Gauthier (Harvard Medical School, USA)

JournalNature Communications

Published2026.11.03

LicenseCC BY 4.0

構造図:TfCut2設計PET分解酵素
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • PET 分解酵素Poly(ethylene terephthalate) hydrolase
疑問・課題
PET分解酵素の改変は配列の変え方が控えめなものが多く、大きく変えても働く酵素を作る方法が求められていた。
アプローチ
進化情報を使う設計(EVdesign)と合理設計で8種の親酵素から603の設計を作り、活性を測り、2種を結晶構造解析した。
結果
設計したTfCut2_EV2とEV3は親から約17%(46か所)変わっていたが、全原子のRMSDは0.30 Åと0.35 Åだった。
わかったこと
EVdesignは、配列が大きく変わっても標的酵素の主鎖の構造を保ったまま酵素を作り出せる。
残された課題
反応機構の詳細を明らかにするには、さらなる研究が必要だと論文は書く。

Highlights

603の設計のうち400を超える変異体(12〜68か所の置換)がPETを分解し、ほぼすべてが親酵素を上回った。標準的なLCC-ICCGに迫るものも多かった。

原文

“More than 400 variants containing 12-68 substitutions were able to depolymerize PET, nearly all outperforming their parent enzymes, and many approach benchmark LCC-ICCG performance in partial conversion assays.”Abstract

配列の多様化を進めると活性のある酵素の数は減るが、性能のばらつきが広がり、性能の高い外れ値が見つかった。TfCut2は4つの合理的変異で熱安定性の壁を越え、反復設計の土台になった。

原文

“Increasing sequence diversification reduces the number of active enzymes but broadens performance variance, enabling discovery of high-performing outliers.”Abstract

結晶構造はEV2が1.08 Å、EV3が1.70 Åの分解能で、親のTfCut2と比べて正準の折りたたみから目立った違いはなかった。

原文

“A comparison of these two X-ray structures with TfCut2 revealed no notable divergences from the canonical fold (Supplementary Fig. S11).”Results

Lab Notes

発現系
大腸菌C41(DE3)をYT培地で培養し、IPTG誘導後に18 °Cで16時間発現した。
精製
Ni-NTAカラムで精製し、イミダゾール勾配で溶出して透析した。
結晶化/グリッド作製
TfCut2_EV2は15 mg/mLに濃縮し、16 °Cのシッティングドロップで約3週間かけて結晶化した。
データ収集・解析
SSRL BL12-2ビームラインで回折データを収集した。

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

CCR5の末端ペプチドは、硫酸化酵素とβシートをつくる

hTPST1・PAP・CCR5ペプチドの結晶構造(3.2 Å)で、Y3の認識にM1・D2・Y3が主に働いていた

PaperStructural insights into tyrosine sulfation of CCR5 by human tyrosylprotein sulfotransferase-1

First authorShinnosuke Tanaka (Kyushu University, Japan)

CorrespondingCorresp. authorYoshimitsu Kakuta (Kyushu University, Japan)

JournalThe Febs Journal

Published2026.05.22

LicenseCC BY 4.0

構造図:hTPST1・CCR5ペプチド
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • TPST1(硫酸化酵素)Protein-tyrosine sulfotransferase 1
  • CCR5(受容体)C-C chemokine receptor type 5

Ligands

  • PAPA3PAdenosine-3'-5'-Diphosphate
疑問・課題
CCR5のN末端にあるチロシンがhTPSTによって硫酸化される詳しい仕組みは、解明されていなかった。
アプローチ
hTPST1の可溶性領域に、硫酸基供与体の産物PAPと、Y3だけが結合するよう改変した18残基のCCR5ペプチドを加え、結晶構造を解いた。
結果
分解能3.2 Åで、CCR5ペプチドのM1〜S6が見えた。ペプチドは酵素のThr199〜Ala201と平行βシートをつくっていた。
わかったこと
M1・D2・Y3がCCR5の結合に主に寄与しており、構造はY3の硫酸化と矛盾しない。他のY10・Y14・Y15はドッキングモデルによる仮説にとどまる。
残された課題
hTPST1でCCR5ペプチドが硫酸化される順序は、実験でまだ決まっていない。

Highlights

CCR5ペプチドは、酵素のThr199〜Ala201と平行βシートをつくる。論文は、この性質が多様な基質ペプチドを受け入れる助けになる考えを支持するとしている。

原文

“This finding supports the notion that parallel β-sheet formation is important for hTPST enzymes to accommodate a variety of substrate peptides”Results and Discussion

N末端のM1の側鎖は、酵素に結合すると溶媒接触面積が143.6 Å2から73.3 Å2に減り、約半分が埋まる。M1も結合面に寄与する。

原文

“The SASA was 73.3 Å2 in the hTPST1-bound state and 143.6 Å2 in the isolated state, indicating that approximately half of the side-chain surface is buried upon complex formation.”Results and Discussion

S6やS7にO型糖鎖が付いても、酵素の結合ポケットとは反対を向くため、Y3の硫酸化を妨げにくいとモデルから考えられる。ただしこれは構造から組み立てたモデルによる推定である。

原文

“Based on these structural models, bulky glycans at S6 and S7 are unlikely to sterically hinder Y3 sulfation by hTPSTs”Results and Discussion

Lab Notes

コンストラクト
Y10・Y14・Y15をGluに置換し、Y3だけが結合できるようにした18残基のCCR5ペプチドを化学合成した。
結晶化/グリッド作製
hTPST1 5.0 mg/mL、PAP 2 mM、ペプチド 1 mMを混ぜ、20 °Cのシッティングドロップ蒸気拡散法で結晶化した。結晶は約1か月で育った。

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Related Articles

スパイクは温度で形を変え、受容体で活性化が進む

ウイルス粒子上のアルファコロナウイルスのスパイクをクライオ電子線トモグラフィーで撮り、S2の2状態を見分けた

PaperOn-virion structural dynamics reveal temperature- and receptor-coordinated activation of an alphacoronavirus spike

First authorJiaming Liang (Tsinghua University, China)

CorrespondingCorresp. authorSai Li (Tsinghua University, China)

JournalScience Advances

Published2026.11.06

LicenseCC BY-NC 4.0

構造図:ヒトコロナウイルスのスパイク
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • S(スパイク)Spike glycoprotein
疑問・課題
アルファコロナウイルスのSタンパク質の活性化を、温度と受容体がどう調節するかは不明だった。
アプローチ
ヒトアルファコロナウイルスの粒子上のSを、4℃や33℃、受容体hAPNの有無で処理し、クライオ電子線トモグラフィーで解析した。
結果
S2はコンパクト型とゆるんだ型の2状態をとり、温度で可逆的に入れ替わった。RBDが上向きの型はまれで、受容体結合で安定化した。
わかったこと
温度と受容体の結合が組み合わさって、アルファコロナウイルスのSの活性化を調節すると論文は結論する。
残された課題
実験では可溶性のhAPNを精製ウイルスに加えており、細胞表面の受容体は使っていない。この違いを踏まえて解釈する必要があると論文は書く。

Highlights

S2は4℃ではコンパクト型だけだったが、33℃に移すと一部(20.6%)がゆるんだ型に変わった。ゆるんだ型からコンパクト型へ戻るほうが速い。

原文

“resulted in reversible conversion of 20.6% of S from the S2-compact to the S2-loose conformation”Results

1つのhAPN分子が隣り合う2つのSに結合するGemini型の複合体を、ウイルス粒子上で確認した。1つのSだけに結合するSolo型は46.8%、Gemini型は53.2%だった。

原文

“a Solo S-hAPN complex (46.8% of prefusion S particles), in which a single hAPN molecule binds to one S-trimer; and a Gemini S-hAPN complex (53.2% of prefusion S particles), in which a single hAPN molecule binds bivalently to two neighboring S”Results

hAPNを加えると、融合前から融合後の形への変換が進み、33℃では約4倍に増えた。温度だけでは、この変換への影響は小さかった。

原文

“temperature alone exerted only a minor effect on the abundance of postfusion S on virions”Results

Lab Notes

発現系
受容体hAPNの細胞外領域は、C末端にFcタグを付けてHEK293F細胞で一過性に発現した。
結晶化/グリッド作製
ウイルスはHuh-7細胞で33℃、5日間増殖させた。生きたウイルスを可溶性hAPNと33℃または4℃で処理してから凍結した。
データ収集・解析
Titan Krios(300 kV)にK3検出器とエネルギーフィルターを組み合わせ、SerialEMでチルト系列を取得した。

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Related Articles

UGGT1は、開いた型と閉じた型を行き来する

ヒトUGGT1をクライオ電顕で解析し、基質結合とみられる密度や二量体の形も見つかった

PaperStructural basis of glycoprotein recognition by the human folding sensor UDP-glucose:glycoprotein glucosyltransferase

First authorDavid Aparicio (Institute of Molecular Biology of Barcelona, Spain)

CorrespondingCorresp. authorLila M. Gierasch (University of Massachusetts Amherst), Carlos P. Modenutti (Universidad de Buenos Aires, Argentina), Marcelo E. Guerin (Institute of Molecular Biology of Barcelona, Spain)

JournalProceedings of the National Academy of Sciences of the United States of America

Published2026.10.30

LicenseCC BY-NC-ND 4.0

構造図:ヒトUGGT1
疑問・課題
UGGT1が構造の多様な折れ曲がった糖タンパク質をどう見分けるのかは、はっきりしていなかった。
アプローチ
UDPと結合したヒトUGGT1をクライオ電顕で解析し、分子動力学計算とグリコプロテオミクスも組み合わせた。
結果
全長は3.42 Åで解けた。TRXL2が動いて開いた型と閉じた型ができ、開いた型にはTRXL2と触媒ドメインをつなぐ余分な密度があった。
わかったこと
UGGT1は開閉を含む連続した形を行き来して基質を見張るらしい。余分な密度は基質の可能性があるが、特定できていない。
残された課題
二量体が自己調節を担うという考えは仮説で、確立した仕組みではないと論文は書く。

Highlights

開いた型から閉じた型への移行は、TRXL2がTRXL3に対して約18°ねじれる動きで表せる。触媒コアとTRXL2の間の曲がりは約25°だった。

原文

“the bending rotation between TRXL2 and the core catalytic module during the same transition amounts to ~25°”Results

UDPは触媒ドメインの深いポケットに収まり、ウラシルの環はY1267とπ–π積み重なりをつくる。Ca2+は見えず、代わりに水分子がβリン酸と水素結合していた。

原文

“instead, a water molecule forms a hydrogen bond with the β-phosphate group of UDP”Results

一部の粒子から二量体(C2対称)が見つかった。TRXL2どうしと、TRXL4とGT24の2か所で接する。基質を探す面を互いにふさぎ合う自己調節の可能性があるが、仮説にとどまる。

原文

“should be regarded as a hypothesis based on the structural observations presented here, rather than an established mechanism”Discussion

Lab Notes

発現系
残基43〜1551のヒトUGGT1を、シグナルペプチドをμホスファターゼのものに置き換えてHEK293-6E細胞で発現した。
精製
Hisタグのアフィニティー精製のあと、サイズ排除クロマトグラフィーで精製した。
結晶化/グリッド作製
精製試料にUDPとMan9GlcNAc2-Asnを加えてからグリッドを作った。
データ収集・解析
Titan KriosにGatan K3検出器を組み合わせ、34,367本のムービーを取得した。

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

小児エリートの HIV-1 Env は、抗体 44m と結びつく

クライオ電顕 5.1 Å で複合体を解析。GDIR モチーフの R327 と N332 糖鎖が中和に効く

PaperImmunogenicity and structure of a stabilized HIV-1 clade C Env from a pediatric elite neutralizer in complex with an autologous bnAb

First authorSwarandeep Singh (All India Institute of Medical Sciences)

CorrespondingCorresp. authorSomnath Dutta (Indian Institute of Science), Kalpana Luthra (All India Institute of Medical Sciences)

JournalFrontiers in Immunology

Published2026.10.21

LicenseCC BY 4.0

構造図:HIV-1 Env 330・抗体 44m
3D を読み込んでいます
RCSB で開く ↗ドラッグで回転 · クリックで拡大して周囲のアミノ酸を表示

Proteins & Nucleic Acids

  • 44m 重鎖(抗体)Heavy chain of 44m Ab
  • 44m 軽鎖(抗体)Light chain of 44m Ab
  • Env 三量体(HIV-1)AIIMS 330.v7 trimer
疑問・課題
クレード C の Env は、安定な天然型三量体にしにくく、高分解能の構造も限られていた。
アプローチ
小児のエリート中和者由来の Env 330 を三量体と粒子に作り、ウサギに免疫した。自家抗体 44m との複合体をクライオ電顕で解析した。
結果
5.1 Å の構造で、Env は天然型の三量体で、1 つの gp120 に 44m Fab が 1 つずつ結合していた。
わかったこと
44m は GDIR モチーフの R327 と N332 糖鎖に依存して中和した。クレード C の免疫原設計の手がかりになりうる。
残された課題
分解能が 5.1 Å のため、側鎖や糖鎖の接触を確実には決められないと論文は書く。

Highlights

44m の CDRH2・CDRH3 が V3 糖鎖の標的部位に結合し、CDRH1 は V1V2 領域の近くに位置した。BG505 では D325 への依存が中心だったが、330 では R327 とも相互作用していた。

原文

“Structural analysis further revealed that the CDRH1 loop of 44m was positioned proximal to the V1V2 region of the 330 Env, whereas the CDRH2 and CDRH3 loops primarily engaged the V3-glycan supersite (Figure 7E).”Results

330 Env の三量体は熱安定性が高く、ウサギで強い自家中和抗体を誘導した。フェリチン粒子と SOSIP.664 は NFL.664 より高かった。ただし Tier-2 ウイルスへの中和は検出されていない。

原文

“The absence of detectable cross-clade Tier-2 neutralization further supports the need for additional immunogen optimization to achieve broader neutralization.”Discussion

Lab Notes

発現系
Expi293F 細胞で SOSIP.664 と furin を共発現
精製
PGT145 抗体アフィニティー、続いてサイズ排除クロマトグラフィー
結晶化/グリッド作製
Env 三量体 1.5 mg/ml を 44m Fab とモル比 1:3 で混合
データ収集・解析
200 kV Talos Arctica(K2 Summit)。cryoSPARC 4.5 で C3 対称を課して精密化

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Related Articles

Structure-Based Study3 Articles

C9orf72のRNAリピートは、リボソームRNAと直接結合する

RAN翻訳の開始複合体をクライオ電顕で解析し、結合を断つ分子が翻訳を減らすことも示した

PaperStructural basis for repeat-associated non-AUG translation initiation on C9orf72 mRNA

First authorRoss Kaufhold

JournalbioRxiv

Published2026.10.28

LicenseCC BY-ND 4.0

疑問・課題
C9orf72のGGGGCCリピートから毒性ペプチドが作られるRAN翻訳が、どう始まるかを知る必要があった。
アプローチ
試験管内で組んだ複合体と、ヒト細胞の溶解液から精製した複合体をクライオ電顕で解析した。
結果
開始はリピートの24ヌクレオチド上流のCUGコドンで、リピートは18SリボソームRNAのES9Sと結合していた。
わかったこと
この結合を断つ アンチセンスオリゴヌクレオチド が、試験管内と患者由来の神経細胞でRAN翻訳を減らした。新しい治療法の手がかりになる。

Highlights

GGGGCCリピートは、40Sリボソームサブユニットの18SリボソームRNAのES9Sと、キッシングループで直接結合している。

原文

“The structures further reveal a direct interaction between the G 4 C 2 repeat and 18S ribosomal RNA expansion segment 9 (ES9S) on the 40S small ribosomal subunit through a kissing-loop interaction.”Abstract

RAN翻訳は主に、リピートの24ヌクレオチド上流にあるCUGコドンから始まる。このコドンは強いKozak配列に挟まれている。

原文

“RAN translation on C9orf72 mRNA initiates predominantly at a near-cognate CUG codon that is located 24 nucleotides upstream of the G 4 C 2 repeat”Abstract

相補的なアンチセンスオリゴヌクレオチドでRNAどうしの結合を防ぐと、試験管内と患者由来のiNeuronでRAN翻訳が大きく減った。構造上の結合に機能があることを示す。

原文

“Preventing this RNA-RNA interaction using complementary antisense oligonucleotides significantly reduces RAN translation in vitro and in patient-derived iNeurons”Abstract

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Related Articles

異なる補因子が、PRC2の全体の形を大きく変える

クライオ電顕で解析。補因子が標的化ローブを数十Å動かしても、触媒機構は保たれる

PaperProtein cofactors diversify PRC2 architecture and function

First authorTrinity Cookis

JournalbioRxiv

Published2026.10.26

LicenseCC BY 4.0

疑問・課題
PRC2.2の構造は分かっていたが、PRC2.1がどう組み上がりヌクレオソームと結合するかは不明だった。
アプローチ
MTF2とEPOPまたはPALI1を含む、クロマチン結合型のPRC2.1をクライオ電顕で解析した。
結果
配列が似ない補因子は、SUZ12-RBAP48の同じ面に結合しつつ、SUZ12足場の柔軟さで別々の全体構造を作った。
わかったこと
補因子は標的化ローブを数十Å動かすが、触媒機構は保たれる。標的化と触媒は切り離されていると論文は述べる。

Highlights

構造的に無関係な補因子が、SUZ12-RBAP48の標的化ローブ上の重なった面に結合する。柔軟なSUZ12足場が、異なる全体構造を生み出す。

原文

“Despite minimal sequence similarity, all PRC2 cofactors converge on an overlapping binding surface within the SUZ12-RBAP48 targeting lobe yet stabilize strikingly distinct complex architectures through a conformationally flexible SUZ12 scaffold.”Abstract

補因子は標的化ローブを数十Å動かすが、触媒機構とヌクレオソームとの結合は全サブタイプで保たれているらしい。

原文

“The catalytic mechanism and nucleosome engagement appear conserved across all subtypes, even as cofactors reposition the targeting lobe by tens of angstroms.”Abstract

PALI1とSUZ12にDNAとの新しい結合面が見つかった。生細胞の単分子イメージングでは、PALI1を含むPRC2がクロマチンに特に多く存在した。

原文

“We identify novel DNA-interaction surfaces in PALI1 and SUZ12 and show, through live-cell singlemolecule imaging, that PALI1-containing PRC2 is uniquely enriched on chromatin.”Abstract

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Related Articles

T92が、鉄に結合した酸素種の向きを決める

結晶構造の比較から、T92がαKGの配置とループの形も制御する可能性を示した

PaperA second-sphere threonine residue directs iron-oxygen species in a Fe(II)/α-ketoglutarate-dependent isonitrile synthase

First authorNaike Ye

JournalbioRxiv

Published2026.10.30

LicenseCC BY 4.0

疑問・課題
Rv0097は1つの触媒サイクルで2つの半反応を行うが、反応の向きを決める細かな仕組みが課題だった。
アプローチ
原子分解能の結晶構造を比較し、生化学実験と計算を組み合わせて、鉄の第二配位圏の残基を調べた。
結果
鉄の第二配位圏にあるT92が、鉄上の酸素種やαKGと水素結合できる位置にあった。
わかったこと
T92は酸素種の向きとαKGの配置、ループの形を制御して反応を導くらしい。

Highlights

T92は、鉄上のO2やFe(IV)-oxoと水素結合できる位置にあり、基質炭素からの水素引き抜きが正しく進むようにしているらしい。

原文

“T92 appears to be ideally positioned to form hydrogen bonding interactions with iron-oxygen species (both O 2 and Fe(IV)-oxo) in their online orientations, ensuring proper HAT from the substrate carbon.”Abstract

T92はαKGをO2の通り道をふさがない配置に保つ。1回目の半反応後には、分解物が出て2つ目のαKGが入れるループの形も支えるらしい。

原文

“T92 is also ideally positioned to hold αKG in an offline configuration so that this co-substrate does not block O 2 access to the iron cofactor.”Abstract

同様の第二配位圏の残基は他のFe(II)/αKG依存性酵素にもあると考えられ、反応結果を変える合理的な改変の手がかりになりうる。

原文

“This work further identifies second-sphere residues in other Fe(II)/αKG- dependent dioxygenases that could serve analogous roles to T92, opening doors to rational engineering for altered reaction outcomes.”Abstract

読み終えたら押すと、My FoldTimes の「読んだ記事」に日付と一緒に残ります。

Not Covered